
Article
Bleu de méthylène et hormèse : pourquoi les courbes dose-réponse peuvent changer de direction
Un rat reçoit 4 milligrams per kilogram de bleu de méthylène après avoir appris à reconnaître un objet, et le lendemain il s'en souvient. Un autre rat en reçoit 50, et il fait à peine tourner sa roue d'activité. La molécule est la même. La direction de l'effet ne l'est pas. Quiconque a lu plus de quelques articles sur le bleu de méthylène a déjà rencontré cette inversion, qui porte un nom : l'hormèse, une réponse biphasique dans laquelle des expositions faibles et élevées déplacent le même critère d'évaluation dans des directions opposées.
Ce terme n'est utile que si l'on sait ce qu'il implique et ce qu'il ne promet pas. Cet article examine quatre ensembles de données publiés sur le bleu de méthylène, chacun avec son propre critère d'évaluation, sa plage de concentrations et son dispositif expérimental, et montre pourquoi la chimie du colorant rend de telles inversions plausibles. Il se termine par l'avertissement imposé par les données : une courbe qui atteint un maximum dans une expérience décrit cette expérience, elle ne constitue pas une méthode pour choisir une dose personnelle.
Le phénomène porte un nom, et ce nom est plus précis qu'il n'y paraît
Le terme hormèse a été créé en 1943 par Southam et Ehrlich, puis a reçu sa forme quantitative moderne avec Calabrese et Baldwin : une réponse adaptative biphasique, produite directement ou par compensation après une perturbation de l'homéostasie. Remarquez ce qui manque dans cette définition. Le mot bénéfique n'y figure pas. L'hormèse indique que la courbe change de direction, rien de plus.
La forme observée dépend du critère placé sur l'axe vertical. Lorsque ce critère correspond à une fonction positive, comme l'activité enzymatique, l'utilisation de l'oxygène ou le score de mémoire, une stimulation à faible dose suivie d'une inhibition à forte dose dessine un U inversé. Lorsque le critère correspond à quelque chose de défavorable, comme l'incidence d'une maladie, une diminution à faible dose suivie d'une augmentation à forte dose dessine un J ou un U. Même relation, ordonnée différente. La plupart des travaux sur le bleu de méthylène mesurent des fonctions positives ; cet article parle donc de courbes en U inversé, étant entendu que la lettre choisie dépend de la manière dont les données sont représentées.
La revue de 2008 qui a rassemblé les réponses hormétiques du bleu de méthylène donne une idée concrète de l'échelle. Dans les domaines du comportement, de la physiologie et de la biochimie, les réponses situées dans la zone stimulatrice atteignent environ 130 à 160 percent de la valeur témoin, avec une moyenne proche de 140, avant de revenir au niveau témoin puis de passer en dessous à mesure que la dose continue d'augmenter. Cette plage résume de nombreuses expériences ; ce n'est pas une propriété intrinsèque de la molécule. Chaque courbe ci-dessous possède son propre maximum dans ses propres unités.
Pourquoi cette molécule en particulier devrait inverser ses effets
Le bleu de méthylène n'est pas un simple donneur d'électrons. C'est une navette réversible. La forme bleue oxydée accepte des électrons et devient la forme réduite incolore ; cette forme réduite peut ensuite transmettre ces électrons en aval. Le relais électronique qui sous-tend ces courbes est décrit dans l'explication de la manière dont le bleu de méthylène transporte les électrons, et cette fonction de navette constitue ici l'essentiel du mécanisme.
À faibles concentrations, ce cycle offre à la respiration une voie alternative. Le colorant réduit peut être oxydé au niveau de la cytochrome oxydase, l'enzyme terminale de la chaîne de transport d'électrons, ce qui augmente son activité ainsi que l'utilisation de l'oxygène et la capacité respiratoire. À des concentrations plus élevées, cette même chimie avide d'électrons commence à concurrencer la chaîne normale au lieu de l'assister : elle détourne les électrons de leur trajet habituel, consomme directement de l'oxygène et génère des espèces réactives de l'oxygène au lieu de produire efficacement de l'énergie. Petite navette catalytique, davantage de flux ; puits concurrent excessif, moins de flux. Cette chimie rend plausible un changement de direction, sans toutefois garantir l'endroit où un critère donné atteindra son maximum.
Des preuves indépendantes de cette dépendance à la concentration proviennent de cellules totalement dépourvues de mitochondries. Dans les expériences de 1976 sur les érythrocytes, une faible concentration de 1 micromolar stimulait la voie des pentoses phosphates par un mécanisme fortement dépendant de l'oxyhémoglobine, tandis qu'une concentration cent fois plus élevée de 0.1 millimolar dépendait à peine de la présence d'oxyhémoglobine et générait du peroxyde d'hydrogène selon les trois méthodes de mesure utilisées. Même colorant, deux mécanismes, séparés par la concentration. Les globules rouges ne peuvent pas respirer, il ne s'agit donc pas d'une courbe mitochondriale, mais cela montre que la chimie d'oxydoréduction du colorant change de caractère à mesure que la concentration augmente, ce qui correspond précisément à ce qu'exige l'explication mitochondriale.
Quatre courbes, quatre dispositifs
La figure ci-dessous redessine les quatre ensembles de données côte à côte. Chaque panneau conserve ses propres axes et conditions, car les superposer sur une même échelle serait la première contre-vérité que cet article pourrait présenter. Le dessin est schématique ; les valeurs et conditions exactes figurent dans le texte.
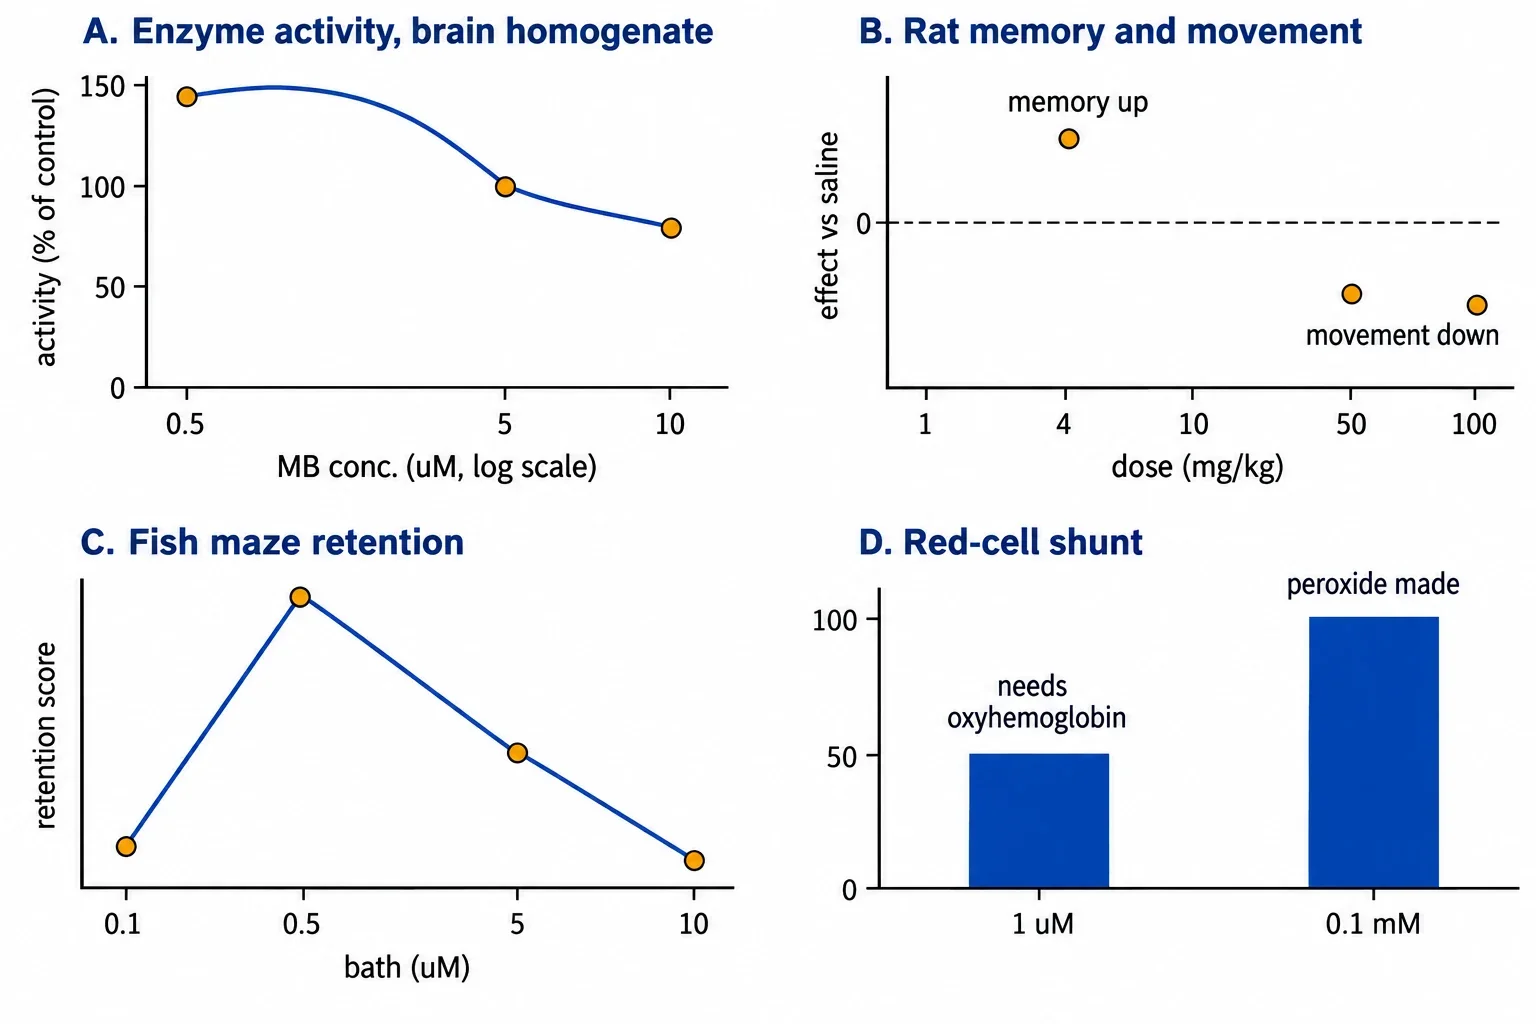
Panneau A : cytochrome oxydase dans un homogénat de cerveau de rat. La courbe mitochondriale la plus nette provient d'une source secondaire, représentée dans la revue à partir de données obtenues sur des homogénats de cerveau de rat : environ 138 percent de l'activité témoin à 0.5 micromolar, retour au niveau témoin vers 5 micromolar, puis passage sous le niveau de référence vers 10 micromolar, où les auteurs suggèrent que le colorant détourne des électrons des complexes habituels de la chaîne. Homogénat, micromolar, dosage spectrophotométrique. Cette phrase constitue tout le contexte, et la courbe ne signifie rien en dehors de celui-ci.
Panneau B : mémoire du rat et activité dans la roue. Dans l'étude sur la mémoire chez le rat, des injections uniques après l'entraînement ont été évaluées 24 hours plus tard. Des doses de 1 à 10 milligrams per kilogram n'ont produit aucune différence de locomotion ou d'alimentation par rapport au sérum physiologique, tandis que 50 à 100 milligrams per kilogram ont fortement réduit l'activité dans la roue (médiane 35 contre 279 revolutions) et que la dose la plus élevée a provoqué une piloérection, des mouvements non coordonnés et un décès. La dose de 4 milligram per kilogram a amélioré l'habituation et la reconnaissance d'objets : les rats traités ont passé près de 10 seconds supplémentaires sur le nouvel objet. La consommation d'oxygène cérébral a augmenté à la fois dans des homogénats exposés à de faibles concentrations micromolaires de colorant réduit et dans des cerveaux prélevés 24 hours après l'administration in vivo de 1 milligram per kilogram. Il faut noter la distinction : le comportement a été étudié avec des doses systémiques post-entraînement, tandis que l'utilisation de l'oxygène a été étudiée avec des concentrations dans des homogénats ainsi qu'une dose in vivo ; il s'agit de deux expériences, et non d'une seule courbe.
Panneau C : labyrinthe en T chez le poisson-zèbre. L'étude sur le poisson-zèbre a immergé des poissons entraînés pendant 12 hours après l'entraînement dans des bains aux concentrations nominales de 0.1, 0.5, 5.0 ou 10.0 micromolar, avec un colorant alimentaire bleu comme témoin. Le groupe à 0.5 micromolar a obtenu les meilleures performances, le groupe à 5.0 a obtenu des résultats similaires au témoin, et le groupe à 10.0 a obtenu de moins bonnes performances que les groupes recevant les concentrations inférieures. Deux précautions accompagnent ce panneau. Une concentration micromolaire dans le bain n'est pas une concentration micromolaire dans le sang ou le cerveau ; la distribution et l'accumulation s'interposent entre l'eau du bassin et les tissus. De plus, les statistiques sont moins solides que ne le suggère la forme de la courbe : la dose élevée différait des groupes à plus faible dose, sans qu'aucune autre différence significative entre groupes ne soit rapportée. La courbe est réelle, mais approximative.
Panneau D : la voie métabolique des érythrocytes. Metz et ses collègues ont comparé 1 micromolar à 0.1 millimolar dans des globules rouges humains sous air, sous monoxyde de carbone et sous un mélange produisant une carboxyhémoglobine presque totale à une pression d'oxygène physiologique. La stimulation à faible dose disparaissait sans oxyhémoglobine ; la stimulation à forte dose en dépendait à peine. Le peroxyde n'apparaissait qu'à la dose élevée. Ce panneau doit être placé à côté des autres comme illustration chimique, et non comme quatrième point d'une quelconque courbe universelle : aucune mitochondrie, un écart de concentration d'un facteur cent et des mélanges gazeux manipulés.
Pourquoi les maxima ne concordent pas, et pourquoi ils ne devraient pas concorder
Les quatre maxima se situent à 0.5 micromolar dans un homogénat, 4 milligrams per kilogram injectés après l'entraînement, 0.5 micromolar dans l'eau d'un bassin, et dans une comparaison faible-versus-forte séparée par un facteur cent dans des globules rouges. Considérer deux de ces valeurs comme le même nombre constitue une erreur de catégorie. Chaque critère d'évaluation possède sa propre courbe : l'optimum pour la mémoire ne doit pas nécessairement correspondre à l'optimum pour l'activité de l'oxydase, la consommation d'oxygène, la locomotion ou la production de peroxyde. Chaque unité de concentration représente une grandeur différente : micromolar dans un homogénat, micromolar nominal dans un bain, milligrams per kilogram systémiques, concentrations plasmatiques, cérébrales et mitochondriales sont des quantités différentes, et la tendance du bleu de méthylène à s'accumuler dans les mitochondries et le cerveau maintient ces valeurs distinctes. Chaque modèle ajoute sa propre pharmacocinétique : l'espèce, la voie d'administration et le moment de l'administration déterminent quel tissu rencontre quelle quantité de colorant et pendant combien de temps.
C'est également ici que le rôle de la dose et de la voie d'administration dans la sécurité du bleu de méthylène devient pertinent, car les effets observés à fortes doses dans ces articles — suppression motrice, mouvements non coordonnés, décès d'un rat, génération de peroxyde — constituent des signaux de toxicité propres à leurs dispositifs expérimentaux, et non des marges de sécurité applicables à d'autres situations. Et quiconque serait tenté de convertir 4 milligrams per kilogram chez le rat en protocole humain devrait d'abord examiner comment les résultats obtenus chez l'animal se rapportent aux données humaines : une simple conversion en milligrammes par kilogramme entre espèces est insuffisante.
L'erreur à éviter
Le U inversé est séduisant parce qu'il ressemble à un cadran de dosage sur lequel un point optimal serait clairement indiqué. Ce n'est pas le cas. L'hormèse décrit ce qui est arrivé à un critère d'évaluation dans un dispositif précis. Empilez quatre descriptions de ce type et vous obtenez quatre maxima exprimés dans quatre systèmes d'unités, soit exactement l'inverse d'un cadran. L'utilisation rigoureuse de ces courbes est comparative et prudente : il faut s'attendre à ce que les effets s'inversent avec la concentration, à ce que chaque critère s'inverse à son propre point, et se méfier de toute affirmation qui emprunte le maximum d'une expérience pour justifier une dose dans une espèce, une voie d'administration, un tissu ou un objectif différents. La distinction entre les tendances expérimentales et les décisions personnelles de dosage constitue le point central de tout cet article, répété ici une fois de plus afin qu'il ne soit pas manqué.
Comment lire la prochaine étude dose-réponse
Quatre questions s'appliquent à presque toutes les courbes sur le bleu de méthylène que vous rencontrerez. Quel critère d'évaluation figure sur l'axe vertical, et son inversion dessinerait-elle un U ou un J. Quelle concentration l'axe horizontal représente-t-il réellement : bain nominal, homogénat, plasma, concentration cérébrale estimée ou dose systémique administrée. Quel modèle et quel calendrier l'ont produite : homogénat, culture cellulaire avec lumière allumée ou éteinte, animaux entraînés recevant la dose avant ou après l'entraînement, moment du test. Et quel était le témoin : sérum physiologique, colorant alimentaire bleu, véhicule, et les statistiques de l'article étayent-elles chaque comparaison par paire ou seulement la forme générale. Un article qui répond aux quatre mérite votre attention. Un article qui indique un maximum sans ces informations vous donne un nombre sans adresse.