
Artikkeli
Metyleenisininen ja NAD+/NADH: solujen redox-tasapainon tulkinta
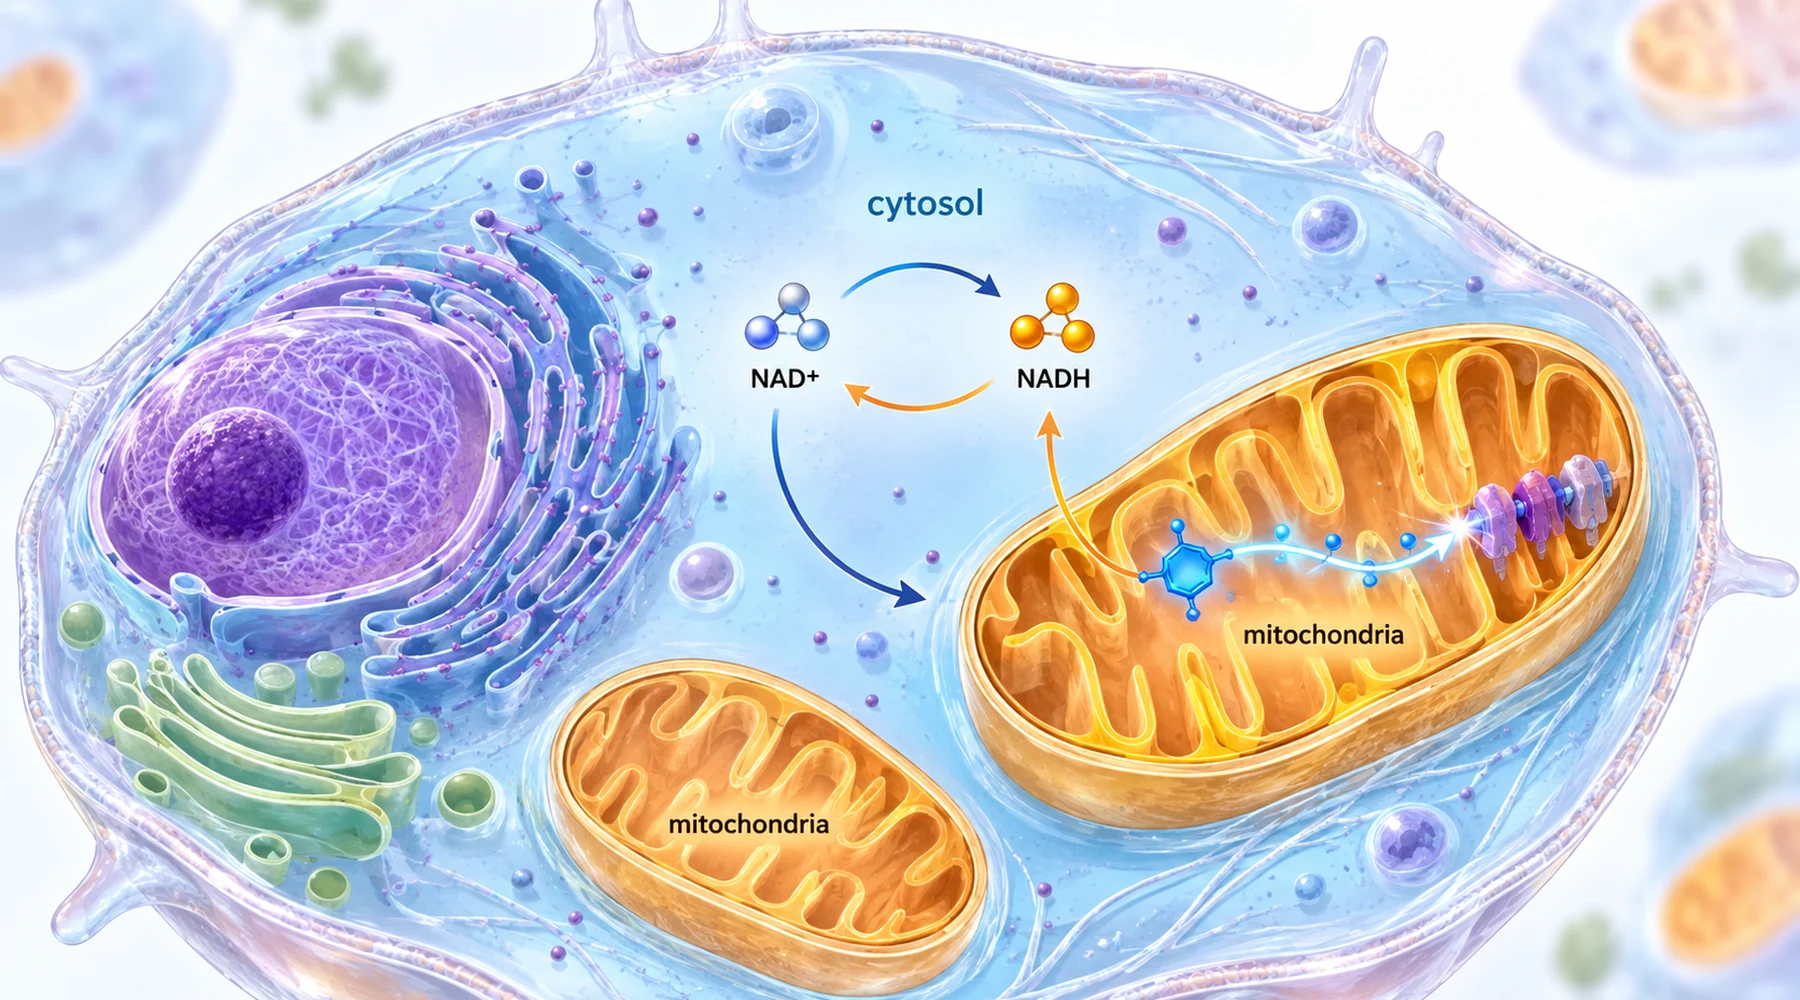
Metyleenisinistä ja NAD+:aa käsittelevissä raporteissa kolme erilaista väitettä sulautuu helposti yhdeksi. Ensimmäinen väite on, että NAD+:n ja NADH:n suhde muuttui kohti hapettunutta tilaa. Toinen on, että solussa on enemmän NAD:ia yhteensä. Kolmas on, että energiantuotanto palautui. Nämä kuulostavat yhdeltä kertomukselta aineenvaihdunnan palautumisesta. Kokeissa ne kuitenkin erkanevat toisistaan toistuvasti, ja kiinnostavimmat tulokset löytyvät juuri tapauksista, joissa näin tapahtuu.
Sekaannus on ymmärrettävä, sillä näistä kolmesta suureesta puhutaan samalla sanastolla. NAD+ vastaanottaa elektroneja aineenvaihduntareaktioissa ja muuttuu NADH:ksi. Mitokondriot hapettavat sitten NADH:n takaisin NAD+:ksi kompleksissa I ja käyttävät vapautuvan energian ATP:n synteesiin. Tätä elektronien kulkureittiä käsitellään tarkemmin mitokondrioiden elektroninsiirtoa selittävässä artikkelissa ja energiapuolta artikkelissa ATP ja energia-aineenvaihdunta. Suhde ja varanto ovat kuitenkin eri asioita. Suhde kertoo, miten olemassa olevat kuljetusmolekyylit jakautuvat kuormattuihin ja tyhjiin muotoihin. Varanto kertoo, kuinka monta kuljetusmolekyyliä ylipäätään on olemassa. Parempi suhde varannon pysyessä samana tarkoittaa uudelleenjakautumista, ei uusien molekyylien valmistumista.
Kaksi solutilaa, kaksi indikaattoria
Toinenkin erottelu aiheuttaa huomaamattomia tulkintavirheitä. Sytosolin ja mitokondrioiden NAD-varannot ovat pitkälti erillään mitokondrion sisäkalvon vuoksi, joten kumpikin solutila voi olla itsenäisesti suhteellisen hapettuneessa tai pelkistyneessä tilassa. Yksi koko solua kuvaava luku peittää tämän eron.

Maksatutkimuksissa solutilojen ero saatiin mitattavaksi. Laktaatin ja pyruvaatin välinen tasapaino kuvaa sytosolin NAD+:n ja NADH:n suhdetta, koska laktaattidehydrogenaasi kytkee nämä kaksi paria toisiinsa. 3-hydroksibutyraatin ja asetoasetaatin välinen tasapaino kuvaa mitokondrioiden suhdetta vastaavanlaisen kytkennän kautta. Kun molemmat parit mitataan nopeasti jäädytetystä kudoksesta, kuten rottien pitkäaikaista etanoliruokintaa koskevassa tutkimuksessa, yhdestä maksasta saadaan kaksi redox-lukemaa, ja yhdiste voi muuttaa toista enemmän kuin toista.
Metyleenisininen toimii tässä järjestelmässä elektronien kuljettajana, ei polttoaineena. Se vastaanottaa elektroneja NADH:lta kompleksin I läheisyydessä ja pelkistyy. Sen jälkeen se luovuttaa elektronit ketjun myöhemmille kuljettajille, kuten sytokromi c:lle. Nettovaikutuksena on NADH:n hapettuminen ilman koko tavanomaisen reitin läpikäyntiä. Tämä mekanismi selittää sekä sen kiinnostavuuden että sen rajat: se voi helpottaa pelkistyneeseen tilaan liittyvää ruuhkaa, mutta ei rakenna vaurioitunutta kompleksia uudelleen eikä syntetisoi uusia NAD-molekyylejä.
Viisi tutkimusta, sama eriytyvien tulosten kuvio
Alla oleva taulukko rinnastaa viisi tutkimusta kudoksen, redox-muuttujan, energiaan liittyvän muuttujan ja todellisen palautumisen perusteella. Lue kaksi viimeistä saraketta yhdessä. Niiden yhteys on tämän artikkelin ydin.
| Kudos ja vaurioittava tekijä | Redox-muuttuja metyleenisinisen yhteydessä | Energiaan ja signalointiin liittyvä muuttuja | Toiminnallinen tulos |
|---|---|---|---|
| Rotan maksa, pitkäaikainen etanoliruokavalio | Sytosolin ja mitokondrioiden NAD+/NADH-suhteet palautuivat suurelta osin; glyseroli-3-fosfaatti normalisoitui | Etanoli tai käsittely ei muuttanut ATP-tasoa; väriaineeseen liittyi pieni ATP-tason lasku myöhäisessä mittauspisteessä | Rasvakertymä ennallaan; lipidit ja triasyyliglyseroli pysyivät korkealla |
| Maksasolut ja runsasrasvaista ruokavaliota saaneiden hiirten maksa | NAD+/NADH-suhde ja NAD+-pitoisuus nousivat soluissa ja maksassa | SIRT1 lisääntyi, PGC-1alpha deasetyloitui, mitokondrio-DNA ja hapenkulutus lisääntyivät, SIRT1:stä riippuvainen AMPK-aktivaatio | Rasvan kertyminen maksaan ja steatohepatiitti vähenivät |
| Diabeettisen rotan sydän | NADH/NAD+-suhde laski substraattien hapettuessa eristetyissä mitokondrioissa | SIRT3-aktiivisuus nousi; lysiinin asetylaatio väheni 83 kohdassa 34 proteiinissa | Sydämen tilavuudet ja ejektiofraktio paranivat; itse kompleksin I vika ei korjaantunut |
| AIF-puutteisen hiiren verkkokalvo ja rotenonilla käsitellyt fotoreseptorisolut | NADH/NAD+-suhde normalisoitui soluissa; oksidatiivinen stressi väheni | Solujen ATP-vaje ei korjaantunut; mitokondrioiden stressireitit vaimenivat | Verkkokalvon paksuus ja fotoreseptorimarkkerit säilyivät; solujen eloonjääminen parani |
| Ihmisen ja rotan akillesjänne, hapettajan ja kollagenaasin aiheuttama vaurio | NAD+-tasapaino ja NAD-yhdisteiden kokonaisuus palautuivat kohti kontrollitasoa | ATP-taso nousi ja ROS väheni silloin, kun palautumista tapahtui | Soluväliaineen markkerit paranivat lukuun ottamatta kompleksin I suoraa estoa, jossa kemialliset mittarit muuttuivat mutta kudos ei palautunut |
Missä redox-tilan korjaantuminen ei palauttanut kudosta
Tutkimusjoukon vanhin tutkimus on edelleen sen selkein varoitus. Rotilla, jotka saivat 36 prosenttia energiastaan etanolista, sytosolin ja mitokondrioiden NAD+/NADH-suhteet laskivat molemmilla indikaattoripareilla mitattuina. Ruokavalioon lisätty metyleenisininen, noin 42 mg kutakin kg:aa kohti päivässä, esti nämä muutokset suurelta osin. Silti maksan triasyyliglyseroli noin kolminkertaistui myöhäiseen mittauspisteeseen mennessä riippumatta siitä, oliko väriainetta mukana, ja histologiassa näkyi sama maksalohkosten keskiosiin kertyvä rasva. Kirjoittajat esittivät epämukavan päätelmän suoraan: etanolin hapettumiseen liittyvä redox-muutos ei itsessään aiheuta rasvamaksaa. Lukija, joka tulkitsee korjatun suhteen korjatuksi elimeksi, kuvaisi tämän tutkimuksen väärin. Koko koeasetelma, mukaan lukien samaa ruokamäärää saaneet verrokit ja keskiyöllä päihtymyksen huippuvaiheessa otetut näytteet, kuvataan etanolia ja maksaa koskevassa tutkimuksessa.
Vertaa tätä runsasrasvaista ruokavaliota koskevaan maksatutkimukseen, jossa samantyyppinen suhteen muutos osui yhteen todellisen kudoksen paranemisen kanssa. Maksasoluissa ja hiirten maksassa suun kautta annetun metyleenisinisen jälkeen NAD+/NADH-suhde nousi, ja signalointiketju jäljitettiin vaihe vaiheelta: SIRT1 lisääntyi, PGC-1alpha deasetyloitui, mitokondrioiden biogeneesin markkerit ja hapenkulutus lisääntyivät, ja tämän jälkeen AMPK, CPT-1 ja PPARalpha aktivoituivat. AMPK:n aktivoitumisen osoitettiin riippuvan SIRT1:stä. Runsasrasvaista ruokavaliota saaneille hiirille kertyi vähemmän rasvaa maksaan. Ehdotetun selityksen mukaan redox-muutos käynnisti tässä geenien säätelyakselin sen sijaan, että se olisi vain tasapainottanut kemiaa uudelleen. Tätä käsitellään tarkemmin SIRT1:tä ja AMPK:ta koskevassa maksatutkimuksessa. Mittaukset kuuluivat samaan ryhmään kuin etanolitutkimuksessa, mutta kudosta koskeva lopputulos oli vastakkainen. Ero on myöhemmässä vaikutusreitissä, ei pelkässä suhteessa.
Sydän ja verkkokalvo: sirtuiinit, asetylaatio ja palautuminen ilman ATP-tason korjaantumista
Diabeettista sydäntä koskeva tutkimus yhdistää redox-muutoksen proteiinien asetylaatioon toisen sirtuiinin kautta. Diabeettisissa mitokondrioissa aineenvaihduntaentsyymien lysiini on liiallisesti asetyloitunut, mikä liittyy joustamattomuuteen substraattien käytössä. Metyleenisininen annoksella 10 mg kutakin kg:aa kohti päivässä edisti NADH:n hapettumista; eristetyissä mitokondrioissa vaikutus oli annosriippuvainen 6–18 mikromolaarin pitoisuusalueella. SIRT3-aktiivisuus nousi ja asetylaatio väheni laajasti. Samalla sydämen tilavuudet ja ejektiofraktio paranivat, vaikka taustalla oleva kompleksin I toimintahäiriö säilyi. Artikkelissa käsitellään suoraan myös muualla kirjallisuudessa kuvattua annoskäyttäytymistä: pienet pitoisuudet suosivat pelkistymiseen perustuvaa elektronien kuljetusta, kun taas suuremmat pitoisuudet voivat ohjata elektroneja uudelleen ilman hyödyllistä tulosta. Vaikutus on siis hormeettinen eikä monotoninen. Proteomiikan kartoitus ja sydämen mittaukset raportoidaan diabeettisen sydämen asetylaatiotutkimuksessa. Tämän taustalla olevaa oksidatiivisen stressin näkökulmaa käsitellään oksidatiivisen stressin ja ROS:n hallinnan yhteydessä.
Verkkokalvotutkimuksessa eriytyminen näkyy selvimmin. Harlequin-hiirillä, joilla AIF-puutos aiheuttaa kompleksin I kokoamisvirheen, metyleenisininen säilytti verkkokalvon paksuuden, fotoreseptorien ulkojäsenet sekä sauva-, tappi-, Müllerin ja gangliosolujen markkerit. Rotenonilla käsitellyissä 661W-fotoreseptorisoluissa väriaine normalisoi NADH:n ja NAD+:n suhteen ja vähensi reaktiivisia happiyhdisteitä 15 mikromolaarin pitoisuudessa. ATP-taso pysyi silti matalana pitoisuuksilla, jotka edistivät eloonjäämistä. Rakenne ja eloonjääminen säilyivät ilman energiatason palautumista, samalla kun mitokondrioiden laskostumattomien proteiinien vaste ja mitofagia vaimenivat. Tulos antaa väriaineesta kuvan pelkistysstressin ja oksidatiivisen stressin lievittäjänä energiantuotannon palauttajan sijaan. Tämä kuvataan verkkokalvon fotoreseptorien suojaamista koskevassa tutkimuksessa.
Jänne: koe, jossa kemia muuttui mutta kudos ei palautunut
Akillesjännetutkimus sisältää molemmat tulosmallit samassa artikkelissa, ja se kannattaa lukea huolellisesti. Tutkimushaarojen täydellinen erittely löytyy vuoden 2026 akillestendinopatiatutkimuksen analyysistä. Sairaassa jänteessä havaittiin NAD+:n vähenemistä, matala NAD+:n ja NADH:n suhde, heikot kompleksin I markkerit, matala ATP-taso ja epäjärjestynyttä kollageenia. Metyleenisininen palautti NAD-kemiaa ja ATP-tasoa sekä paransi soluväliaineen markkereita rotta-, ihmiskudoseksplantti- ja soluvalmisteissa.
Sen jälkeen tehtiin kaksi häiriökoetta. Kun kompleksi I estettiin rotenonilla, väriaine suojasi edelleen NAD+-kemiaa ja ATP:hen liittyviä mittaustuloksia, mutta ei lievittänyt hapettajakuormaa, palauttanut kollageenitasapainoa eikä säilyttänyt elinkelpoisuutta. Kun AIF:n ilmentymistä vaimennettiin ja kompleksin I koneisto jäi puutteellisesti rakentuneeksi sen sijaan, että se olisi estetty farmakologisesti, väriaine palautti laajasti NAD-tasapainoa, oksidatiivista stressiä, kalvopotentiaalia ja kollageenimarkkereita. Johtopäätös on täsmällinen. NAD-arvo voi parantua silloinkin, kun kompleksi I on estetty, mutta kudoksen palautuminen tässä koevalmisteessa riippui toimintakykyisestä kompleksin I reitistä. Suhteen muutos on tässä välttämätön muttei riittävä, kuten jänteen redox-tutkimuksessa käsitellään tarkemmin.
Miten tulkita seuraavaa redox-väitettä
Kolme tarkistusta ehkäisee useimmat tulkintavirheet. Kysy ensin, mitä solutilaa suhde kuvaa ja millä indikaattoriparilla se saatiin. Sytosolin laktaatti–pyruvaattitulos ei kerro suoraan mitään mitokondrion matriksista. Kysy toiseksi, raportoiko tutkimus suhteen muutoksen, suuremman kokonaisvarannon vai ATP-tason palautumisen, ja käsittele jokaista erillisenä löydöksenä. Kysy kolmanneksi, mikä jäi korjaantumatta: korjaantumaton rasvakertymä, kompleksin I vika tai ATP-vaje esiintyvät kaikki näissä tutkimuksissa aidon redox-tilan paranemisen rinnalla.
Tämä ei ole annosteluohje. Kaikki viisi tutkimusta tehtiin eläimillä, soluilla tai kudosvalmisteilla käyttäen hallittuja vaurioittavia tekijöitä: nestemäisiä etanoliruokavalioita, streptotsotosiinilla aiheutettua diabetesta, geneettisiä kompleksin I vikoja, rotenonia, peroksidia ja kollagenaasia. Soluviljelmien pitoisuuksia ei voi suoraan muuntaa suun kautta otettaviksi annoksiksi, eikä yksikään ihminen näissä tutkimuksissa ottanut metyleenisinistä redox-tasapainon vuoksi. Redox-farmakologiaa ja annostelua yhdistävä keskeinen havainto on rajatumpi ja hyödyllisempi kuin mikään käyttöprotokolla: metyleenisininen hapettaa NADH:ta ja muuttaa mitattua suhdetta, sirtuiinit välittävät tämän muutoksen joissakin kudoksissa deasetylaatioksi ja aineenvaihdunnan uudelleenohjelmoitumiseksi, ja kudoksen vaste riippuu koneistosta, jota väriaine ei voi korvata.