
Artikkeli
Metyleenisininen DNA:n ja RNA:n värjäyksessä: geeli- ja kalvosovellukset
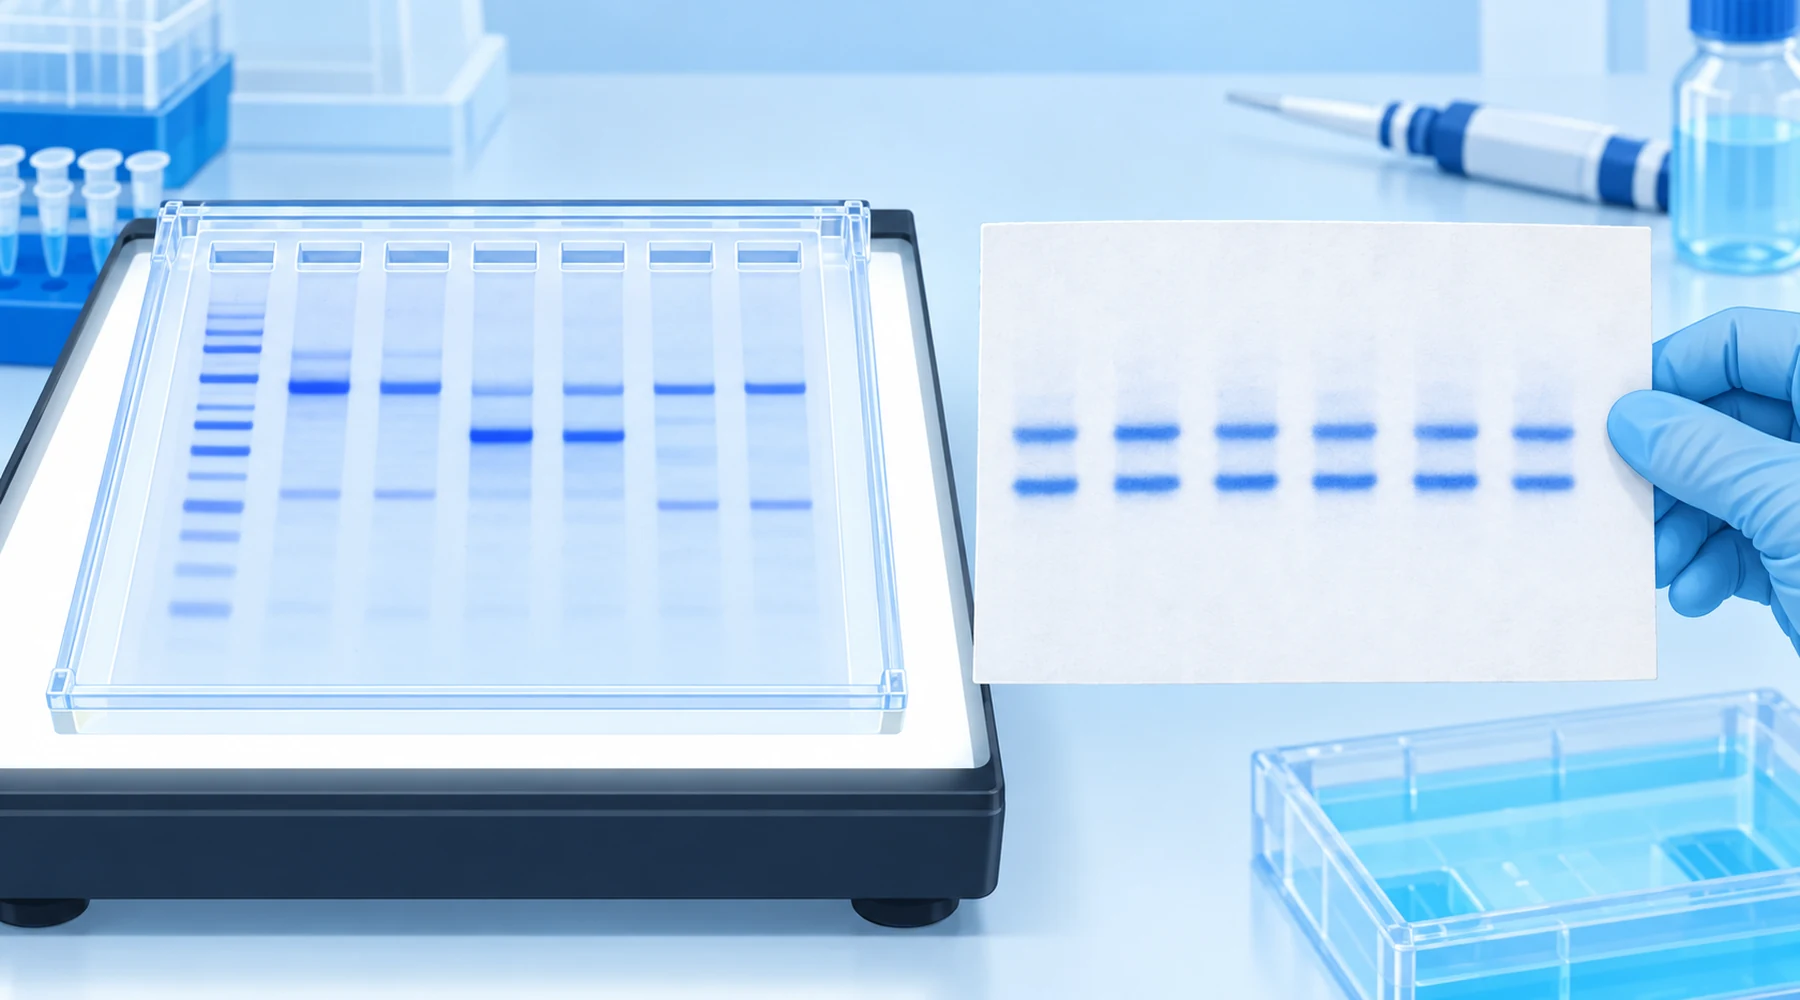
Opiskelija ajaa agaroosigeelin, värjää sen metyleenisinisellä eikä näe mitään kohdassa, johon odotettiin kirkasta vyöhykettä. Viereisellä työpisteellä tutkijatohtori värjää Northern-kalvon saman pullon sinisellä väriaineella ja saa terävät ribosomaaliset vyöhykkeet kolmessa minuutissa. Opiskelija päättelee, että geeliajo epäonnistui. Geeliajo ei epäonnistunut. Tehtävät olivat erilaisia, ja sama väriaine vastaa niihin eri herkkyydellä, erilaisella taustalla ja erilaisin jatkokäsittelysäännöin.
DNA:n ja RNA:n metyleenisinivärjäyksellä on yhteinen kemia mutta eri tarkoitus. Geelissä väriaine kertoo, kuinka paljon nukleiinihappoa on huokoisen matriksin sisällä. Kalvolla se kertoo, onnistuiko siirto ja ladattiinko kaistoille tasaiset määrät näytettä. Kun tämä ero on selvä, menetelmät, havaitsemisrajat ja yhteensopivuuden rajat asettuvat paikoilleen.
Lyhyt vastaus
Metyleenisininen on tasomainen kationinen väriaine, joka sitoutuu nukleiinihappoihin ei-kovalenttisesti ja palautuvasti. Sitoutuminen perustuu fosfaattiin kohdistuvaan sähköstaattiseen vetovoimaan, emäsparien väliin tapahtuvaan interkalaatioon ja pieneen uurteeseen sitoutumiseen. Palautuvuus on olennaista. Vyöhykkeet voidaan värjätä näkyvässä valossa tarkasteltaviksi, dokumentoida ja sen jälkeen poistaa väri tai puhdistaa näyte kloonausta, hybridisaatiota tai uutta koetinkäsittelyä varten.
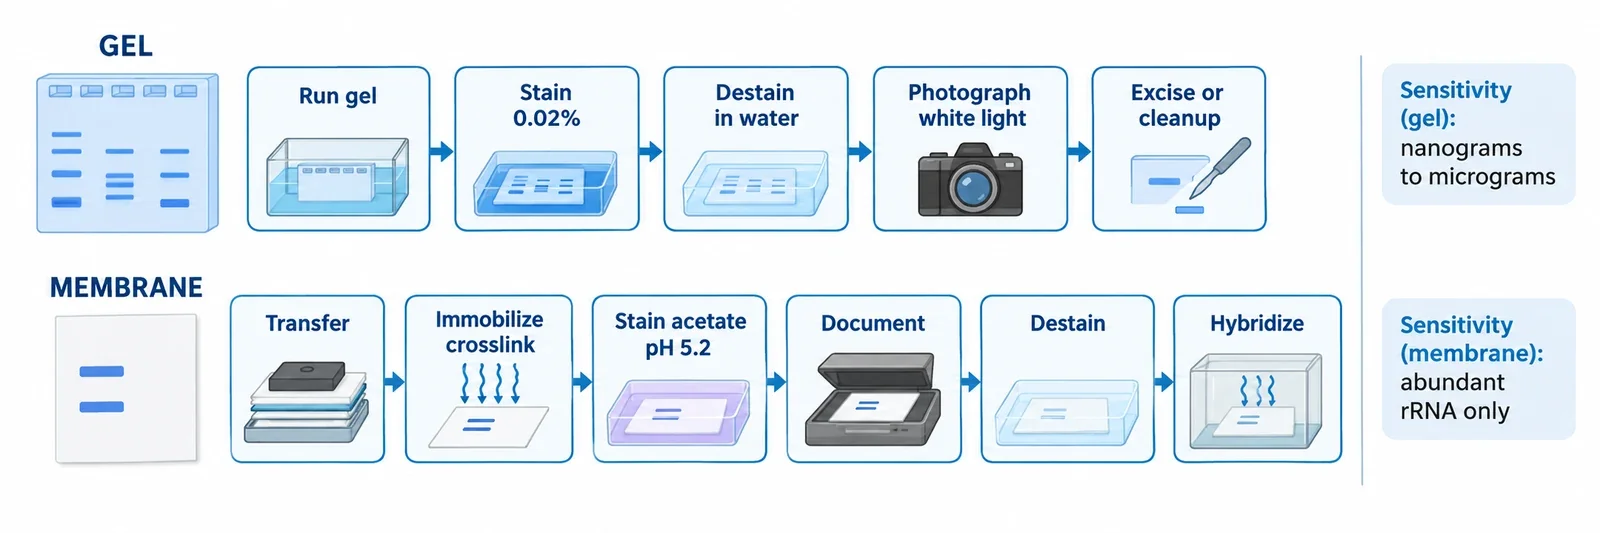
Kaksijuosteisen DNA:n metyleenisinivärjäyksessä agaroosigeelissä tavallinen pikamenetelmä käyttää 0.02 prosentin w/v-liuosta (200 mikrogrammaa per mL) vedessä, noin 15 minuutin värjäystä ja noin 15 minuutin värinpoistoa vedellä. Geeliä tarkastellaan valkoisen valon valopöydällä. Kalvoille perinteinen Northern blot -menetelmä käyttää 0.02–0.04 prosenttia väriainetta natriumasetaatissa lähellä pH-arvoa 5.2, usean minuutin värjäystä siirron ja kiinnityksen jälkeen, sitten vesihuuhtelua ja täydellistä värinpoistoa ennen hybridisaatiota. Herkkyys on vaatimaton: hyvissä olosuhteissa kymmenistä satoihin nanogrammoihin geelivyöhykettä kohti, ja varovaiset ohjeet ilmoittavat rajaksi 0.5–1 mikrogrammaa. Tämä on useita kertaluokkia enemmän kuin etidiumbromidilla ja SYBR-väreillä. Kalvoilla yksittäiselle transkriptille ei ole hyödyllistä havaitsemisrajaa, koska värjäys näyttää pääasiassa runsaan ribosomaalisen RNA:n ja ladatun materiaalin kokonaismäärän. Älä korvaa kummankaan menetelmän väriainetta kuluttajille myytävällä ravintolisäliuoksella. Validoidut menetelmät edellyttävät analyysilaatuista väriainetta, määriteltyjä puskureita ja RNA:ta käsiteltäessä RNaasivapaata työskentelyä.
Miten sitoutuminen toimii ja missä se johtaa harhaan
Hyödyllisessä mallissa on kolme osaa. Ensinnäkin positiivisesti varautunut rengasjärjestelmä vetäytyy negatiivisesti varautunutta fosfaattirunkoa kohti. Spektroskooppiset tutkimukset osoittavat tämän sähköstaattisen osatekijän hallitsevaksi pienissä suolapitoisuuksissa, kun taas mallinnuksessa ja molekyylidynamiikassa interkalaatio ja pieneen uurteeseen sitoutuminen säilyvät kaksijuosteisen DNA:n vakaina sitoutumistapoina, kuten metyleenisinisen DNA-sitoutumista käsittelevässä spektroskooppisessa tutkimuksessa kuvataan. Toiseksi jonkinlaista GC-suosiota esiintyy: mallinnus suosii CpG- ja GpC-kohtia, ja kokeissa on raportoitu ensisijaista sitoutumista GC-rikkaisiin kaksoisjuosteisiin metyleenisinisen interkalaation kohdevalintaa käsittelevässä tutkimuksessa, mutta myös AT-kaksoisjuosteet sitovat väriainetta. Rutiinivärjäys ei ole sekvenssispesifistä. Kolmanneksi yksijuosteinen DNA ja RNA sitoutuvat pääasiassa sähköstaattisten vuorovaikutusten sekä saavutettavissa oleviin emäksiin ja kaksoisjuosteisiin alueisiin kohdistuvien pinoutumisvuorovaikutusten kautta. Siksi värjäyksen voimakkuus vaihtelee pituuden, sekvenssin ja sekundaarirakenteen mukaan.
Tästä seuraa kaksi asiaa. Koska sitoutuminen on ei-kovalenttista, väriaine huuhtoutuu pois. Polyakryyliamidigeelin vyöhykkeet haalistuvat nopeasti, ellei niitä erikseen kiinnitetä, ja pysyvään kiinnitykseen on oma menetelmävarianttinsa juuri siksi, että tavallinen värjäys on tilapäinen. Tätä kuvaavat Soto ja Draper PAGE-geelejä koskevassa työssään. Koska väriaine on valoherkistin, värjätyn DNA:n pitkä altistus kirkkaalle valolle hapen läsnä ollessa voi hapettaa guaniinia ja lopulta aiheuttaa yksijuostekatkoksia. Mekanismi kuvataan yksityiskohtaisesti metyleenisinisen herkistämää guaniinin hapettumista käsittelevässä tutkimuksessa. Lyhyt tarkastelu valkoisessa valossa välttää perinteisten etidiumbromidimenetelmien tunnetut UV-vauriot, ja tämä etu on todellinen preparatiivisessa talteenotossa. Näkyvä valo on hellävaraisempaa, ei vaaratonta. Pidä valotus lyhyenä, kun DNA on tarkoitus kloonata. Tämän varoituksen taustalla olevaa fotokemiaa käsitellään artikkelissa metyleenisinisen fotokemian kaksi reittiä. Hapetus-pelkistysparia ja varaustiloja, jotka selittävät hapettuneen muodon sitoutumisen ja pelkistyneen muodon sitoutumattomuuden, käsitellään artikkelissa metyleenisinisen rakenteen ja ominaisuuksien kemia.
Ensimmäinen tehtävä: värjäys geelin sisällä
Geelivärjäys vastaa yhteen kysymykseen: onko tässä vyöhykkeessä tarpeeksi nukleiinihappoa, jotta se näkyy paljaalla silmällä. Kaksijuosteinen DNA agaroosissa on parhaiten tunnettu tapaus. Floresin ja kollegoiden alkuperäinen metyleenisinigeelimenetelmä validoi 0.02 prosentin pikamenetelmän 1 prosentin agaroosissa ja osoitti, että talteenotto ja kloonaus onnistuivat sen jälkeen. Sama toimittajan menetelmä löytyy IBI Scientificin metyleenisinisen tuotesivulta, jossa 0.04 prosentin kalvomenetelmä ja nopea geelivariantti esitetään rinnakkain.
Käytännön työvaiheet:
- Aja geeli tavalliseen tapaan. Värjää elektroforeesin jälkeen, ei sen aikana, ellei siirtoa tai erotuskykyä ole validoitu muunnetulle menetelmälle.
- Upota 0.02 prosentin w/v-metyleenisiniliuokseen tislatussa vedessä ja sekoita kevyesti noin 15 minuutin ajan.
- Poista väri vaihtamalla vesi useita kertoja, yhteensä noin 15 minuutin ajan, kunnes matriksin taustaväri vähenee ja vyöhykkeet erottuvat.
- Valokuvaa viipymättä valkoisen valon valopöydällä.
Agaroosi ja polyakryyliamidi käyttäytyvät eri tavoin. Agaroosi pidättää väriainetta matriksissa, joten värinpoisto on hidas vaihe. Ohuet polyakryyliamidigeelit värjäytyvät nopeasti mutta myös menettävät väriaineen nopeasti. Tämä auttaa preparatiivista vyöhykkeiden leikkaamista mutta vaikeuttaa arkistodokumentointia. Synteettiset oligonukleotidit voidaan paikantaa polyakryyliamidissa samalla 0.02 prosentin menetelmällä 20–30 minuutissa toistuvilla vesipesuilla vakiintuneiden Current Protocols -tyyppisten PAGE-menetelmien mukaisesti. Preparatiivisille oligoille on raportoitu useita tunteja kestäviä hyvin laimeita menetelmävariantteja, joissa pitoisuus on noin 0.0002 prosenttia laimeassa TBE:ssä, mutta niiden näyttöpohja on heikompi.
DNA:n ja RNA:n ero on merkityksellinen. Kaksijuosteinen DNA tarjoaa voimakkaimman rakenteeseen perustuvan sitoutumisen. RNA ja yksijuosteinen DNA värjäytyvät, mutta heikommin ja vähemmän ennustettavasti. Formaldehydi-agaroosi-RNA-geeleissä useimmat laboratoriot jättävät geelissä tehtävän sinivärjäyksen väliin ja siirtävät RNA:n ensin kalvolle, joka sitten värjätään. Näin heikko geelissä näkyvä signaali vaihtuu terävämpään kalvosignaaliin ja näytteiden latauksen dokumentointiin.
Toinen tehtävä: värjäys kalvoilla
Kalvovärjäys vastaa eri kysymykseen: onnistuiko siirto ja ovatko kaistat vertailukelpoisia. Perinteinen sovellus on Herrinin ja Schmidtin palautuva Northern blot -värjäys. Alkuperäisessä menetelmässä käytettiin 0.04 prosenttia väriainetta 50 mM natriumasetaatissa pH-arvossa 5.0 2–3 minuutin ajan ja vesihuuhtelua, ja väri poistettiin laimealla SDS:llä SSPE:ssä ennen hybridisaatiota.
Laajasti käytetty nykyinen variantti etenee seuraavasti:
- Siirrä RNA tai denaturoitu DNA nylonille tai nitroselluloosalle ja kiinnitä se sitten UV-ristisidonnalla tai kuumentamalla, jotta näyte ei katoa värjäyksen aikana.
- Valinnainen mutta yleinen vaihe: kostuta kalvo 5 prosentin etikkahapossa noin 15 minuutin ajan.
- Värjää 5–10 minuuttia 0.02–0.04 prosentin metyleenisiniliuoksessa, joka sisältää 0.3–0.5 M natriumasetaattia ja jonka pH on lähellä arvoa 5.2.
- Huuhtele ja poista väri vedessä 5–15 minuutin ajan, dokumentoi ja poista sitten jäljellä oleva väriaine ennen hybridisaatiota.
Positiivisesti varautunut nylon on vallitseva materiaali Northern-työssä. Myös nitroselluloosa toimii samalla etikkahappoa ja asetaattia käyttävällä menetelmällä. Kuvan avulla varmistetaan siirto, verrataan 28S- ja 18S-vyöhykkeitä (tai bakteerien RNA:n 23S- ja 16S-vyöhykkeitä), merkitään kokomarkkerit ja standardit sekä säilytetään karkea dokumentaatio kokonais-RNA:n normalisointia varten. Julkaistuissa Northern-menetelmissä värjättyjä ribosomaalisia vyöhykkeitä mitataan latausmäärien tarkistamiseksi. Näihin kuuluu maidontutkimuksen työ, jossa käytettiin metyleenisinisellä värjättyjä ribosomaalisia vyöhykkeitä normalisointiin. Southern-kalvot voidaan visualisoida samalla tavalla, mutta väriaine on huomattavasti vakiintuneempi Northern-menetelmän latauksen ja siirron tarkistuksessa. Southern-menetelmässä DNA denaturoidaan ennen siirtoa, joten geeleille ilmoitetut herkkyysarvot eivät ole suoraan sovellettavissa.
Havaitsemisrajat ja tausta: missä sininen jää jälkeen
Alla oleva vertailu on tarkoituksella likimääräinen. Värjäyksen suorituskyky riippuu geelin prosenttipitoisuudesta, vyöhykkeen leveydestä, optiikasta ja värinpoiston huolellisuudesta. Käsittele jokaista lukua suuruusluokkana, älä spesifikaationa.
| Väriaine ja käyttökohde | Likimääräinen havaitsemisraja vyöhykettä kohti | Tulkinta |
|---|---|---|
| Metyleenisininen, dsDNA agaroosissa | Optimoituna 40–250 ng; varovainen arvio 0.5–1 mikrogrammaa | Riittää preparatiivisiin näytemääriin ja opetusgeeleihin. Heikko vähäisten vyöhykkeiden havaitsemiseen. |
| Metyleenisininen, lyhyt ssDNA, RNA tai oligot PAGE-geelissä | Noin 0.1–0.5 mikrogrammaa | Riippuu pituudesta ja rakenteesta. Ei yleispätevää rajaa. |
| Etidiumbromidi, dsDNA agaroosissa | Noin 1–10 ng | Noin neljä kertaa herkempi kuin optimoitu sinivärjäys Floresin vertailussa. Vaatii UV-valoa. |
| SYBR Green I, dsDNA | Noin 60 pg | Vaatii fluoresenssikuvantamisen. |
| SYBR Gold, DNA ja RNA | Noin 25 pg | Useissa käyttökohteissa yli kymmenen kertaa herkempi kuin etidiumbromidi. |
| Hopeavärjäys, nukleiinihapot PAGE-geelissä | Noin 0.3–0.9 ng; optimoidussa sini- ja hopeavärjäyksen peräkkäisessä menetelmässä raportoitu 100 pg RNA:ta | Erittäin herkkä mutta kemiallisesti monivaiheinen ja huonosti talteenottoon sopiva. |
| Toluidiinisininen, RNA ja oligot PAGE-geelissä | Käyttömäärät satoja ng, noin 250 ng dokumentoitu | Näkyvä valo kuten metyleenisinisellä, mutta ei SYBR-spesifikaatioihin verrattavaa standardoitua rajaa. |
Taustan hallinta ratkaisee, onko vaatimaton signaali käyttökelpoinen. Vapaa väriaine on voimakkaan väristä, joten kontrasti saadaan poistamalla sitoutumaton väriaine poistamatta sitoutunutta väriainetta. Väkevämpi väriliuos lisää harvoin herkkyyttä. Se lähinnä pidentää värinpoistoaikaa. Aja laimennussarja juuri käytettävällä geelillä, kalvolla ja kameralla ja käytä vain aluetta, jolla integroitu tiheys pysyy suhteessa näytemäärään. Metyleenisininen soveltuu puolikvantitatiiviseen latausmäärien normalisointiin. Se ei ole laajan dynaamisen alueen kvantitatiivinen määritysmenetelmä, koska kalvon kapasiteetti, siirtotehokkuus, kyllästyminen ja värinpoisto vaihtelevat kaistasta toiseen.
Yhteensopivuuden rajat: mikä kestää värjäyksen
Kloonaus sinivärjäyksen jälkeen on osoitettu toimivaksi. Flores ja kollegat leikkasivat värjättyjä agaroosivyöhykkeitä, ottivat DNA:n talteen sekä ligatoivat sen ja tekivät transformaation. He raportoivat parempia kloonaustuloksia kuin etidiumbromidivärjäyksen ja UV-valon käytön jälkeen. Todennäköinen syy on vähäisempi valovaurio, ei itse väriaineen hyödyllinen vaikutus. Pidä valkoisen valon altistus lyhyenä ja puhdista talteen otettu DNA tavallisella geelistä eristyksen puhdistusmenetelmällä.
PCR:n ja sekvensoinnin osalta näyttöä on vähemmän. Jäljelle jäänyt väriaine sitoutuu nukleiinihappoihin, joten poista väri ja puhdista näyte ennen entsymaattisia vaiheita. Asianmukaisesti puhdistetun DNA:n siniseksi värjätystä geelistä odotetaan toimivan, mutta eri polymeraasien ja sekvensointikemioiden sietokykyä suoraan mukana siirtyvälle väriaineelle ei ole määritetty hyvin. Älä oleta sitä.
Blot-hybridisaatio on yhteensopiva, kun työjärjestys on tarkka: siirto, kiinnitys, värjäys, dokumentointi, värinpoisto, hybridisaatio. Tämä järjestys on Herrinin ja Schmidtin menetelmän perusta. Värjäys ennen siirtoa tai värinpoiston ohittaminen on eri menetelmä ja tarvitsee oman validointinsa. Väriaineen poistamisen jälkeen tavallinen koettimen poisto ja uusi koetinkäsittely etenevät normaalisti. Saman väriaineperheen solutason värjäyksestä ja siitä, miksi kiinnitetyn sivelyvalmisteen menetelmäperiaatteet eivät sovellu eläviin soluihin, kerrotaan mikroskooppisen värjäyksen atlaksessa.
Vyöhykkeiden leikkaaminen toimii preparatiivisessa agaroosissa ja PAGE-oligoille, jotka paikannetaan sinivärjäyksellä, kunhan pysyvää kiinnitysvarianttia vältetään. Elektroeluointi värinpoiston jälkeen on kemiallisesti uskottavaa palautuvasti sitoutuvalle väriaineelle, mutta nimenomaan metyleenisinistä koskevaa kontrolloitua saantotietoa on vähän. Poista suolat tai saosta eluoinnin jälkeen.
Toistuvat ongelmat
Heikot geelivyöhykkeet tarkoittavat yleensä liian pientä massaa kolorimetriseen värjäykseen, erityisesti lyhyillä yksijuosteisilla kohteilla tai RNA-kohteilla. Lataa enemmän näytettä, käytä tuoretta väriliuosta, pidennä värjäystä ennen pitoisuuden nostamista ja lopeta värinpoisto aiemmin. Tasaisen sininen geeli ilman kontrastia tarkoittaa yleensä liiallista värjäystä tai liian vähäisiä vedenvaihtoja. PAGE-vyöhykkeiden haalistuminen on odotettavaa kemiaa, ei epäonnistunut värjäys. Valokuvaa nopeasti. Epätasainen kalvotausta viittaa taitoksiin, kupliin, sormenjälkiin, epätasaiseen sekoitukseen tai laikuttaiseen siirtoon. Älä tulkitse sitä epätasaiseksi lataukseksi ilman hybridisaatiokontrollia. Leviävä, heikko ribosomaalinen kuvio voi tarkoittaa hajoamista, mutta myös epätäydellistä siirtoa, liian vähäistä kokonais-RNA:ta (kaistoille ladataan tyypillisesti useista mikrogrammoista kymmeniin mikrogrammoihin) tai liiallista värinpoistoa. Väriaine näyttää runsaan ribosomaalisen RNA:n. Se ei osoita tiettyä transkriptia. Se tehtävä kuuluu koettimelle.
Turvallisuus ja käsittely ilman liioittelua
Metyleenisininen on yksinkertaisempi käsitellä kuin etidiumbromidi, mutta se ei ole vaaraton. MilliporeSigman nykyinen käyttöturvallisuustiedote luokittelee väriaineen suun kautta tapahtuvan välittömän myrkyllisyyden kategoriaan 4: haitallista nieltynä. Hävittäminen tulee tehdä hyväksytyn jätteenkäsittelyreitin kautta Sigma-Aldrichin metyleenisinisen käyttöturvallisuustiedotteen mukaisesti. Etidiumbromidiin liittyy voimakkaampia genotoksisuusvaroituksia, mukaan lukien epäillyt vaikutukset sukusoluihin sen Sigma-Aldrichin käyttöturvallisuustiedotteessa. Sen geelit ja liuokset kerätään tavallisesti erikseen vaarallisena kemikaalijätteenä, kuten Thermo Fisherin nukleiinihappovärien oppaassa todetaan. Noudata molempien osalta käyttöturvallisuustiedotetta ja organisaation sääntöjä. Pidä kuiva väriaine tiiviisti suljettuna ja kuivana, käytä työliuosta uudelleen vain menetelmän sallimissa rajoissa, säilytä värjätyt kalvot kuivina suodatinpaperiarkkien välissä ja valokuvaa geelit ennen kuin vyöhykkeet leviävät diffuusion vuoksi.
Muista työpöydän nyrkkisääntö. Geelit testaavat näkyvyyttä suurella näytemäärällä valkoisessa valossa. Kalvot testaavat siirtoa ja latausta ennen kuin koetin tekee herkän havaitsemistyön. Yksi väriaine palvelee molempia, mutta sen herkkyys on vaatimaton, sitoutuminen palautuvaa ja työjärjestys tarkka.