
مقاله
اندازهگیری گونههای فعال اکسیژن در آزمایشهای متیلن بلو
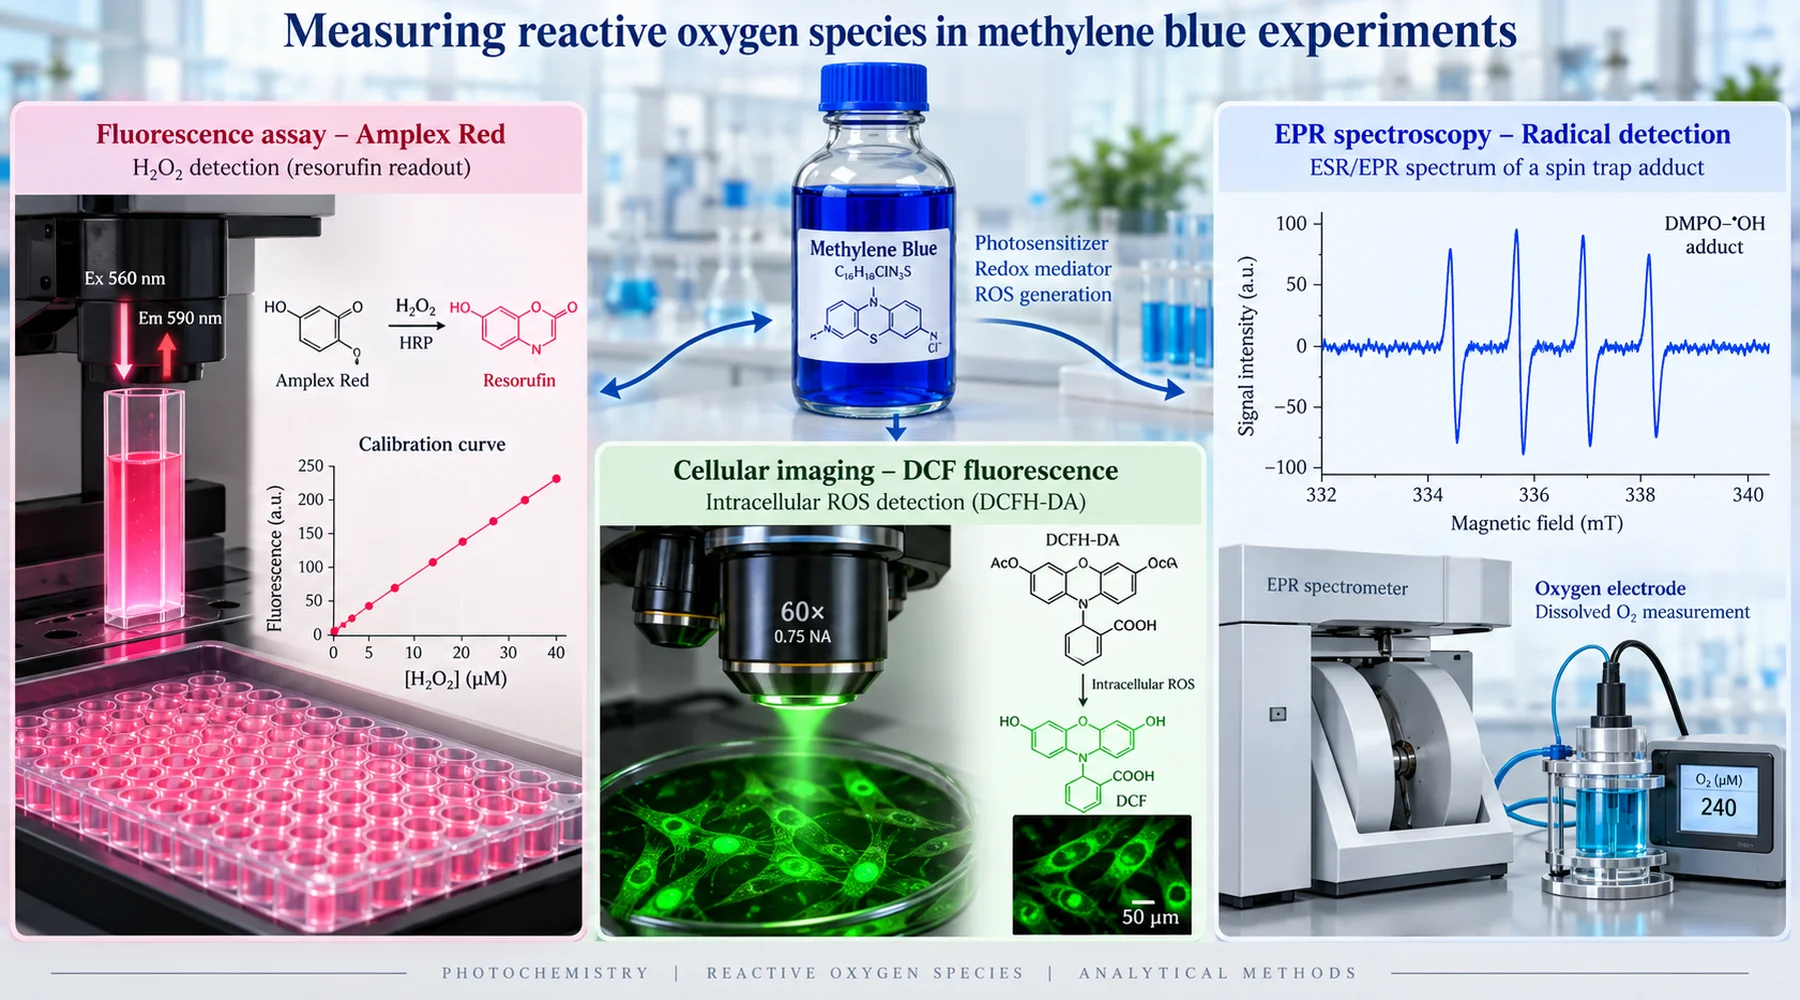
دو آزمایشگاه آزمایشی انجام میدهند که هرکدام آن را آزمایش اثر آنتیاکسیدانی متیلن بلو مینامند. یکی گزارش میکند که این رنگ گونههای فعال اکسیژن را مهار میکند. دیگری گزارش میکند که آنها را تولید میکند. هر دو منحنیهای پاسخ به دوزِ واضحی ارائه میدهند. هر دو صادقاند. تفاوت نه ناشی از تقلب است و نه ناتوانی. مسئله این است که دو گروه، در شرایط نوری متفاوت و با پروبهایی که به پرسشهای متفاوت پاسخ میدهند، چیزهای متفاوتی را اندازه گرفتهاند و سپس هر دو پاسخ را با یک واژه توصیف کردهاند: ROS.
اندازهگیری دقیق متیلن بلو دشوار است، زیرا این مولکول در همان فرایند شیمیایی مشارکت میکند که قرار است مشاهده شود. در تاریکی، الکترونها را میان دهندهها و پذیرندهها جابهجا میکند و به شکل اولیهٔ خود بازمیگردد، آماده برای چرخهای دیگر. زیر نور، به یک حساسکنندهٔ نوری تبدیل میشود و به حالت برانگیختهٔ سهتایی میرسد؛ از آن حالت میتواند انرژی را به اکسیژن منتقل کند و اکسیژن تکتایی بسازد، یا با انتقال الکترون، رادیکالها و پراکسید هیدروژن تولید کند. هر پروبی که وارد این سامانه شود ممکن است بهوسیلهٔ خود رنگ اکسید، احیا یا رنگپریده شود، یا سیگنالش از نظر نوری پوشانده شود. بنابراین نخستین پرسش دربارهٔ هر خروجی سنجش ROS هرگز این نیست که عدد چقدر است. پرسش این است که سنجش واقعاً چه چیزی را آشکار میکند و رنگ چه اثری بر سنجش میگذارد.
Amplex Red: سنجش کالیبرهشدهٔ پراکسید هیدروژن
ترکیب متیلن بلو و Amplex Red، اگر بهدرستی اجرا شود، قابلدفاعترین ترکیب در این مجموعه پژوهشهاست. شیمی آن اختصاصی است: پراکسیداز ترب کوهی با استفاده از پراکسید هیدروژن، سوبسترای Amplex را با نسبت استوکیومتری تقریباً یکبهیک به محصولی فلورسنت به نام رزوروفین اکسید میکند. پراکسید موجود در نمونه در آشکارساز به فلورسانس تبدیل میشود. هیچ عضو دیگری از خانوادهٔ متعارف ROS مستقیماً این واکنش را پیش نمیبرد.
مزیت تعیینکننده، کالیبراسیون است. پژوهشگر دقیق، استانداردهای پراکسید با مقادیر معلوم را در همان بافر، با همان غلظتهای پراکسیداز و سوبسترا، همان زمان انکوباسیون و همان تنظیمات نوری بررسی میکند و سپس نمونهها را بر اساس آن منحنی میخواند. در مطالعهٔ میتوکندریهای جداشده از مغز که مبنای این روش است، نویسندگان دقیقاً همین کار را انجام دادند: در پایان هر اجرای آزمایش، مقادیر معلومی پراکسید افزودند و اعداد را بهصورت نرخ، بر حسب پیکومول در دقیقه بهازای هر میلیگرم پروتئین، گزارش کردند، نه واحدهای دلخواه فلورسانس. همین کار است که یک درخشش را به اندازهگیری تبدیل میکند.
سه جزئیات آن مطالعه ارزش الگوبرداری دارند. نخست، نویسندگان سیگنال را با کاتالاز، که پراکسید را تجزیه میکند، تأیید کردند. افزایش فلورسانس ناشی از متیلن بلو با افزودن کاتالاز متوقف شد و تأیید کرد که سیگنال مربوط به پراکسید است، نه یک آرتیفکت نوری. دوم، آنها نوردهی را مستقیماً آزمودند: با استفاده از شاتر در مسیر پرتو تحریک، نمونهها تنها یکهشتم دوز نوری معمول را دریافت کردند و سیگنال فقط نه درصد کاهش یافت. بیش از نود درصد پراکسیدی که گزارش کردند مستقل از نور اندازهگیری بود. سوم، حذف پراکسید را جداگانه با یک الکترود اندازه گرفتند و دریافتند که رنگ هم تولید را افزایش میدهد و هم حذف را کند میکند. پروبی که فقط فلورسانس خالص را گزارش کند، این دو اثر را با هم خلط میکند.
این سنجش همچنان راههای مختلفی برای بهخطا رفتن دارد و متیلن بلو چندین مورد از آنها را فعال میکند. رنگ در همان ناحیهٔ قرمزی که رزوروفین تابش میکند، جذب گستردهای دارد؛ بنابراین در غلظتهای بالای رنگ، نمونه میتواند از طریق اثرات فیلتر داخلی سیگنال خودش را بپوشاند. ازاینرو، استانداردها باید همان غلظت رنگ نمونهها را داشته باشند. Amplex Red همچنین میتواند بهتنهایی دچار اکسایش نوری شود و محصول آن، رزوروفین، میتواند وارد چرخههای اکسایشکاهش نوری شود که سوپراکسید و پراکسید تولید میکنند؛ موضوعی که وقتی آزمایش همزمان یک حساسکنندهٔ نوری را نیز روشن میکند، اهمیت زیادی دارد. راهحل عملی این است که ابتدا نمونههای متیلن بلو را تحت تابش قرار دهید و سپس بخشهایی از آنها را با معرفهای Amplex در تاریکی بسنجید، نه اینکه رنگ و پروب را با هم نوردهی کنید. در نهایت، سوپراکسید دیسموتاز صرفاً سیگنال Amplex را سرکوب نمیکند: تبدیل سوپراکسید به پراکسید میتواند آن را افزایش دهد. کنترل SOD که فلورسانس را افزایش میدهد، شکست نخورده است. این کنترل، سوپراکسید را بهعنوان گونهای بالادست شناسایی کرده است.
DCFDA: شاخص غیراختصاصی اکسایش
ترکیب متیلن بلو و DCFDA منشأ بیشتر سردرگمیهاست. DCFH-DA پیشسازی است که برای وارد کردن پروب به سلول استفاده میشود. استرازهای داخل سلول گروههای استات آن را جدا میکنند و DCFH غیرفلورسنت باقی میماند؛ اکسایش DCFH نیز DCF فلورسنت تولید میکند. فهرست موادی که آن را اکسید میکنند طولانی است: رادیکالهای هیدروکسیل، واسطههای پراکسیداز و هِم، دیاکسید نیتروژن، اسید هیپوکلروس و رادیکالهای مشتق از پراکسینیتریت. پراکسید هیدروژن بهتنهایی آن را مستقیماً با هیچ نرخ قابلاستفادهای اکسید نمیکند؛ فلورسانس وابسته به پراکسید معمولاً به حضور آهن، پروتئینهای هِمدار یا شیمی پراکسیداز در زنجیرهٔ واکنش نیاز دارد.
نقدی که هر بخش روشها باید به آن ارجاع دهد، از تحلیل DCFH بهعنوان پروب توسط کالیانارامان و همکاران میآید؛ تحلیلی که در مطالعهٔ میتوکندری مغز که به همین دلیل DCFDA را کنار گذاشت خلاصه شده است. آنها نشان دادند که این رنگ آهسته واکنش میدهد، استوکیومتری مشخصی ندارد، فاقد کالیبراسیون معتبر است و با ترکیباتی غیر از ROS نیز واکنش میدهد. پروب همچنین آنچه را اندازه میگیرد تقویت میکند: اکسایش تکالکترونی DCFH یک رادیکال DCF تولید میکند که با اکسیژن واکنش میدهد و سوپراکسید میسازد؛ سوپراکسید نیز با واکنش دیسموتاسیون به پراکسید بیشتر تبدیل میشود. این خوانش تا حدی همان فرایند شیمیایی را ایجاد میکند که گزارش میدهد.
هیچیک از این موارد DCFDA را بیفایده نمیکند. بلکه آن را به ابزاری برای غربالگری تبدیل میکند، نه شناسایی. افزایش فلورسانس DCF یعنی اکسایش پروبِ وابسته به اکسیدان افزایش یافته است. این نتیجه به معنای افزایش پراکسید نیست و قطعاً به معنای افزایش کل ROS هم نیست؛ کمیتی که هیچ پروب منفردی اندازه نمیگیرد. پژوهشهای قدیمیتر متیلن بلو که بر اکسایش DCF در غلظتهای بالاتر از یک میکرومولار تکیه داشتند، اثرات پرواکسیدانی گزارش کردند، درحالیکه سامانههای دیگر در همان دوره، محافظت در برابر مرگ سلولی ناشی از پراکسید را گزارش میکردند. هر دو مشاهده میتوانند دربارهٔ یک رنگ واحد در زمینههای اکسایشکاهش متفاوت درست باشند و نتیجهٔ DCF بهتنهایی نمیتواند مشخص کند کدام اکسیدان عامل سیگنال بوده است. اهمیت پژوهش پیشین میتوکندری مغز در این است که این غربالگری را با اندازهگیری کالیبرهشدهٔ پراکسید جایگزین کرد و بار پراکسید را مستقیماً نشان داد: حتی صد نانومولار رنگ، آزادسازی پراکسید را در تمام سوبستراها و حالتهای تنفسی آزمودهشده چند برابر افزایش داد.
DCFDA یک دام دیگر نیز دارد که مختص متیلن بلو است. رنگ بهشدت رنگین و از نظر اکسایشکاهش فعال است؛ بنابراین میتواند فلورسانس را از بین ببرد، نشر را خاموش کند یا مستقل از ROS سلولی، سامانهٔ شیمیایی پروب را اکسید کند. کنترل بدون سلول، شامل رنگ و پروب اما بدون سلول، یک افزودنی تزئینی و اختیاری نیست. این همان آزمایشی است که به شما میگوید آیا رنگ با پروب برهمکنش دارد یا نه.
بهداماندازی اسپین و مصرف اکسیژن: هویت و شار
درحالیکه پروبهای فلورسنت گزارش میکنند چیزی اکسیدشدنی پدیدار شده است، رزونانس اسپین الکترونی با تلههای اسپینی گزارشی نزدیکتر به هویت آن ارائه میدهد. مطالعهٔ کلاسیک فوتوشیمی متیلن بلو از ESR برای آشکارسازی رادیکال آسکوربات حاصل از رنگ، آسکوربات و نور استفاده کرد؛ سپس در آزمایشهای مصرف اکسیژن، تشکیل پراکسید را نشان داد و در آزمایشهای بهداماندازی اسپین، تشکیل رادیکال هیدروکسیل با کاتالیز آهن را آشکار کرد. هر روش به پرسشی پاسخ داد که روشهای دیگر نمیتوانستند پاسخ دهند: ESR هویت رادیکال را مشخص کرد، مصرف اکسیژن شار واکنش را مستقل از هر پروب فلورسنت نشان داد و ترکیب آنها نشان داد که هر دو مسیر اکسیژن تکتایی و رادیکالی در همان سامانهٔ تحت نور فعالاند.
آن نتیجهٔ سال 1984 هنوز هم مانند یک هشدار خوانده میشود. در حضور نوردهی و یک عامل احیاکننده، رنگ پراکسید تولید کرد و در حضور آهن، سامانه رادیکال هیدروکسیل، واکنشپذیرترین گونهٔ این مجموعه، را ساخت. نویسندگان این موضوع را به آسکوربات موجود در چشم مرتبط دانستند و استفادهٔ بیملاحظه در چشمپزشکی را زیر سؤال بردند. خوانندگان امروزی باید به شرایط توجه کنند: نور بهعلاوهٔ عامل احیاکننده بهعلاوهٔ آهن. با حذف هرکدام از این سه، مسیر ضعیف میشود یا از بین میرود.
الکترودهای اکسیژن به شکل دیگری جایگاه خود را پیدا میکنند. الکترود نوع کلارک مصرف خالص اکسیژن را اندازه میگیرد؛ این اندازهگیری ثابت میکند که شیمی اکسایشکاهشِ هدایتشده توسط رنگ، اکسیژن مولکولی مصرف میکند و دادههای سینتیکیای ارائه میدهد که هیچ آرتیفکت فلورسانسی نمیتواند جعل کند. اما محصول را شناسایی نمیکند. تشکیل پراکسید، سوپراکسید و آب، و نیز فرایندهای واپاشی اکسیژن تکتایی، همگی میتوانند با مصرف اکسیژن همراه باشند. شار بدون هویت بهاندازهٔ هویت بدون شار ناقص است؛ به همین دلیل مقالههای قوی، الکترود را با سنجش کالیبرهشدهٔ پراکسید یا یک تله همراه میکنند.
چرا نتایج آنتیاکسیدانی متناقضاند
این سه نوع خروجی را کنار هم بگذارید تا تناقضهای ظاهری در پژوهشهای متیلن بلو به تفاوت روشها و سه واقعیت زیستی تبدیل شوند.
نخست، رنگ هم ناقل الکترون است و هم منبع پراکسید. با منحرف کردن الکترونها از جایگاههای تنفسیای که در غیر این صورت اکسیژن در آنها به سوپراکسید تبدیل میشد، میتواند یک نوع ROS را کاهش دهد؛ همزمان، شکل احیاشدهٔ آن اکسیژن را مستقیماً به پراکسید احیا میکند و نوع دیگری را افزایش میدهد. بنابراین آزمایشگاهی که با شیمی اکسایشکاهش میتوکندری و نقش مسیر میانبُر آن سروکار دارد، باید انتظار پاسخهای وابسته به پروب را داشته باشد: در همان کووت، خروجی حساس به سوپراکسید کاهش مییابد، درحالیکه خروجی پراکسید افزایش پیدا میکند.
دوم، پراکسید در دوزهای پایین یک سیگنال است، نه صرفاً عامل آسیب. مطالعهٔ میتوکندری مغز موش که در ادامهٔ پژوهش قبلی انجام شد، تولید پراکسید با تنها پنجاه نانومولار رنگ، بدون ضایعات DNA میتوکندری در سطوح درمانی را نشان داد؛ همچنین پس از پیشتیمار، محافظت در برابر ضایعات ناشی از روتنون مشاهده شد. تنها در صد میکرومولار، بسیار بالاتر از محدودهٔ درمانی، رنگ به قطعات منتخب DNA آسیب رساند؛ نور قرمز بههمراه بیست میکرومولار رنگ نیز اکسیژن تکتایی تولید کرد که به تمام قطعات آزمودهشده آسیب زد. سازوکار پیشنهادی هورمتیک است: تولید خفیف پراکسید، دفاعهای آنتیاکسیدانی مرتبط با Nrf2 و زیستزایی میتوکندری را تحریک میکند؛ بنابراین یک خوانش پرواکسیدانی کوتاهمدت پیش از پیامد آنتیاکسیدانی بلندمدت رخ میدهد. سنجشی که پس از یک ساعت خوانده میشود و سنجشی که پس از یک روز خوانده میشود، میتوانند با هم ناسازگار باشند، زیرا زیستشناسی سامانه در فاصلهٔ میان آنها تغییر کرده است.
سوم، نور تعیین میکند که اصلاً کدام مولکول حضور دارد. نوردهی با حذف گروههای متیل، رنگ را بهسمت Azure B و محصولات مرتبط تبدیل میکند و چراغ میکروسکوپ بالای یک ظرف کشت برای حساسسازی نوری آن کافی است. آزمایشهای تاریک و روشن، آزمایشهای متفاوتیاند و بخش کنترلهای نوردهی و کار با رنگ در هر پروتکل باید آنها را همینگونه در نظر بگیرد.
مجموعهٔ حداقلی کنترلها و شیوهٔ خواندن هر ادعا
مقایسهٔ زیر مرجع اصلی تدوینشده برای این مقاله است. پیش از پذیرفتن هر نتیجهٔ ROS دربارهٔ متیلن بلو، بررسی کنید که نویسندگان کدام ردیف را اجرا کردهاند و از کدام گذشتهاند.
| کنترل | چه چیزی را رد میکند | نحوهٔ اجرا |
|---|---|---|
| تاریکی در برابر نوردهی تعریفشده | خلط اثرات اکسایشکاهش حالت پایه با فوتوشیمی | رنگ یکسان، ماتریس یکسان؛ یک گروه در تاریکی و گروه دیگر زیر دوز نوری اندازهگیریشده |
| پروب بهعلاوهٔ نور، بدون رنگ | فوتوشیمی پروب | پروب را بهتنهایی نوردهی کنید؛ هر سیگنال، خط پایهٔ آرتیفکت است |
| رنگ بهعلاوهٔ نور، بدون سلول یا سوبسترا | خلط ROS سلولی با ROS ذاتی رنگ | ماتریس بدون سلول؛ مشخص میکند رنگ بهتنهایی چه تولید میکند |
| کاتالاز | سیگنال غیرپراکسیدی در سنجش Amplex | سیگنال باید کاهش یابد؛ توجه کنید که رنگِ تحت نور میتواند به خود کاتالاز آسیب بزند |
| SOD | مشارکت سوپراکسید | افزایش سیگنال Amplex نشاندهندهٔ نقش بالادستی سوپراکسید است، نه شکست سنجش |
| شلاتکنندهٔ آهن مانند دفروکسامین | شیمی هیدروکسیل از نوع فنتون | بررسی میکند که آیا آهنِ فعال از نظر اکسایشکاهش، عامل سیگنال DCFH یا تله است |
| استانداردهای پراکسید در ماتریس کامل | فلورسانس کالیبرهنشده | افزودن مقادیر معلوم پراکسید با غلظت رنگ و شرایط نوری یکسان |
از این مقایسه، یک قاعدهٔ عملی برای خواندن نتایج به دست میآید. Amplex همراه با پراکسیداز، با کالیبراسیون و بررسی کاتالاز، شواهدی دربارهٔ پراکسید ارائه میدهد. DCFDA شواهدی دربارهٔ اکسایش غیراختصاصی پروب است و نه چیزی بیشتر. بهداماندازی اسپین همراه با کنترلهای جاذب رادیکال، شواهدی دربارهٔ هویت رادیکال ارائه میدهد. مصرف اکسیژن شواهدی دربارهٔ شار است. جملهای که بیش از توان سنجش خود ادعا میکند، هرقدر هم با اطمینان نوشته شده باشد، جملهای دربارهٔ پروب است، نه دربارهٔ رنگ. بحثهای مرتبط دربارهٔ وابستگی به دوز و محدودهٔ هورمتیک، جریان الکترون میتوکندری، تداخل در سنجش نمونههای رنگآمیزیشده و آرتیفکتهای نوردهی در میکروسکوپی، هریک از این نکات را بسط میدهند و هر نکته پس از جایگزینی ارجاع موقت آن نیز معتبر میماند.