
Artikel
Methylenblau und NAD+/NADH: das zelluläre Redoxgleichgewicht verstehen
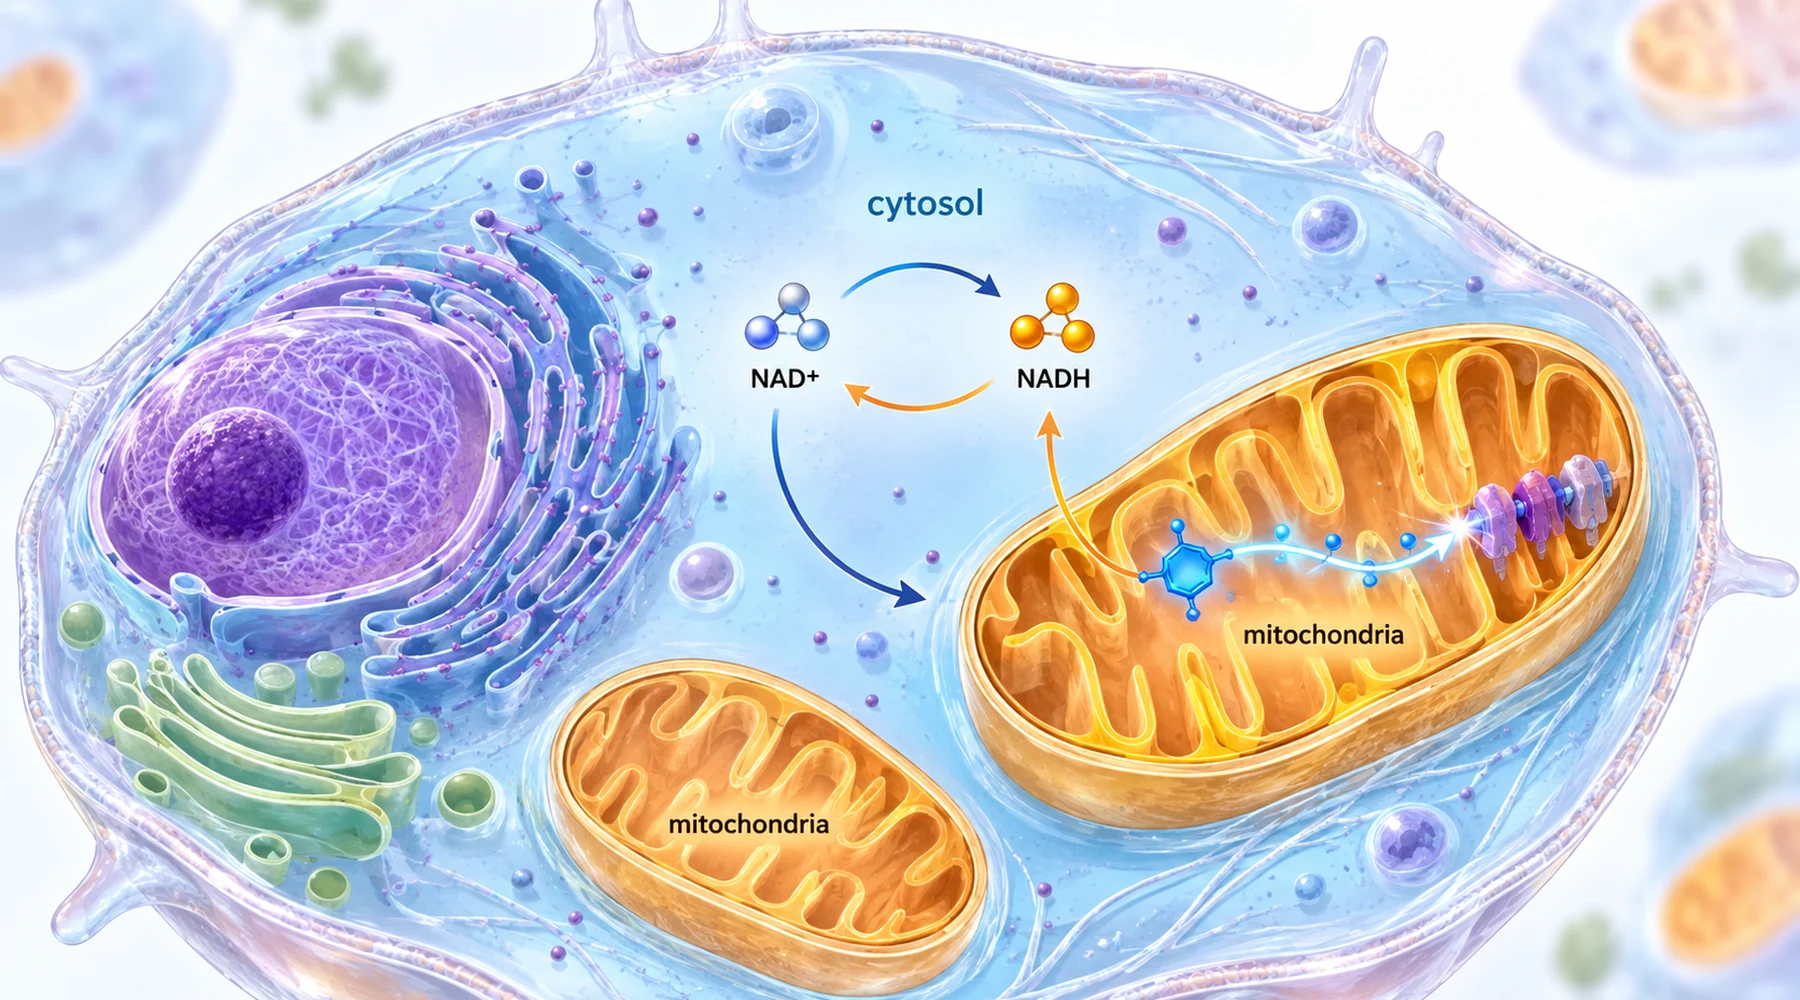
Berichte über Methylenblau und NAD+ vermischen häufig drei unterschiedliche Aussagen. Die erste lautet, dass sich das Verhältnis von NAD+ zu NADH in Richtung des oxidierten Zustands verschoben hat. Die zweite lautet, dass die Zelle insgesamt mehr NAD enthält. Die dritte lautet, dass sich die Energieproduktion erholt hat. Das klingt nach einer einheitlichen Geschichte über die Wiederherstellung des Stoffwechsels. In den Experimenten fallen diese Befunde jedoch regelmäßig auseinander. Gerade die Fälle, in denen sie voneinander abweichen, liefern die interessanten Ergebnisse.
Die Verwirrung ist nachvollziehbar, weil für alle drei Größen dieselben Begriffe verwendet werden. NAD+ nimmt in Stoffwechselreaktionen Elektronen auf und wird zu NADH. Anschließend oxidieren Mitochondrien NADH an Komplex I wieder zu NAD+ und nutzen die freigesetzte Energie für die ATP-Synthese. Eine ausführlichere Darstellung dieses Elektronenwegs findet sich in der Erklärung zum mitochondrialen Elektronentransport, die energetische Seite in ATP und Energiestoffwechsel. Ein Verhältnis und ein Pool sind jedoch unterschiedliche Größen. Das Verhältnis beschreibt, wie sich die vorhandenen Transportmoleküle auf beladene und unbeladene Zustände verteilen. Der Pool beschreibt, wie viele Transportmoleküle überhaupt vorhanden sind. Ein günstigeres Verhältnis bei gleichbleibendem Pool bedeutet Umverteilung, keine Neubildung.
Zwei Kompartimente, zwei Indikatoren
Eine zweite Unterscheidung führt zu leicht übersehenen Fehlinterpretationen. Die NAD-Pools im Zytosol und in den Mitochondrien sind durch die innere Mitochondrienmembran weitgehend voneinander getrennt. Daher kann jedes Kompartiment unabhängig vom anderen einen relativ oxidierten oder reduzierten Zustand aufweisen. Ein einzelner Messwert für die gesamte Zelle verdeckt diesen Unterschied.

In der Leberforschung wurde diese Trennung der Kompartimente messbar gemacht. Das Gleichgewicht zwischen Laktat und Pyruvat zeigt das zytosolische Verhältnis von NAD+ zu NADH an, weil die Laktatdehydrogenase diese beiden Paare miteinander koppelt. Das Gleichgewicht zwischen 3-Hydroxybutyrat und Acetoacetat zeigt über eine ähnliche Kopplung das mitochondriale Verhältnis an. Werden beide Paare in Gewebe gemessen, das durch Gefrierklemmung schockgefroren wurde, wie in der Studie zur chronischen Ethanolfütterung bei Ratten, erhält man zwei Redoxmesswerte aus einer Leber. Eine Substanz kann den einen stärker verändern als den anderen.
Methylenblau wirkt in diesem System als Elektronenüberträger, nicht als Brennstoff. Es nimmt in der Nähe von Komplex I Elektronen von NADH auf und wird dabei reduziert. Anschließend gibt es sie an nachgeschaltete Träger wie Cytochrom c weiter. Netto wird NADH oxidiert, ohne den vollständigen normalen Weg zu durchlaufen. Dieser Mechanismus erklärt sowohl das Potenzial als auch die Grenzen: Methylenblau kann einen Rückstau von Reduktionsäquivalenten abbauen, aber weder einen beschädigten Komplex wiederaufbauen noch neue NAD-Moleküle synthetisieren.
Fünf Studien, ein Muster auseinanderfallender Ergebnisse
Die folgende Tabelle ordnet die fünf Studien nach Gewebe, Redoxendpunkt, Energieendpunkt und dem, was sich tatsächlich erholte. Lesen Sie die letzten beiden Spalten zusammen. Ihr Zusammenhang ist der Kern dieses Artikels.
| Gewebe und Schädigung | Redoxendpunkt unter Methylenblau | Endpunkt für Energie und Signalwege | Funktionelles Ergebnis |
|---|---|---|---|
| Rattenleber, chronische Ethanoldiät | Zytosolische und mitochondriale NAD+/NADH-Verhältnisse weitgehend wiederhergestellt; Glycerol-3-phosphat normalisiert | ATP durch Ethanol oder Behandlung unverändert; leichter ATP-Abfall mit dem Farbstoff zum späten Messzeitpunkt | Fetteinlagerung unverändert; Lipide und Triacylglycerol blieben erhöht |
| Hepatozyten und Leber von Mäusen mit fettreicher Ernährung | NAD+/NADH-Verhältnis und NAD+-Gehalt in Zellen und Leber erhöht | SIRT1 erhöht, PGC-1alpha deacetyliert, mitochondriale DNA und Sauerstoffverbrauch erhöht, SIRT1-abhängige AMPK-Aktivierung | Fettansammlung in der Leber und Steatohepatitis vermindert |
| Herz diabetischer Ratten | NADH/NAD+-Verhältnis während der Substratoxidation in isolierten Mitochondrien gesenkt | SIRT3-Aktivität erhöht; Lysinacetylierung an 83 Stellen auf 34 Proteinen vermindert | Herzvolumina und Ejektionsfraktion verbessert; der Komplex-I-Defekt selbst nicht behoben |
| Netzhaut von Mäusen mit AIF-Mangel und mit Rotenon behandelte Photorezeptorzellen | NADH/NAD+-Verhältnis in Zellen normalisiert; oxidativer Stress vermindert | ATP-Defizit in Zellen nicht behoben; mitochondriale Stresssignalwege gedämpft | Netzhautdicke und Photorezeptormarker erhalten; Zellüberleben verbessert |
| Achillessehne von Menschen und Ratten, Schädigung durch Oxidanzien und Kollagenase | NAD+-Gleichgewicht und biochemische Messwerte des gesamten NAD-Pools in Richtung der Kontrollwerte wiederhergestellt | ATP erhöht und ROS vermindert, wo eine Erholung eintrat | Matrixmarker verbessert, außer bei direkter Blockade von Komplex I, bei der sich die biochemischen Werte veränderten, das Gewebe jedoch nicht erholte |
Wo die Redoxkorrektur keine Gewebeerholung bewirkte
Die älteste Studie dieser Gruppe liefert weiterhin die deutlichste Warnung. Bei Ratten, die 36 Prozent ihrer Energie aus Ethanol erhielten, sanken die zytosolischen und mitochondrialen NAD+/NADH-Verhältnisse, gemessen anhand beider Indikatorpaare. Methylenblau in einer Menge von etwa 42 mg pro kg pro Tag im Futter verhinderte diese Verschiebungen weitgehend. Dennoch verdreifachte sich das hepatische Triacylglycerol zum späten Messzeitpunkt ungefähr, unabhängig davon, ob der Farbstoff vorhanden war. Auch histologisch zeigte sich dieselbe zentrilobuläre Fetteinlagerung. Die Autoren zogen daraus unmittelbar eine unbequeme Schlussfolgerung: Die Redoxverschiebung, die mit der Ethanoloxidation einhergeht, verursacht für sich genommen nicht die Fettleber. Wer ein korrigiertes Verhältnis mit einem wiederhergestellten Organ gleichsetzt, würde diese Arbeit falsch wiedergeben. Das vollständige Studiendesign, einschließlich Kontrolltieren mit angeglichener Futtermenge und Probenentnahme um Mitternacht bei maximaler Intoxikation, ist in der Ethanol-Leber-Studie beschrieben.
Dem steht die Leberstudie mit fettreicher Ernährung gegenüber, in der eine vergleichbare Verschiebung des Verhältnisses mit einer tatsächlichen Verbesserung des Gewebes einherging. In Hepatozyten und in der Mäuseleber nach oraler Verabreichung erhöhte Methylenblau das NAD+/NADH-Verhältnis. Die Signalkette wurde Schritt für Schritt nachverfolgt: SIRT1 erhöht, PGC-1alpha deacetyliert, Marker der mitochondrialen Biogenese und Sauerstoffverbrauch erhöht, anschließend AMPK, CPT-1 und PPARalpha aktiviert. Dabei wurde gezeigt, dass die AMPK-Aktivierung von SIRT1 abhing. Bei Mäusen mit fettreicher Ernährung sammelte sich weniger Fett in der Leber an. Die vorgeschlagene Erklärung lautet, dass die Redoxverschiebung hier eine genregulatorische Achse aktivierte, statt lediglich das biochemische Gleichgewicht zu verändern. Einzelheiten beschreibt die Leberstudie zu SIRT1 und AMPK. Dieselbe Art von Messgrößen wie in der Ethanolstudie, aber ein gegenteiliges Ergebnis für das Gewebe. Den Unterschied macht der nachgeschaltete Signalweg, nicht das Verhältnis allein.
Herz und Netzhaut: Sirtuine, Acetylierung und Erholung ohne ATP-Wiederherstellung
Die Studie am diabetischen Herzen verknüpft die Redoxverschiebung über ein anderes Sirtuin mit der Proteinacetylierung. Diabetische Mitochondrien weisen eine übermäßige Lysinacetylierung an Stoffwechselenzymen auf, die mit einer eingeschränkten Flexibilität bei der Substratnutzung einhergeht. Methylenblau wurde mit 10 mg pro kg pro Tag verabreicht und erleichterte in isolierten Mitochondrien die NADH-Oxidation dosisabhängig im Bereich von 6 bis 18 Mikromolar. Es erhöhte die SIRT3-Aktivität und senkte die Acetylierung auf breiter Ebene. Gleichzeitig verbesserten sich Herzvolumina und Ejektionsfraktion, obwohl die zugrunde liegende Beeinträchtigung von Komplex I bestehen blieb. Die Arbeit geht ausdrücklich auf das in anderen Veröffentlichungen beschriebene Dosisverhalten ein: Niedrige Konzentrationen begünstigen die Funktion als Elektronenüberträger, während höhere Konzentrationen Elektronen auf unproduktive Wege umleiten können. Der Effekt ist daher hormetisch und nicht monoton. Die proteomische Untersuchung und die Herzmessungen sind in der Studie zur Acetylierung im diabetischen Herzen dokumentiert. Der zugrunde liegende Zusammenhang mit oxidativem Stress wird in oxidativer Stress und ROS-Kontrolle erläutert.
Die Netzhautstudie zeigt die stärkste Trennung dieser Ergebnisse. Bei Harlequin-Mäusen mit AIF-Mangel, einem Defekt im Zusammenbau von Komplex I, erhielt Methylenblau die Netzhautdicke, die Außensegmente der Photorezeptoren sowie Marker für Stäbchen, Zapfen, Müller- und Ganglienzellen. In mit Rotenon behandelten 661W-Photorezeptorzellen normalisierte der Farbstoff bei 15 Mikromolar das Verhältnis von NADH zu NAD+ und senkte die reaktiven Sauerstoffspezies. ATP blieb jedoch bei den Konzentrationen vermindert, die das Überleben förderten. Struktur und Überleben wurden ohne Wiederherstellung der Energieversorgung erhalten. Gleichzeitig wurden die mitochondriale Antwort auf ungefaltete Proteine und die Mitophagie gedämpft. Dieses Ergebnis stellt den Farbstoff als Mittel zur Entlastung von reduktivem und oxidativem Stress dar, statt als Mittel zur Wiederherstellung der Energieversorgung. Dokumentiert ist es in der Studie zum Schutz retinaler Photorezeptoren.
Sehne: das Experiment, in dem sich die biochemischen Werte änderten, das Gewebe aber nicht erholte
Die Arbeit zur Achillessehne enthält beide Muster in einer einzigen Veröffentlichung und sollte sorgfältig gelesen werden. Eine vollständige Aufschlüsselung der einzelnen Versuchsarme findet sich in der Analyse zur Achillessehnen-Tendinopathie von 2026. Erkranktes Sehnengewebe zeigte einen NAD+-Mangel, ein niedriges Verhältnis von NAD+ zu NADH, schwache Komplex-I-Marker, wenig ATP und eine gestörte Kollagenstruktur. Methylenblau stellte die biochemischen NAD-Werte und ATP wieder her und verbesserte Matrixmarker in Präparaten aus Ratten, menschlichen Explantaten und Zellen.
Dann folgten zwei gezielte Eingriffe. Unter einer Rotenonblockade von Komplex I schützte der Farbstoff weiterhin die biochemischen NAD+-Werte und ATP-bezogene Messgrößen, konnte jedoch weder die Oxidanzienbelastung verringern noch das Kollagengleichgewicht wiederherstellen oder die Lebensfähigkeit erhalten. Bei einem AIF-Knockdown, bei dem der Komplex-I-Apparat unzureichend aufgebaut statt pharmakologisch blockiert war, bewirkte der Farbstoff eine breite Erholung: NAD-Gleichgewicht, oxidativer Stress, Membranpotenzial und Kollagenmarker verbesserten sich. Die Schlussfolgerung ist präzise. Ein günstigerer NAD-Messwert lässt sich auch bei blockiertem Komplex I aufrechterhalten. Die Gewebeerholung hing in diesem Präparat jedoch von einem funktionsfähigen Komplex-I-Weg ab. Die Verschiebung des Verhältnisses ist in diesem Zusammenhang notwendig, aber nicht hinreichend. Dieser Punkt wird in der Studie zum Redoxgleichgewicht in Sehnen weiter ausgeführt.
Wie sich die nächste Redoxaussage einordnen lässt
Drei Prüfschritte verhindern die meisten Fehlinterpretationen. Erstens: Prüfen Sie, zu welchem Kompartiment das Verhältnis gehört und mit welchem Indikatorpaar es ermittelt wurde. Ein zytosolischer Laktat-Pyruvat-Befund sagt nichts unmittelbar über die mitochondriale Matrix aus. Zweitens: Prüfen Sie, ob die Arbeit eine Verschiebung des Verhältnisses, einen größeren Gesamtpool oder eine ATP-Erholung berichtet, und behandeln Sie jeden dieser Befunde getrennt. Drittens: Prüfen Sie, welche Schäden bestehen blieben. Unveränderte Fetteinlagerungen, ein fortbestehender Komplex-I-Defekt oder ein fortbestehendes ATP-Defizit treten in diesen Arbeiten jeweils neben einer tatsächlichen Verbesserung des Redoxzustands auf.
Dies ist keine Dosierungsanleitung. Alle fünf Studien untersuchen Tiere, Zellen oder Gewebepräparate mit kontrolliert herbeigeführten Schädigungen: flüssige Ethanoldiäten, Streptozotocin-induzierter Diabetes, genetische Komplex-I-Defekte, Rotenon, Peroxid und Kollagenase. Konzentrationen in Kulturschalen lassen sich nicht ohne Weiteres in orale Dosen umrechnen. In keiner dieser Arbeiten nahmen Menschen Methylenblau zur Beeinflussung des Redoxgleichgewichts ein. Die gemeinsame Aussage zur Redoxpharmakologie und Dosierung ist enger gefasst und nützlicher als jedes Anwendungsschema: Methylenblau oxidiert NADH und verschiebt das gemessene Verhältnis. In manchen Geweben setzen Sirtuine diese Verschiebung in Deacetylierung und metabolische Umprogrammierung um. Ob sich dadurch auch das Gewebe erholt, hängt von einem Funktionsapparat ab, den der Farbstoff nicht ersetzen kann.