
Artikel
Methylenblåt som antioxidant og prooxidant: Hvad ændrer udfaldet?
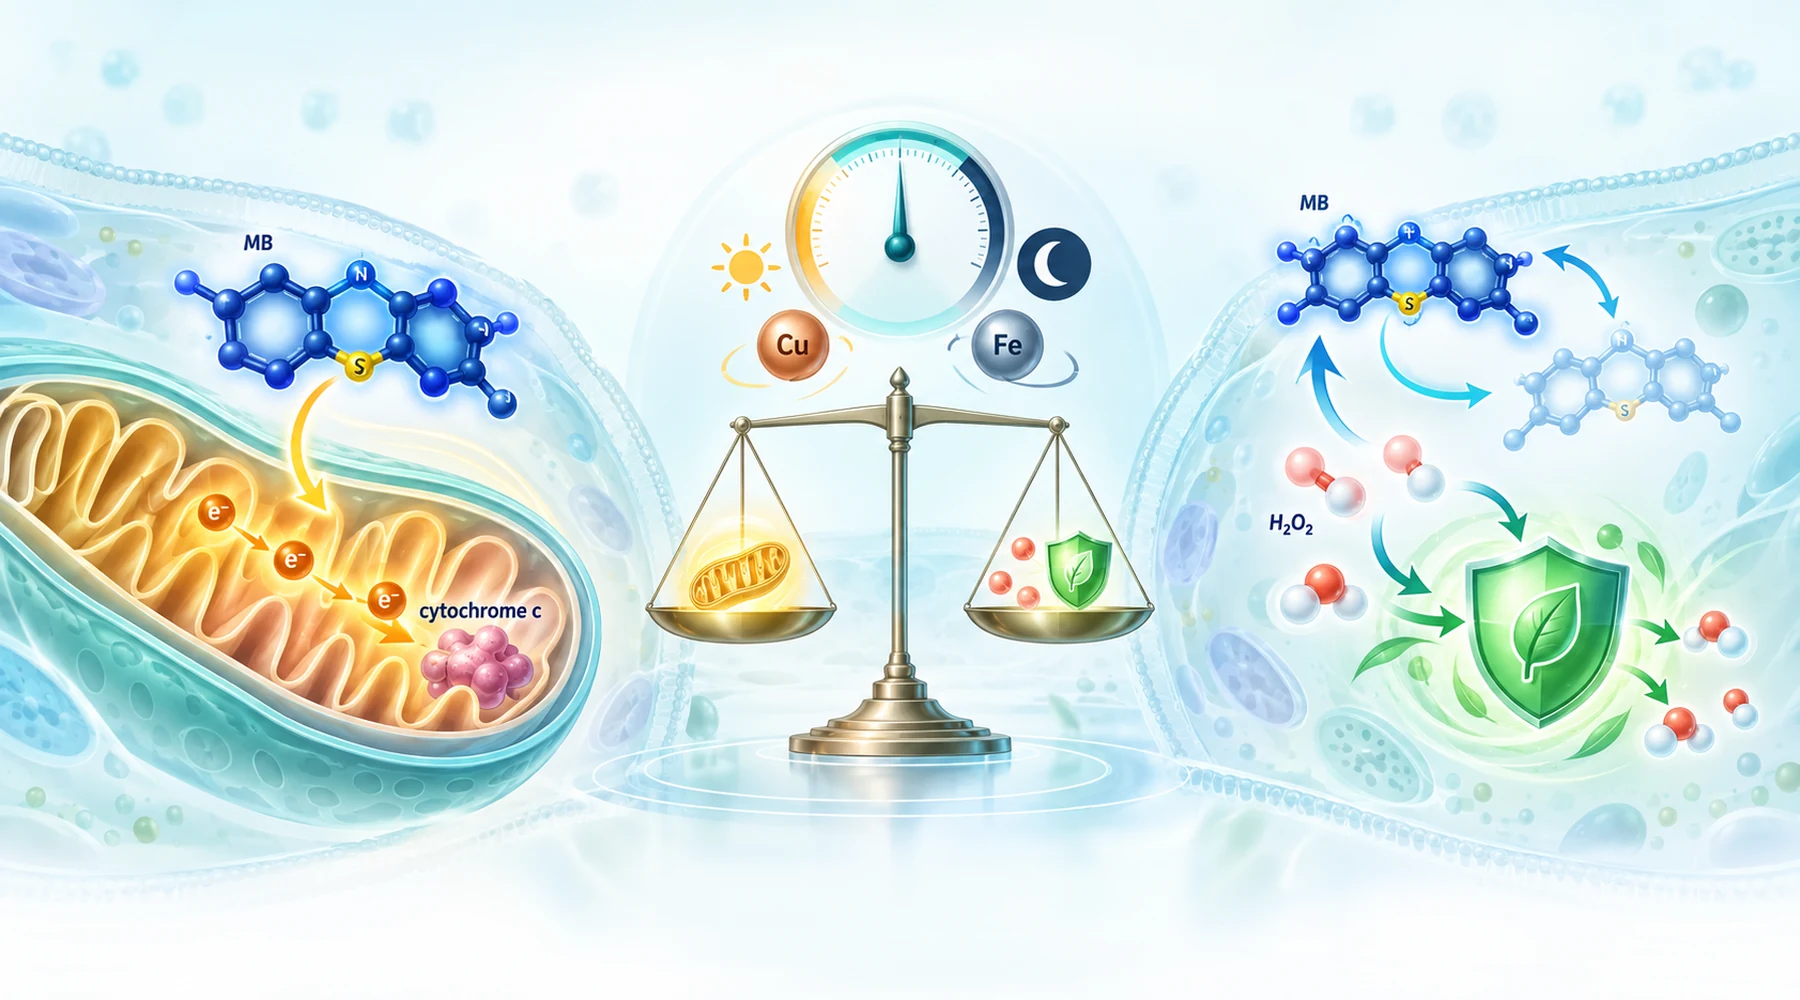
Forestil dig, at to laboratorier undersøger det samme blå farvestof og rapporterer modsatrettede resultater. I det første respirerer isolerede hjernemitokondrier bedre og danner mere ATP. I det andet frigiver det samme præparat langt mere hydrogenperoxid. Begge rapporter er korrekte. De beskriver den samme cyklus set fra hver sin ende, og forvirringen opstår, når læserne opfatter den ene ende som hele historien.
Fejlen er at spørge, hvilken etiket der passer på molekylet. Methylenblåt fungerer som mellemled for elektroner, som oversigten over dets cellebiologiske mål viser i en bredere sammenhæng. Oxideret farvestof modtager elektroner og bliver til farveløst leucoMB. LeucoMB giver elektronerne videre og bliver blåt igen. Det, man observerer, afhænger af, hvem der afgiver elektronerne, hvem der modtager dem, og om systemet kan fjerne det hydrogenperoxid, der dannes undervejs. Det relevante spørgsmål er aldrig, om farvestoffet er en antioxidant. Det er, hvad betingelserne lader elektronoverførslen gøre.
Cyklussen, der skaber begge sider
I mørke er den centrale cyklus kort. NADH, NADPH eller elektronbærere i respirationskæden reducerer farvestoffet. Det reducerede farvestof har derefter konkurrerende reaktionsveje. Det kan overføre elektroner til cytokrom c og understøtte elektronstrømmen uden om et beskadiget kompleks, hvilket forklarer, hvorfor respiration og membranpotentiale delvist genoprettes ved blokade af kompleks I eller III. Eller det kan overføre elektroner direkte til ilt, hvilket gendanner den blå form og producerer hydrogenperoxid. Fordi farvestoffet gendannes, kan en lille mængde gentage denne cyklus mange gange og løbende forbruge reducerende ækvivalenter og danne peroxid.
To yderligere forgreninger ændrer kemien fuldstændigt. Frit kobber eller jern omdanner dette diffunderbare peroxid til langt mere ødelæggende lokale oxidanter gennem reaktioner af Fenton-typen. Rødt lys åbner en særskilt fotokemisk vej, hvor exciteret farvestof overfører energi til ilt og danner singlet-ilt, en form, der gennemgås i detaljer i forklaringen af fotokemi af type I og type II. Redoxcykling i mørke, metalforstærket skade og fotodynamisk skade er tre forskellige mekanismer, som blot deler det samme udgangsmolekyle.
Matrix over betingelser og udfald
Tabellen nedenfor er værd at gemme. Hver række viser én variabel, den retning, den påvirker udfaldet i, og forsøget bag. Positiv betyder et beskyttende eller forbedret måleresultat. Negativ betyder mere oxidant, større udtømning eller mere skade.
| Betingelse | Udfaldets retning | Hvad forsøget viste |
|---|---|---|
| Lav koncentration, 0.1 til 1 uM, isolerede mitokondrier | Positiv bioenergetik samt mere peroxid | 0.1 uM forbedrede iltforbruget i hjertemitokondrier fra raske og diabetiske rotter; 100 nM til 1 uM genoprettede delvist ATP, membranpotentiale og calciumoptag i blokerede hjernemitokondrier, mens peroxidfrigivelsen steg under alle betingelser |
| Højere koncentration, over 5 uM, celler uden glukose | Negativt oxidantsignal | Endotelceller oxiderede en generel ROS-probe og mistede reduceret glutathion over 5 uM, når glukose ikke var til stede; tilsætning af glukose forhindrede begge dele |
| Substrater til kompleks I (glutamat plus malat) | Mere peroxid | Undersøgelser af både hjerne- og hjertemitokondrier fandt øget peroxidfrigivelse med NADH-koblede substrater |
| Succinat plus rotenon, hjertemitokondrier, 0.1 uM | Mindre peroxid i den forsøgsprotokol | Det eneste klart antioxidative peroxidresultat i materialet; bemærk, at protokollen omfattede rotenon og et andet væv, så substratet alene forklarer det ikke |
| Rødt lys, 20 uM plus 630 nm | Negativ DNA-skade | Ingen signifikante læsioner i mitokondrie-DNA i mørke ved 20 uM; den samme koncentration med rødt lys beskadigede alle undersøgte fragmenter |
| Meget høj koncentration i mørke, 100 uM | Negativ selektiv DNA-skade | Selektive læsioner i mitokondrie-DNA ved purinrige sekvenser, et markant skift fra peroxidsignalet ved nanomolære koncentrationer |
| Kobber eller jern plus NADH, cellefrit DNA | Negative oxidative læsioner | Kobber rettede skaden mod en hotspot-sekvens i p53; jern-EDTA forårsagede omfattende skade; katalase og metalkelatorer blokerede de respektive reaktionsveje; oxideret guanin steg |
| Glukose til stede, intakte celler | Beskyttende buffering trods hurtigere cykling | Glukose øgede reduktionen af farvestoffet, men sænkede nettobelastningen, hvilket stemmer overens med pentosefosfatvejens tilførsel af NADPH til regenerering af antioxidanter |
| Celler med højt ascorbatindhold | Blandet: ascorbat blev forbrugt, probesignalet blev dæmpet | Farvestoffet oxiderede gradvist intracellulært ascorbat, selv med glukose til stede, og hæmmede samtidig delvist oxidationen af proben; forsvarsreserven betalte prisen |
| Rotenon-forbehandlede dyr, farvestoffet givet først | Positivt vævsudfald | Forbehandling med farvestoffet reducerede rotenon-inducerede læsioner i mitokondrie-DNA i musenes midthjerne, selv om det øgede peroxid i isolerede mitokondrier |
Mønstret på tværs af rækkerne er pointen. Peroxidproduktion og biologisk beskyttelse er adskilte akser. En behandling kan give et negativt resultat på den første og et positivt på den anden samtidig.
Hvorfor den samme dosis giver forskellige svar
Koncentrationen bestemmer kapaciteten for elektrontransport, ikke udfaldet. Peroxidfrigivelsen fra hjernemitokondrier steg målbart fra 50 nM og opefter i undersøgelser af intakte hjernemitokondrier, mens tydelig skade på mitokondrie-DNA krævede 100 uM i mørke. Det er omtrent en totusinddobbel forskel mellem det første signal og genotoksicitet, men det er ikke en sikkerhedsmargin. Endepunkterne, de cellulære rum og eksponeringstiderne er forskellige, så tallene markerer særskilte fænomener snarere end punkter på én kurve. Diskussionen af dosis-respons placerer denne type forskel mellem svagt signal og omfattende skade i en bredere sammenhæng med hormese.
Substratet afgør, hvor elektronerne kommer ind. NADH-koblede energikilder giver farvestoffet rigeligt med reducerende ækvivalenter til både den nyttige omvej og den spildende reaktion med ilt. Den ofte citerede opsummering om, at succinat gør farvestoffet antioxidativt, mens glutamat gør det prooxidativt, overfortolker dataene. Det skyldes, at hjertestudiets betingelser for peroxidmåling med succinat også omfattede rotenon og brugte et andet væv og en anden dosis end hjerneundersøgelsen, der fandt øget peroxid under alle substrat- og respirationstilstande.
Lys ændrer mekanismen, ikke kun omfanget. Den tydeligste kontrast i materialet er, at 20 uM i mørke ikke havde nogen påviselig virkning på fragmenter af mitokondrie-DNA, mens 20 uM under rødt lys beskadigede dem alle. Den, der sammenligner et belyst forsøg med et forsøg i mørke, sammenligner fotokemi med redoxcykling.
Metaller omdanner oxidanten. Uden metaller danner farvestoffets cyklus i mørke peroxid, et diffunderbart molekyle, som celler også bruger som signal. Med tilgængeligt kobber eller jern driver NADH-reduceret farvestof metalreduktion, og det reducerede metal aktiverer peroxid til hydroxyl-lignende eller kobberperoxidbaserede forbindelser tæt ved DNA. Det er sådan, cellefrie undersøgelser med NADH og metalioner frembragte både hotspot-selektiv og omfattende DNA-skade ud fra det samme farvestof. Det er metalhåndteringen i det pågældende rum, ikke farvestoffet alene, der afgør, om denne reaktionsvej har betydning.
Tilgængeligheden af energikilder afgør, om cellen kan betale prisen. I endotelceller udsat for 2 til 20 uM farvestof blotlagde fjernelse af glukose den oxidative omkostning, mens tilførsel af glukose fjernede den, selv om glukose også fremskyndede reduktionen af farvestoffet. Hurtigere cykling med forsynede forsvarssystemer slår langsommere cykling med udtømte forsvarssystemer. Betragt enhver påstand om oxidanter, der udelader glukose- eller NADPH-status, som ufuldstændig.
Vævet afgør, hvilket apparat der er til rådighed. Endotelceller regenererer NADPH gennem glukosemetabolismen og har cytosoliske antioxidantreserver. Isolerede mitokondrier har intet af dette. Oprenset DNA har ikke engang reparationssystemer. Et resultat i ét præparat siger kun lidt om de andre, og derfor bliver den planlagte artikel om vævsspecifikke reaktioner nødt til at holde disse systemer adskilt.
Direkte måling er ikke det samme som efterfølgende forsvar
Mange fremstillinger slår to lag sammen, som forsøgene holder adskilt. Det ene lag spørger, hvor meget oxidant der opstod. Det andet spørger, hvordan cellen reagerede.
Peroxidanalyser af Amplex-typen ligger tættest på det første lag, og selv de måler nettoflux, altså produktion minus nedbrydning minus eksport. Undersøgelsen af hjernemitokondrier fandt ændringer på begge sider: Der blev dannet mere peroxid, og en tilsat peroxidbolus blev fjernet langsommere. Længere nede i kæden ligger glutathionoxidation, ascorbatforbrug, oxideret guanin og DNA-læsioner, der blokerer polymerase. Hvert trin tilføjer biologi mellem oxidanten og måleresultatet.
Nrf2-drevne antioxidantenzymer og mitokondriel biogenese hører til det andet lag. Det er tilpasningsprogrammer, som en mild peroxidpuls kan udløse, og forfatterne til undersøgelsen af beskyttelse af hjernemitokondrier foreslår netop denne milde stress som udløser. De bemærker samtidig, at årsagskæden gennem Nrf2 bygger på tidligere arbejde snarere end på deres egen fuldstændige påvisning. Beskyttelse, der opstår timer senere gennem nye proteiner, betyder ikke, at den indledende kemi var antioxidativ. Det betyder, at en lille prooxidativ hændelse købte et større forsvar. Retningslinjerne for at læse sådanne påstande, herunder analysebegrænsninger og forskelle mellem præparater, er emnet for guiden til at læse forskning om methylenblåt.
Hvorfor analyser er uenige
En generel probe som dihydrofluorescein måler bred oxidation af proben, ikke en peroxidkoncentration. Den afhænger af peroxidase- og hæmkemi og kan overse en peroxidstigning, som en kalibreret Amplex-analyse opfanger. Undersøgelsen af hjernemitokondrier fandt kraftigt forhøjet peroxid uden et tilsvarende superoxidsignal. Det er en advarsel mod at citere en enkelt farvestofbaseret påstand om antioxidativ virkning. Optisk overlap er et relevant spørgsmål at kontrollere, da farvestoffet absorberer synligt lys tæt på almindelige excitations- og emissionsbånd. Den omhyggelige undersøgelse kalibrerede dog mod kendte peroxidmængder, reducerede eksponeringen for excitationslys med kun en lille ændring i signalet og bekræftede langsommere peroxidfjernelse med en separat elektrode. Interferens skal kontrolleres, men er ikke en grund til automatisk at afvise resultatet.
Calciumresultatet illustrerer det samme behov for præcision. Akut tilførsel af farvestoffet ændrede ikke den samlede calciumbelastning før permeabilitetsovergangen i hjerteundersøgelsen, men det forbedrede hastigheden af calciumoptaget i blokerede hjernemitokondrier i den diabetesfokuserede undersøgelse af hjertemitokondrier. Forskellige endepunkter, forskellige systemer, ingen modsigelse.
En tjekliste, før du stoler på en konklusion
Betragt enhver konklusion om antioxidativ eller prooxidativ virkning som en rapport om et system, og stil fem spørgsmål. Ved hvilken koncentration og i hvilket rum? Med hvilken elektrondonor og hvilken konkurrerende acceptor? I lys eller mørke, og ved hvilken bølgelængde og dosis? Med hvilke tilgængelige metaller, og hvordan er forsyningen af energikilder og antioxidantreserver? Og med hvilken analyse, der måler oxidantflux, skade eller tilpasningsrespons? Ændr ét af svarene, og det samme molekyle kan bevæge sig på tværs af matrixen fra beskyttende til skadeligt uden noget paradoks.