
Článek
Methylenová modř a NAD+/NADH: interpretace buněčné redoxní rovnováhy
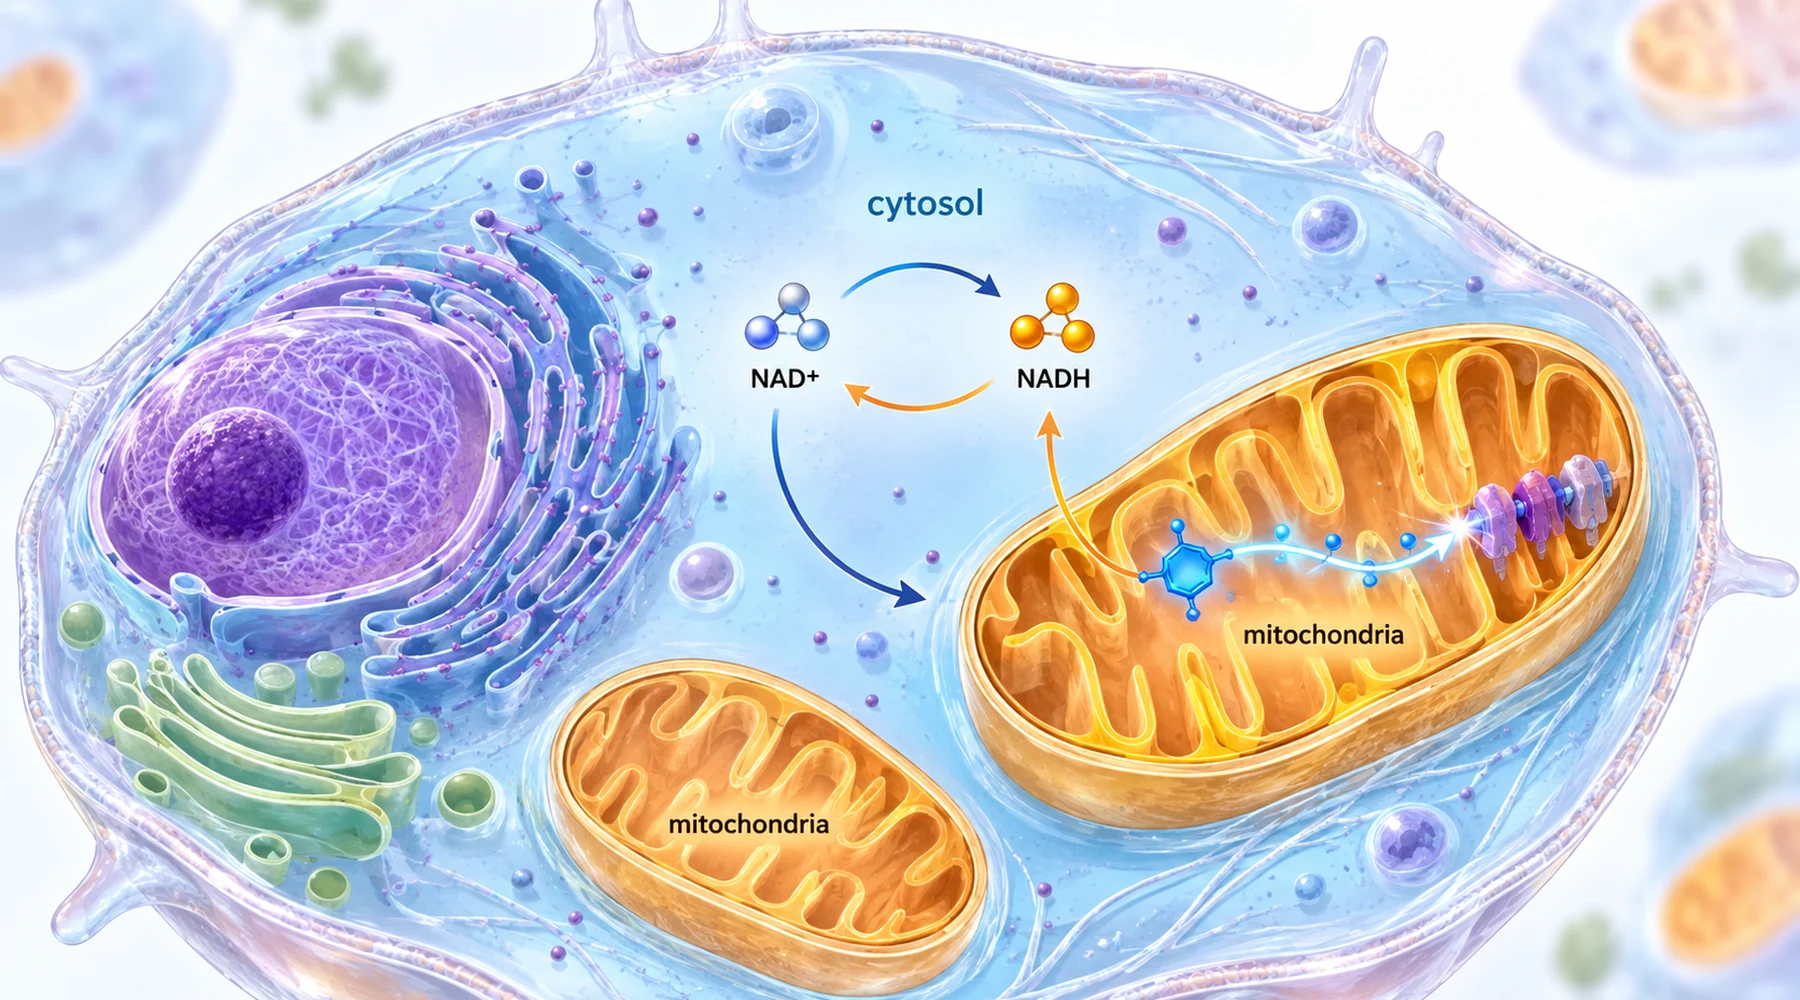
Zprávy o methylenové modři a NAD+ často směšují tři různá tvrzení do jednoho. První říká, že se poměr NAD+ k NADH posunul směrem k oxidovanému stavu. Druhé tvrdí, že buňka obsahuje více celkového NAD. Třetí uvádí, že se obnovila tvorba energie. Zní to jako jeden příběh o obnově metabolismu. V experimentech se však tyto výsledky pravidelně rozcházejí a nejzajímavější jsou právě případy, kdy se liší.
Tento zmatek je pochopitelný, protože všechny tři veličiny sdílejí stejný slovník. NAD+ přijímá elektrony při metabolických reakcích a mění se na NADH. Mitochondrie pak na komplexu I oxidují NADH zpět na NAD+ a uvolněnou energii využívají k syntéze ATP. Podrobnější popis této dráhy elektronů najdete ve vysvětlení mitochondriálního transportu elektronů a energetickou stránku v článku ATP a energetický metabolismus. Poměr a zásoba jsou ale dvě různé věci. Poměr říká, jak je stávající soubor přenašečů rozdělen mezi naložený a nenaložený stav. Zásoba říká, kolik molekul přenašečů vůbec existuje. Lepší poměr při stejné zásobě znamená přerozdělení, nikoli tvorbu.
Dva kompartmenty, dva ukazatele
Existuje ještě druhé rozlišení, které vede k nenápadným chybám v interpretaci. Cytosolické a mitochondriální zásoby NAD jsou z velké části oddělené vnitřní mitochondriální membránou, takže každý kompartment může být relativně oxidovaný nebo redukovaný nezávisle na druhém. Jediné číslo za celou buňku tento rozdíl zakrývá.

Výzkum jater umožnil toto rozdělení mezi kompartmenty měřit. Rovnováha mezi laktátem a pyruvátem vypovídá o cytosolickém poměru NAD+ k NADH, protože laktátdehydrogenáza tyto dvě dvojice propojuje. Rovnováha mezi 3-hydroxybutyrátem a acetoacetátem vypovídá prostřednictvím podobného propojení o mitochondriálním poměru. Když se obě dvojice měří v tkáni okamžitě zmrazené pomocí chladicích kleští, jako ve studii chronického podávání ethanolu potkanům, výsledkem jsou dvě redoxní měření z jedněch jater a určitá látka může jedno ovlivnit více než druhé.
Methylenová modř v tomto systému působí jako přenašeč elektronů, nikoli jako palivo. Přijímá elektrony z NADH v blízkosti komplexu I, čímž se redukuje, a poté je předává dále přenašečům, jako je cytochrom c. Celkovým výsledkem je oxidace NADH bez průchodu celou běžnou dráhou. Tento mechanismus vysvětluje její přitažlivost i její limity: může uvolnit nahromadění redukčních ekvivalentů, ale neopravuje poškozený komplex ani nesyntetizuje nové molekuly NAD.
Pět studií, jeden vzorec rozdílných výsledků
Následující tabulka řadí pět studií podle tkáně, redoxního ukazatele, energetického ukazatele a toho, co se skutečně obnovilo. Poslední dva sloupce čtěte společně. Právě jejich propojení je podstatou článku.
| Tkáň a poškozující faktor | Redoxní ukazatel při použití methylenové modři | Energetický a signalizační ukazatel | Funkční výsledek |
|---|---|---|---|
| Játra potkanů, chronická ethanolová dieta | Cytosolické a mitochondriální poměry NAD+/NADH se z velké části obnovily; glycerol 3-fosfát se normalizoval | ATP se vlivem ethanolu ani podání látky nezměnilo; mírný pokles ATP při použití barviva v pozdním časovém bodě | Tuková infiltrace se nezměnila; lipidy a triacylglycerol zůstaly zvýšené |
| Hepatocyty a játra myší na vysokotučné dietě | Poměr NAD+/NADH a obsah NAD+ se zvýšily v buňkách i játrech | Zvýšení SIRT1, deacetylace PGC-1alpha, zvýšení mitochondriální DNA a spotřeby kyslíku, aktivace AMPK závislá na SIRT1 | Snížení hromadění tuku v játrech a steatohepatitidy |
| Srdce diabetických potkanů | Poměr NADH/NAD+ se snížil při oxidaci substrátů v izolovaných mitochondriích | Zvýšení aktivity SIRT3; nižší acetylace lysinu na 83 místech u 34 proteinů | Zlepšení srdečních objemů a ejekční frakce; samotný defekt komplexu I se nenapravil |
| Sítnice myší s deficitem AIF a fotoreceptorové buňky vystavené rotenonu | Poměr NADH/NAD+ se v buňkách normalizoval; oxidační stres se snížil | Deficit ATP v buňkách se nenapravil; mitochondriální stresové dráhy se utlumily | Zachování tloušťky sítnice a markerů fotoreceptorů; zlepšení přežívání buněk |
| Lidská a potkaní Achillova šlacha, poškození oxidanty a kolagenázou | Rovnováha NAD+ a celkový stav NAD se obnovily směrem ke kontrolním hodnotám | Zvýšení ATP a snížení ROS tam, kde došlo k obnově | Zlepšení markerů matrix kromě přímé blokády komplexu I, při níž se chemické ukazatele změnily, ale tkáň nikoli |
Kde úprava redoxního stavu nevedla k obnově tkáně
Nejstarší studie v tomto souboru zůstává nejvýraznějším varováním. U potkanů, kterým ethanol dodával 36 procent energie, se snížily cytosolické a mitochondriální poměry NAD+/NADH, měřené pomocí obou dvojic ukazatelů. Methylenová modř podávaná v potravě v množství přibližně 42 mg na kg za den těmto změnám z velké části zabránila. Přesto se obsah triacylglycerolu v játrech v pozdním časovém bodě zhruba ztrojnásobil bez ohledu na přítomnost barviva a histologie ukázala stejné centrilobulární ukládání tuku. Autoři přímo vyvodili nepohodlný závěr: redoxní změna doprovázející oxidaci ethanolu není sama o sobě příčinou ztučnění jater. Čtenář, který zamění upravený poměr za napravený orgán, by tuto práci popsal nesprávně. Úplné uspořádání experimentu, včetně kontrol se stejným příjmem potravy a půlnočních odběrů při vrcholné intoxikaci, uvádí studie jater při podávání ethanolu.
Srovnejte to s výzkumem jater při vysokotučné dietě, kde stejný typ změny poměru provázelo skutečné zlepšení tkáně. V hepatocytech a v myších játrech po perorálním podání methylenová modř zvýšila poměr NAD+/NADH a signalizační řetězec byl sledován krok za krokem: zvýšení SIRT1, deacetylace PGC-1alpha, zvýšení markerů mitochondriální biogeneze a spotřeby kyslíku, následované zapojením AMPK, CPT-1 a PPARalpha. Přitom se ukázalo, že aktivace AMPK závisí na SIRT1. U myší na vysokotučné dietě se v játrech hromadilo méně tuku. Navržené vysvětlení je, že redoxní změna zde uvolnila osu regulace genů, místo aby pouze obnovila chemickou rovnováhu, jak podrobně popisuje studie SIRT1 a AMPK v játrech. Stejná skupina měření jako ve studii s ethanolem, ale opačný výsledek pro tkáň. Rozdíl spočívá v navazující dráze, nikoli v samotném poměru.
Srdce a sítnice: sirtuiny, acetylace a ochrana bez obnovy ATP
Studie diabetického srdce propojuje redoxní změnu s acetylací proteinů prostřednictvím jiného sirtuinu. Mitochondrie při diabetu vykazují nadměrnou acetylaci lysinu na metabolických enzymech, která souvisí s omezenou schopností měnit využívané substráty. Methylenová modř při podávání 10 mg na kg za den podporovala oxidaci NADH; v izolovaných mitochondriích byl tento účinek závislý na koncentraci v rozmezí 6 až 18 mikromolárních. Zvyšovala aktivitu SIRT3 a plošně snižovala acetylaci, přičemž se zlepšily srdeční objemy a ejekční frakce, i když základní porucha komplexu I přetrvávala. Práce výslovně rozebírá závislost účinku na dávce popsanou jinde v literatuře: nízké koncentrace podporují roli přenašeče redukčních ekvivalentů, zatímco vyšší mohou elektrony přesměrovávat neproduktivně, takže účinek je hormetický, nikoli monotónní. Proteomický průzkum a srdeční měření uvádí studie acetylace v diabetickém srdci. Souvislosti s oxidačním stresem rozebírá téma oxidačního stresu a regulace ROS.
Studie sítnice posouvá toto oddělení výsledků nejdále. U myší Harlequin s deficitem AIF, tedy poruchou sestavování komplexu I, methylenová modř zachovala tloušťku sítnice, vnější segmenty fotoreceptorů a markery tyčinek, čípků, Müllerových buněk a gangliových buněk. Ve fotoreceptorových buňkách 661W vystavených rotenonu barvivo při koncentraci 15 mikromolárních normalizovalo poměr NADH k NAD+ a snížilo množství reaktivních forem kyslíku. ATP však při koncentracích podporujících přežívání zůstalo snížené. Struktura a přežívání se zachovaly bez obnovy energetického stavu, současně s utlumením mitochondriální odpovědi na nesprávně složené proteiny a mitofagie. Tento výsledek posouvá pohled na barvivo k látce zmírňující redukční a oxidační stres, nikoli k prostředku obnovy energie, jak dokládá studie ochrany fotoreceptorů sítnice.
Šlacha: experiment, v němž se chemické ukazatele změnily, ale tkáň nikoli
Práce o Achillově šlaše obsahuje oba vzorce výsledků v jedné publikaci a zaslouží si pozorné čtení. Úplný rozbor jednotlivých experimentálních větví najdete v analýze tendinopatie Achillovy šlachy z roku 2026. Nemocná šlacha vykazovala úbytek NAD+, nízký poměr NAD+ k NADH, slabé markery komplexu I, nízké ATP a narušené uspořádání kolagenu. Methylenová modř obnovila stav NAD a ATP a zlepšila markery matrix v potkaních modelech, lidských explantátech i buněčných preparátech.
Poté následovaly dva zásahy. Při blokádě komplexu I rotenonem barvivo stále chránilo stav NAD+ a ukazatele související s ATP, ale nedokázalo zmírnit oxidační zátěž, obnovit rovnováhu kolagenu ani zachovat životaschopnost. Při snížení exprese AIF, kdy aparát komplexu I nebyl dostatečně vytvořen, ale nebyl farmakologicky blokován, vedlo barvivo k široké obnově: rovnováhy NAD, oxidačního stresu, membránového potenciálu i kolagenových markerů. Závěr je přesný. Lepší hodnoty NAD lze podpořit i při blokádě komplexu I, ale obnova tkáně v tomto preparátu závisela na funkčně použitelné dráze komplexu I. Změna poměru je v tomto případě nezbytná, ale není dostačující; tento bod dále rozvíjí studie redoxního stavu šlachy.
Jak číst další tvrzení o redoxním stavu
Většině chybných interpretací lze předejít třemi kontrolními otázkami. Nejprve se ptejte, ke kterému kompartmentu poměr patří a pomocí které dvojice ukazatelů byl získán. Cytosolický výsledek pro laktát a pyruvát nevypovídá přímo o mitochondriální matrix. Zadruhé se ptejte, zda práce uvádí změnu poměru, větší celkovou zásobu, nebo obnovu ATP, a každý z těchto výsledků posuzujte samostatně. Zatřetí se ptejte, co zůstalo narušené: přetrvávající ukládání tuku, nenapravený defekt komplexu I či neobnovený deficit ATP se v těchto pracích objevují vedle skutečného zlepšení redoxního stavu.
Nic z toho není návodem k dávkování. Všech pět studií pracuje se zvířaty, buňkami nebo tkáňovými preparáty za kontrolovaných poškozujících podmínek: tekuté ethanolové diety, diabetes vyvolaný streptozotocinem, genetické defekty komplexu I, rotenon, peroxid, kolagenáza. Koncentrace v kultivačních miskách nelze pouhým odhadem převést na perorální dávky a žádný člověk v těchto pracích neužíval methylenovou modř kvůli redoxní rovnováze. Společný závěr pro redoxní farmakologii a dávkování je užší a užitečnější než jakýkoli protokol: methylenová modř oxiduje NADH a mění měřený poměr, sirtuiny tuto změnu v některých tkáních převádějí na deacetylaci a metabolické přeprogramování a to, zda na ni tkáň naváže, závisí na aparátu, který barvivo nedokáže nahradit.