
Článek
Methylenová modř pro barvení DNA a RNA: použití v gelech a na membránách
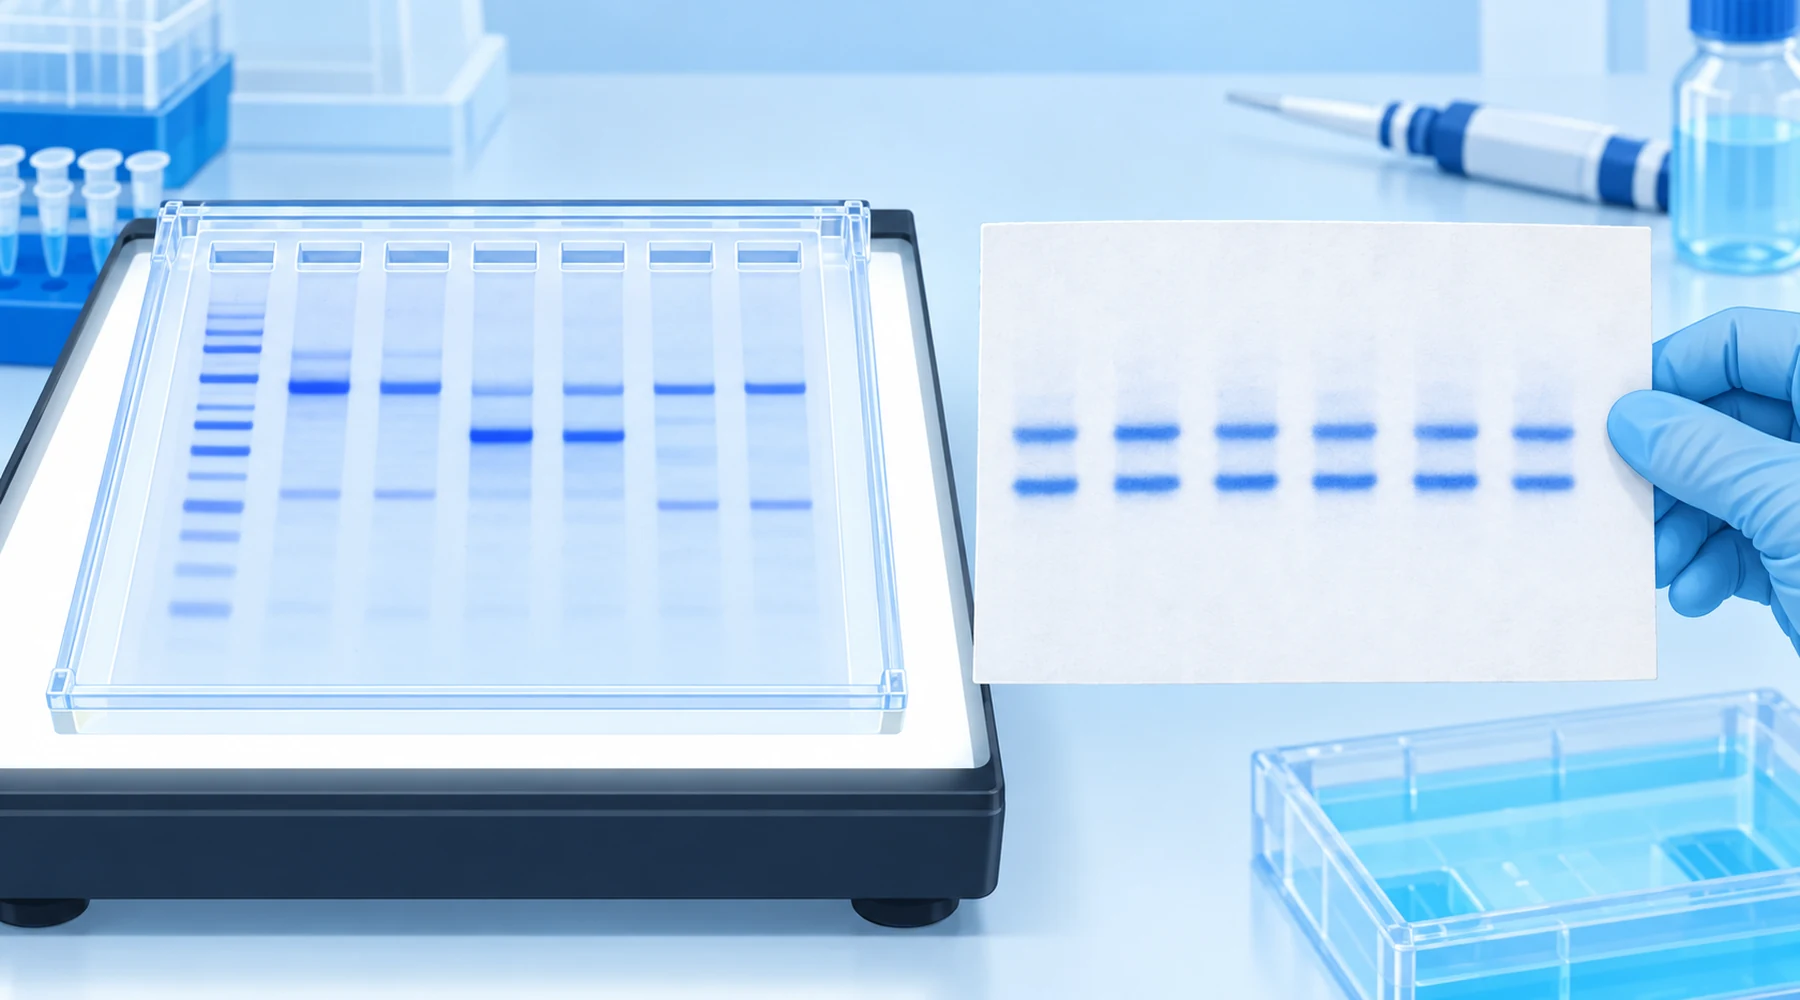
Student provede elektroforézu v agarózovém gelu, obarví ho methylenovou modří a na místě očekávaného výrazného proužku nevidí nic. U vedlejšího pracovního místa postdoktorand obarví membránu pro Northern blot stejným modrým roztokem a za tři minuty získá ostré ribozomální proužky. Student usoudí, že gel selhal. Gel ale neselhal. Šlo o dva různé úkoly a stejné barvivo při nich poskytuje odpovědi s odlišnou citlivostí, odlišným pozadím a odlišnými pravidly pro další postup.
Barvení DNA a RNA methylenovou modří má společný chemický základ, ale odlišný účel. V gelu barvivo ukazuje, kolik nukleové kyseliny se nachází v porézní matrici. Na membráně ukazuje, zda se přenos podařil a zda byly jednotlivé dráhy naplněny rovnoměrně. Jakmile je tento rozdíl jasný, dávají smysl i protokoly, meze detekce a omezení kompatibility.
Stručná odpověď
Methylenová modř je planární kationtové barvivo, které se váže na nukleové kyseliny nekovalentně a reverzibilně kombinací elektrostatické přitažlivosti k fosfátovým skupinám, interkalace mezi páry bází a vazby do malého žlábku. Právě tato reverzibilita je podstatná. Proužky lze obarvit, zdokumentovat ve viditelném světle a poté odbarvit nebo přečistit pro klonování, hybridizaci či opakovanou hybridizaci s další sondou.
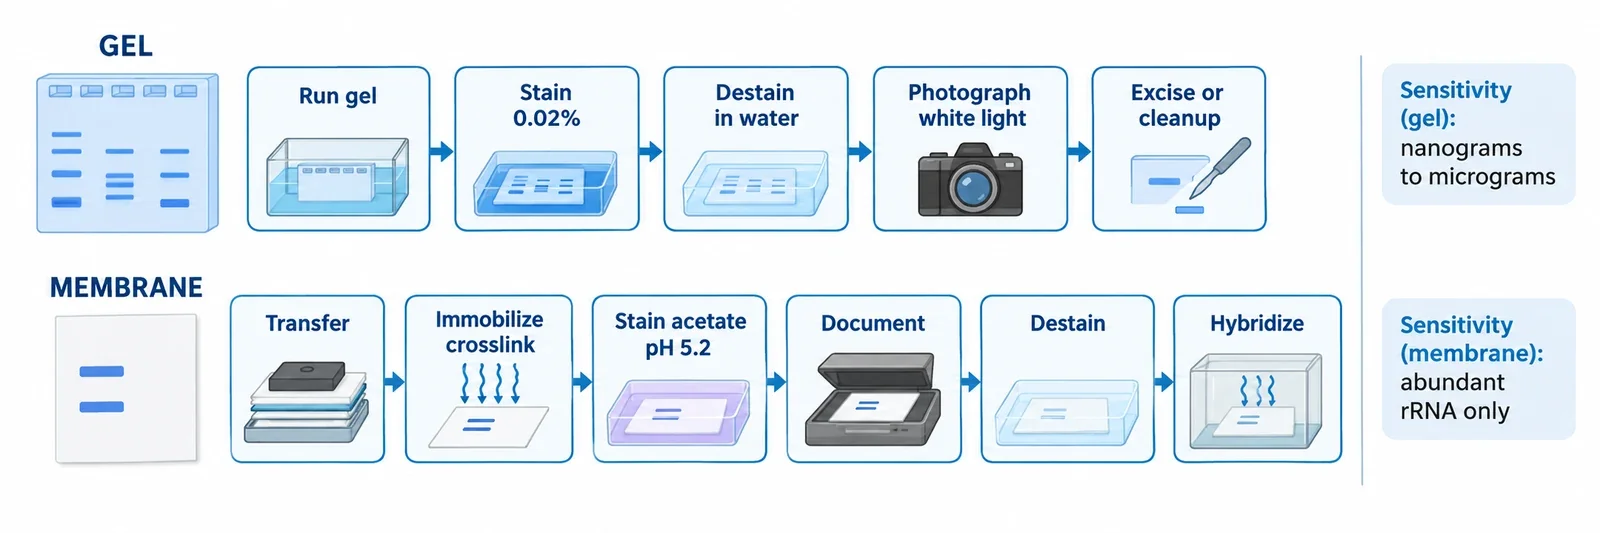
Pro barvení dvouvláknové DNA methylenovou modří v agarózovém gelu je standardním rychlým postupem 0.02 procenta w/v (200 mikrogramů na mL) ve vodě, přibližně 15 minut barvení a přibližně 15 minut odbarvování ve vodě, s pozorováním na transiluminátoru s bílým světlem. Pro membrány používá klasický postup pro Northern blot 0.02 až 0.04 procenta barviva v octanu sodném při pH kolem 5.2, několik minut barvení po přenosu a imobilizaci, následné opláchnutí vodou a úplné odbarvení před hybridizací. Citlivost je omezená: za dobrých podmínek desítky až stovky nanogramů na proužek v gelu, konzervativní příručky uvádějí 0.5 až 1 mikrogram. To je o několik řádů více než u ethidium bromidu a barviv SYBR. Pro membrány nelze uvést jednu prakticky použitelnou mez detekce jednotlivého transkriptu, protože barvivo ukazuje především hojně zastoupenou ribozomální RNA a celkové množství naneseného materiálu. Ani v jednom postupu nenahrazujte laboratorní barvivo maloobchodním roztokem doplňku stravy. Validované metody předpokládají barvivo analytické čistoty, definované pufry a při práci s RNA postupy bez kontaminace RNázami.
Jak vazba funguje a kde může mást
Užitečný model má tři části. Zaprvé, kladně nabitý kruhový systém je přitahován k záporně nabité fosfátové kostře. Spektroskopické práce ukazují, že při nízké koncentraci solí tato elektrostatická složka převažuje, zatímco modelování a molekulární dynamika popisují interkalaci a vazbu do malého žlábku jako stabilní způsoby vazby na dvouvláknovou DNA, jak shrnuje spektroskopická studie vazby methylenové modři na DNA. Zadruhé, existuje určitá preference GC: modelování zvýhodňuje kroky CpG a GpC a experimenty uvádějí přednostní asociaci s duplexy bohatými na GC v práci o preferencích interkalace methylenové modři, ale vazba probíhá i na duplexy AT. Běžné barvení není sekvenčně specifické. Zatřetí, jednovláknová DNA a RNA se vážou především prostřednictvím elektrostatických interakcí a patrových interakcí s přístupnými bázemi a duplexními oblastmi. Intenzita barvení se proto mění podle délky, sekvence a sekundární struktury.
Z toho vyplývají dva důsledky. Protože je vazba nekovalentní, barvivo se vymývá. Proužky v polyakrylamidu rychle blednou, pokud nejsou záměrně fixovány, a zvláštní varianta s trvalou fixací existuje právě proto, že běžné barvení je dočasné, jak popisují Soto a Draper pro gely PAGE. Protože je barvivo fotosenzibilizátorem, dlouhé intenzivní osvětlení obarvené DNA v přítomnosti kyslíku může oxidovat guanin a nakonec způsobit jednovláknové zlomy. Tento mechanismus podrobně popisuje práce o oxidaci guaninu fotosenzibilizované methylenovou modří. Krátké pozorování v bílém světle se vyhýbá dobře známému poškození UV zářením při klasických postupech s ethidium bromidem a tato výhoda je při preparativní izolaci skutečná. Viditelné světlo je šetrnější, nikoli neškodné. Pokud se má DNA klonovat, omezte dobu osvětlení. Širší fotochemické souvislosti tohoto upozornění najdete v článku o dvou drahách fotochemie methylenové modři. Redoxní pár a nábojové stavy, které vysvětlují, proč se oxidovaná forma váže a redukovaná nikoli, popisuje článek o chemii, struktuře a vlastnostech methylenové modři.
První úkol: barvení v gelech
Barvení gelu odpovídá na jednu otázku: je v tomto proužku dost nukleové kyseliny, aby byl viditelný pouhým okem? Nejlépe popsaným případem je dvouvláknová DNA v agaróze. Původní metoda barvení gelu methylenovou modří od Florese a kolegů validovala rychlý protokol s 0.02 procenta barviva v 1 procentu agarózy a prokázala úspěšnou následnou izolaci a klonování. Stejný dodavatelský protokol je uveden na produktové stránce methylenové modři IBI Scientific, která vedle sebe uvádí postup pro membrány s 0.04 procenta barviva a rychlou variantu pro gely.
Praktický postup:
- Proveďte elektroforézu v gelu obvyklým způsobem. Barvěte až po elektroforéze, nikoli během ní, pokud nebyl přenos nebo rozlišení pro upravenou metodu validován.
- Ponořte gel do 0.02 procenta w/v methylenové modři v destilované vodě a za mírného pohybu barvěte přibližně 15 minut.
- Odbarvujte opakovanou výměnou vody, celkem přibližně 15 minut, dokud se nesníží pozadí matrice a proužky nevyniknou.
- Co nejdříve vyfotografujte na transiluminátoru s bílým světlem.
Agaróza a polyakrylamid se chovají odlišně. Agaróza zadržuje barvivo v matrici, takže pomalým krokem je odbarvování. Tenké polyakrylamidové gely se barví rychle, ale také rychle ztrácejí barvivo, což pomáhá při preparativním vyřezávání proužků, ale komplikuje archivaci výsledků. Syntetické oligonukleotidy v polyakrylamidu lze lokalizovat stejným postupem s 0.02 procenta barviva za 20 až 30 minut při opakovaném promývání vodou, podle zavedených metod PAGE typu Current Protocols. Pro preparativní oligonukleotidy byly popsány i velmi zředěné varianty s koncentrací kolem 0.0002 procenta ve zředěném TBE po dobu několika hodin, jejich podklady jsou však slabší.
Záleží také na tom, zda jde o DNA, nebo RNA. Dvouvláknová DNA poskytuje nejsilnější strukturně podmíněnou vazbu. RNA a jednovláknová DNA se barví také, ale slaběji a méně předvídatelně. U formaldehydových agarózových gelů s RNA většina laboratoří vynechává barvení modří přímo v gelu a nejprve přenese RNA na membránu, kterou poté obarví. Tím se slabý signál v gelu nahradí ostřejším signálem na membráně a současně vznikne záznam o naneseném množství.
Druhý úkol: barvení na membránách
Barvení membrány odpovídá na jinou otázku: podařil se přenos a jsou jednotlivé dráhy srovnatelné? Klasickým použitím je reverzibilní barvení Northern blotu podle Herrina a Schmidta, původně s 0.04 procenta barviva v 50 mM octanu sodném při pH 5.0 po dobu 2 až 3 minut, s opláchnutím vodou a odstraněním barviva zředěným SDS v SSPE před hybridizací.
Běžně používaná moderní varianta probíhá takto:
- Přeneste RNA nebo denaturovanou DNA na nylon či nitrocelulózu a poté ji imobilizujte zesíťováním UV zářením nebo zahřátím, aby se vzorek při barvení neztratil.
- Volitelný, ale běžný krok: navlhčete membránu v 5 procentech kyseliny octové po dobu přibližně 15 minut.
- Barvěte 5 až 10 minut v 0.02 až 0.04 procenta methylenové modři v 0.3 až 0.5 M octanu sodném při pH kolem 5.2.
- Opláchněte a odbarvujte ve vodě po dobu 5 až 15 minut, zdokumentujte a poté před hybridizací odstraňte zbylé barvivo.
Při práci s Northern blotem převládá kladně nabitý nylon. Nitrocelulóza také funguje se stejným postupem využívajícím kyselinu octovou a octan. Snímek se používá k potvrzení přenosu, porovnání proužků 28S a 18S (nebo 23S a 16S u bakteriální RNA), označení velikostních markerů a standardů a uchování orientačního záznamu pro normalizaci podle celkové RNA. Publikované metody Northern blotu kvantifikují obarvené ribozomální proužky ke kontrole naneseného množství, včetně práce z oblasti mlékárenského výzkumu, která použila ribozomální proužky obarvené methylenovou modří pro normalizaci. Stejným způsobem lze zobrazit i membrány Southern blotu, ale barvivo je mnohem zavedenější pro kontrolu naneseného množství a přenosu u Northern blotu. DNA pro Southern blot se navíc před přenosem denaturuje, takže údaje o citlivosti v gelu nelze přímo přenést.
Meze detekce a pozadí: kde modř ztrácí
Následující srovnání je záměrně přibližné. Výsledky barvení závisí na koncentraci gelu, šířce proužku, optice a důslednosti odbarvování. Každé číslo berte jako řádový údaj, nikoli jako specifikaci.
| Barvivo a formát | Přibližná mez detekce na proužek | Interpretace |
|---|---|---|
| Methylenová modř, dsDNA v agaróze | 40 až 250 ng při optimalizaci; konzervativně 0.5 až 1 mikrogram | Dostačuje pro preparativní množství a výukové gely. Pro stopová množství v proužcích má nízkou citlivost. |
| Methylenová modř, krátká ssDNA nebo RNA nebo oligonukleotidy v PAGE | Přibližně 0.1 až 0.5 mikrogramu | Závisí na délce a struktuře. Univerzální mez neexistuje. |
| Ethidium bromid, dsDNA v agaróze | Přibližně 1 až 10 ng | Ve srovnání podle Florese zhruba čtyřikrát citlivější než optimalizované barvení modří. Vyžaduje UV. |
| SYBR Green I, dsDNA | Přibližně 60 pg | Vyžaduje fluorescenční zobrazování. |
| SYBR Gold, DNA a RNA | Přibližně 25 pg | V několika formátech více než desetkrát citlivější než ethidium bromid. |
| Barvení stříbrem, nukleové kyseliny v PAGE | Přibližně 0.3 až 0.9 ng; v optimalizovaném sledu barvení modří a poté stříbrem bylo popsáno 100 pg RNA | Velmi citlivé, ale chemicky náročné a nevhodné pro následnou izolaci. |
| Toluidinová modř, RNA a oligonukleotidy v PAGE | Pracovní množství ve stovkách ng, doloženo přibližně 250 ng | Viditelné světlo jako u methylenové modři, ale bez standardizované meze srovnatelné se specifikacemi SYBR. |
Potlačení pozadí rozhoduje o tom, zda je omezený signál použitelný. Volné barvivo je intenzivně zbarvené, takže kontrast vzniká odstraněním nenavázaného barviva bez odstranění navázaného. Koncentrovanější barvivo málokdy zvýší citlivost. Především prodlužuje odbarvování. Proveďte řadu ředění na konkrétním gelu či membráně s konkrétní kamerou a používejte pouze rozsah, ve kterém integrovaná optická denzita zůstává úměrná vstupnímu množství. Methylenová modř umožňuje semikvantitativní normalizaci naneseného množství. Nejde o kvantitativní stanovení s vysokým dynamickým rozsahem, protože kapacita membrány, účinnost přenosu, saturace i odbarvování se mezi drahami liší.
Omezení kompatibility: co barvení přečká
Klonování po barvení modří bylo prokázáno. Flores a kolegové vyřízli obarvené agarózové proužky, izolovali DNA a provedli ligaci a transformaci. Uvedli lepší výsledky klonování než po barvení ethidium bromidem s UV osvětlením. Pravděpodobným důvodem je menší fotopoškození, nikoli příznivý účinek samotného barviva. Omezte expozici bílému světlu a izolovanou DNA přečistěte běžným postupem extrakce z gelu.
Pro PCR a sekvenování je podkladů méně. Zbytkové barvivo se váže na nukleové kyseliny, proto před enzymatickými kroky vzorek odbarvěte a přečistěte. U řádně přečištěné DNA z gelu obarveného modří lze očekávat použitelnost, ale tolerance přímého přenosu zbytků barviva u různých polymeráz a sekvenačních chemií není dobře kvantifikována. Nepředpokládejte ji automaticky.
Hybridizace blotu je kompatibilní při striktním dodržení pořadí: přenos, imobilizace, barvení, dokumentace, odbarvení, hybridizace. Tato posloupnost odpovídá postupu Herrina a Schmidta. Barvení před přenosem nebo vynechání odbarvování představuje jinou metodu, která vyžaduje vlastní validaci. Po odstranění barviva probíhá standardní odstranění sondy a opakovaná hybridizace běžným způsobem. Barvení na úrovni buněk stejnou skupinou barviv a důvody, proč principy barvení fixovaných preparátů nelze přenášet na metody pro živé buňky, popisuje atlas mikroskopického barvení.
Vyřezávání proužků funguje pro preparativní agarózu i pro oligonukleotidy v PAGE lokalizované modří, pokud se nepoužije varianta s trvalou fixací. Elektroeluce po odbarvení je u reverzibilně se vážícího barviva z chemického hlediska možná, ale kontrolovaných údajů o výtěžnosti specifických pro methylenovou modř je málo. Po eluci proveďte odsolení nebo precipitaci.
Opakující se problémy
Slabé proužky v gelu obvykle znamenají příliš malé množství pro kolorimetrické barvení, zejména u krátkých jednovláknových cílových molekul nebo RNA. Naneste více materiálu, použijte čerstvé barvivo, před zvýšením koncentrace prodlužte barvení a ukončete odbarvování dříve. Jednolitě modrý gel bez kontrastu obvykle znamená nadměrné barvení nebo příliš málo výměn vody. Blednutí proužků v PAGE je očekávaným důsledkem chemických vlastností, nikoli selháním barvení. Fotografujte rychle. Nerovnoměrné pozadí membrány ukazuje na záhyby, bubliny, otisky prstů, nerovnoměrný pohyb roztoku nebo nestejnoměrný přenos. Bez kontroly hybridizací to neinterpretujte jako nerovnoměrné nanesení vzorků. Rozmazaný a slabý obraz ribozomálních proužků může znamenat degradaci, ale také neúplný přenos, příliš malé množství celkové RNA (běžné dráhy obsahují několik až desítky mikrogramů) nebo nadměrné odbarvení. Barvivo ukazuje hojně zastoupenou ribozomální RNA. Neukazuje konkrétní transkript. To je úkol sondy.
Bezpečnost a zacházení bez přehnaných tvrzení
S methylenovou modří se zachází jednodušeji než s ethidium bromidem, není však neškodná. Aktuální bezpečnostní list MilliporeSigma klasifikuje barvivo jako akutně toxické při požití, kategorie 4, zdraví škodlivé při požití, s likvidací schváleným způsobem nakládání s odpady podle bezpečnostního listu methylenové modři Sigma-Aldrich. Ethidium bromid má závažnější varování týkající se genotoxicity, včetně podezření na účinky na zárodečné buňky v jeho bezpečnostním listu Sigma-Aldrich. Jeho gely a roztoky se běžně oddělují jako nebezpečný chemický odpad, jak uvádí průvodce barvivy pro nukleové kyseliny Thermo Fisher. U obou látek se řiďte bezpečnostním listem a pravidly instituce. Suché barvivo uchovávejte těsně uzavřené a v suchu, pracovní barvicí roztok používejte opakovaně pouze v rozsahu povoleném protokolem, obarvené membrány skladujte suché mezi listy filtračního papíru a gely vyfotografujte dříve, než se proužky rozptýlí difuzí.
Zapamatujte si stručné pravidlo pro práci v laboratoři. Gely ověřují viditelnost při vysokém naneseném množství v bílém světle. Membrány ověřují přenos a nanesené množství předtím, než citlivou detekci provede sonda. Jedno barvivo slouží oběma účelům, s omezenou citlivostí, reverzibilní vazbou a přesně daným pořadím kroků.