
مقال
قياس تأثيرات أزرق الميثيلين في الميتوكوندريا: الأكسجين وATP وجهد الغشاء
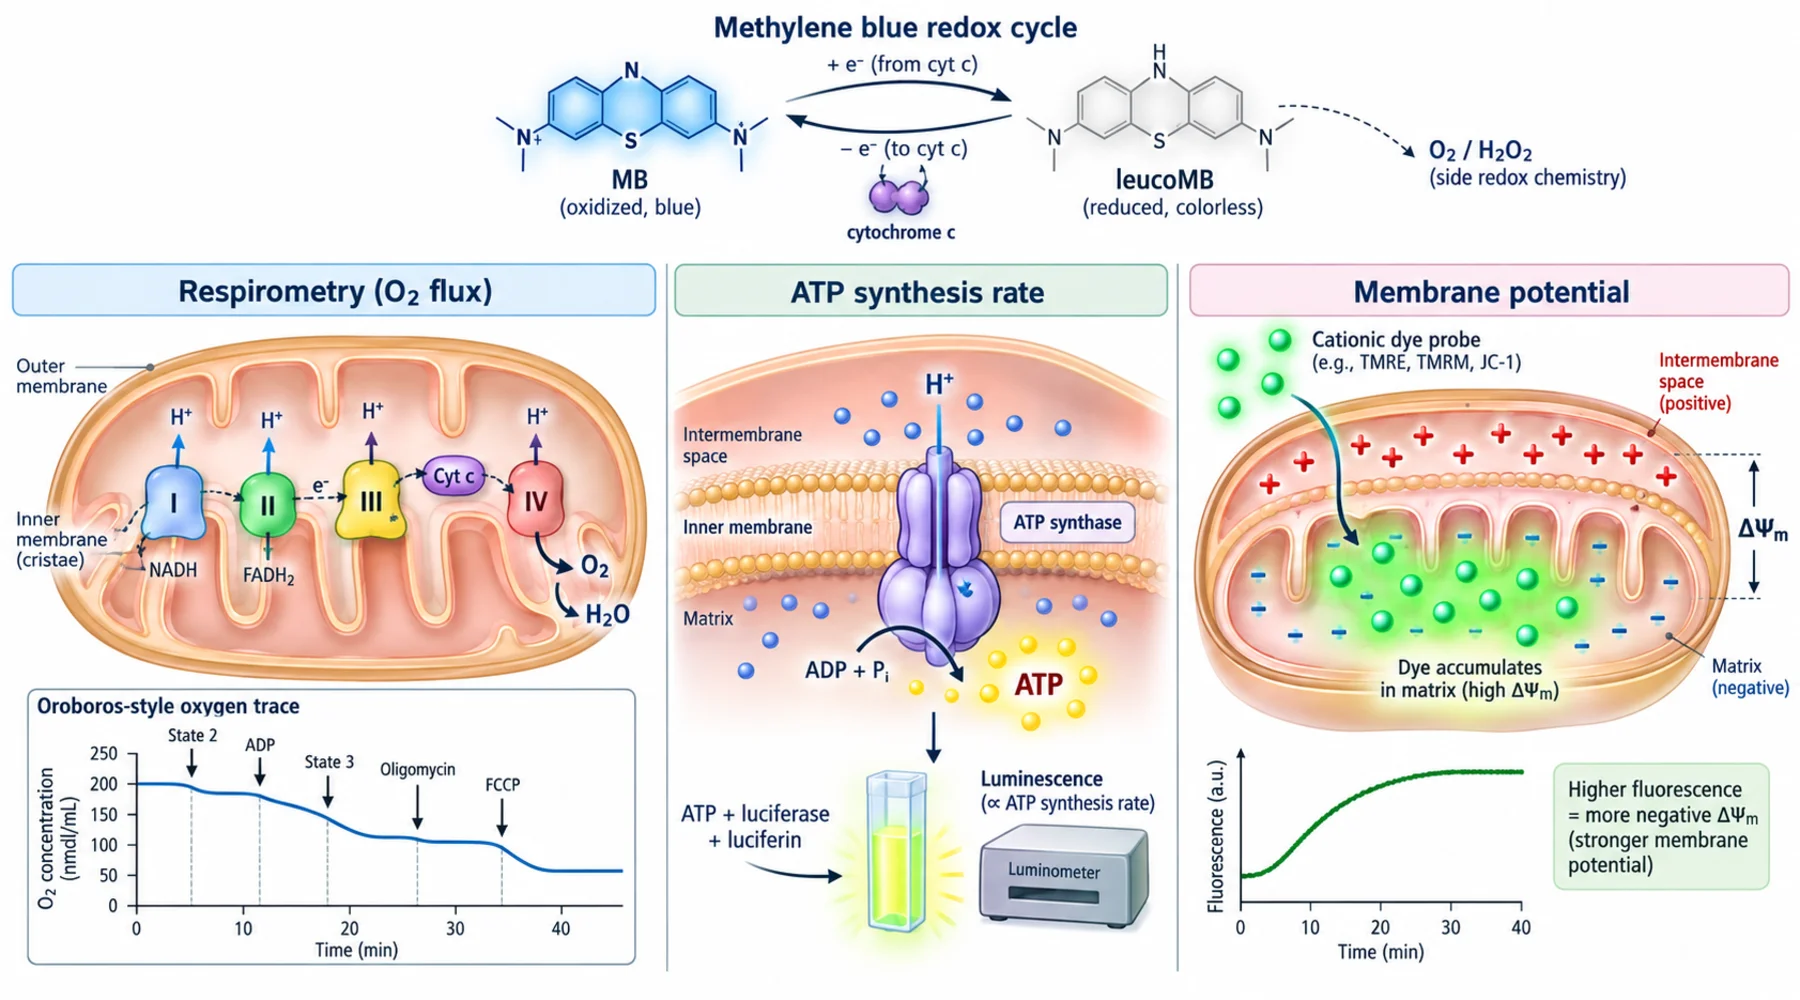
لنفترض أن مختبرًا يضيف أزرق الميثيلين إلى ميتوكوندريا مختلة التنفس ويراقب ارتفاع استهلاك الأكسجين. قد تكون الصياغة البديهية أن الصبغة استعادت وظيفة الميتوكوندريا. لكن هذه العبارة قد تكون خاطئة. تدفق الأكسجين وتخليق ATP وجهد الغشاء ثلاثة مفاهيم منفصلة. وهي تشترك في العضية نفسها كما تشترك عمليات النسخ الاحتياطي والمزامنة والمشاركة في مجلد سحابي واحد: مترابطة، لكنها تخضع لقواعد مختلفة. وإذا خلطت بينها انهار التفسير، حتى عندما يكون كل قياس صحيحًا من الناحية التقنية.
يزيد أزرق الميثيلين احتمال هذا الالتباس لأنه يشارك في النظام الذي يقيسه. فهو عامل تدوير أكسدة واختزال يقبل الإلكترونات في مرحلة مبكرة من السلسلة ويمنحها في مرحلة لاحقة، وكاتيون محب للدهون يتراكم في الميتوكوندريا ذات الجهد، ومركب شديد الزرقة يمتص الضوء ويصدره ضمن النطاقات نفسها التي تعمل فيها المجسات الشائعة. لا تستطيع قراءة واحدة أن تتحمل كل هذا العبء. والنمط الموثوق، كما ظهر في دراسات الميتوكوندريا في بودابست، هو قياس تدفق الأكسجين إلى جانب معدل تخليق ATP وجهد الغشاء وانطلاق بيروكسيد الهيدروجين، مع ضوابط خاصة بالصبغة في كل خطوة.
قياس التنفس يقيس تدفق الأكسجين، لا ناتج الطاقة
يقدم قياس التنفس عالي الدقة، سواء باستخدام Oroboros Oxygraph أو محلل التدفق خارج الخلوي Seahorse، معلومة واحدة: مدى سرعة اختزال الأكسجين. ولا يبين عدد البروتونات التي ضُخت لكل إلكترون، أو مقدار التدرج الذي جرى الحفاظ عليه، أو ما إذا كان إنزيم ATP synthase قد استخدمه.
للمصطلحات أهمية هنا. ففي الميتوكوندريا المعزولة، يؤدي وجود الركيزة من دون ADP إلى تنفس التسرب، وتؤدي الركيزة مع ADP بتركيز مُشبع إلى قدرة الفسفرة التأكسدية، بينما تعطي معايرة العامل المفكك للاقتران أقصى قدرة لنقل الإلكترونات. وفي الخلايا السليمة، تكون مكافئات Seahorse هي التنفس الأساسي، والتنفس المرتبط بـATP والحساس للأوليغومايسين، وتسرب البروتونات، والتنفس الأقصى المحدد بواسطة FCCP، واستهلاك الأكسجين غير الميتوكوندري المقاوم للروتينون مع الأنتيميسين. ووصف مخرجات Seahorse بأنها State 3 وState 4 يستعير مستوى من الدقة لا يدعمه هذا التحضير، كما يوضح إطار Agilent Mito Stress Test.
يفصل أزرق الميثيلين الصلة البديهية بين زيادة الأكسجين وزيادة الطاقة. ففي ميتوكوندريا دماغ خنزير غينيا المعزولة، رفعت الصبغة بتركيز 100 nM إلى 1 uM استهلاك الأكسجين أثناء الراحة مع ركائز الغلوتامات مع المالات، والسكسينات، وalpha-glycerophosphate، بزيادة تقارب 64 percent مع alpha-glycerophosphate، ومع ذلك بقي التنفس المحفز بـADP في الميتوكوندريا السليمة دون تغير يُذكر، وفقًا لـدراسة ميتوكوندريا الدماغ المعزولة. وبما أن التسرب ارتفع بينما ظل التدفق المحفز بـADP ثابتًا، فإن نسبة التحكم التنفسي المحسوبة تنخفض. ولا يعني هذا الانخفاض أن الصبغة أضرت بالميتوكوندريا. بل يعني أنها أضافت دورة أكسدة واختزال تستهلك الأكسجين فوق التنفس الطبيعي. إن اختبار استهلاك الأكسجين مع أزرق الميثيلين الذي لا يبلغ إلا عن الارتفاع يكون قد قاس كيمياء حقيقية، لكنه لم يقل شيئًا عن حفظ الطاقة.
وتُظهر تجارب الاستعادة الفجوة نفسها على نطاق أكبر. فعند تثبيط Complex I، تعافى تدفق الأكسجين بنحو ثلاثة أضعاف، بينما تعافى تخليق ATP بنحو 1.5 ضعف فقط. وصل مزيد من الأكسجين إلى القطب. لكن جزءًا أقل منه ساهم في إنتاج ATP. وأي ادعاء بتحسن الفسفرة التأكسدية يحتاج إلى جانب ATP من الحساب، ويفضل التعبير عنه كنسبة ATP لكل أكسجين مع تحديد اصطلاح المقام المستخدم.
اختبارات ATP تقيس معدل التخليق، ولا يمكن للمحتوى أن يحل محله
يجيب اختبار ATP عن سؤال مختلف: ما مقدار ATP المتولد لكل وحدة زمن. وتنتج القراءة الحركية، سواء بقياس تألق luciferase اليراعي على مدى دقائق أو باستخدام اختبار مقترن من hexokinase مع glucose-6-phosphate dehydrogenase يُقرأ عند 340 nm، معدلًا. أما قياس إجمالي ATP عند نقطة نهاية واحدة فيعطي المحتوى، الذي يعكس التخليق مطروحًا منه الاستهلاك ولا يخبرك إلا بالقليل عن الفسفرة التأكسدية بمفرده.
استخدمت مجموعة بودابست الطريقة الإنزيمية المقترنة مع تثبيط adenylate kinase، ووجدت أن أزرق الميثيلين بتركيز 1 إلى 2 uM رفع إنتاج ATP بدرجة متواضعة لكنها ذات دلالة في الميتوكوندريا المعالجة بالروتينون والمعالجة بالأنتيميسين. هذه استعادة حقيقية، لكنها جزئية. وتوصلت دراسة سمية TEGDMA إلى النمط نفسه من النتائج في نموذج مختلف: فقد خفّض المونومر السني TEGDMA بتركيز 5 mM التنفس المرتبط بـComplex I من نحو 286 إلى 28 وحدة تدفق، وأعادت الصبغة بتركيز 2 uM القيمة إلى نحو 86.
هناك ضابطان لا يمكن التنازل عنهما عند العمل مع مركب ملون نشط أكسدةً واختزالًا. أولًا، استخدم الأوليغومايسين لتحديد مقدار تخليق ATP المقاس الذي يعتمد على ATP synthase. ثانيًا، أجرِ اختبار استرداد بإضافة ATP معلوم في نظام خالٍ من الخلايا يحتوي على الكاشف الكامل وتركيزات الصبغة نفسها المستخدمة، وبحد أدنى 0 و100 nM و300 nM و1 uM و2 uM. فقد تمتص الصبغة الضوء المنبعث، أو تثبط إنزيم المراسل، أو تغير كيمياء الأكسدة والاختزال في الكاشف، كما توصي إرشادات اختبارات luciferase العامة بإجراء اختبارات تحقق كيميائية مضادة لهذا النوع تحديدًا من التداخل. لا تفترض أن 1 uM خالٍ من الشوائب التجريبية لمجرد أن الإخماد يكون عادة أشد عند التراكيز الأعلى.
مجسات جهد الغشاء تقيس توزيع الصبغة، لا التدفق
Safranine O وTMRM وTMRE وrhodamine 123 وJC-1 كلها كاتيونات نافذة عبر الغشاء. وتتراكم في المصفوفة سالبة الشحنة وفقًا للتوازن الكهروكيميائي، لذلك يعكس التألق الكلي الجهد بصورة غير مباشرة من خلال مكان وجود المسبار. ولا يقيس أي منها ATP أو تدفق الإلكترونات.
لكل مسبار نوع تحضير مفضل. يناسب Safranine O الميتوكوندريا المعزولة والخلايا المنفذة، وعادة ما يُستخدم قرب 2 uM مع إثارة قرب 495 nm وانبعاث قرب 585 nm، ويعمل ضمن نظام إخماد يؤدي فيه دخول المسبار إلى تغيير التألق الكلي. ويناسب TMRM وTMRE الخلايا السليمة عند تحميل منخفض في نطاق nanomolar في وضع غير إخمادي، حيث تؤدي إزالة الاستقطاب إلى تحرير الصبغة وانخفاض التألق الميتوكوندري؛ أما عند التحميل المرتفع فقد ينعكس اتجاه الإشارة بسبب الإخماد الذاتي. ويوفر JC-1 نسبة مريحة من الأخضر إلى الأحمر، لكنه يعتمد على التحميل وكتلة الميتوكوندريا، ما يجعله أضعف في العمل الكمي من TMRM المضبوط بعناية. وتُلخص هذه المفاضلات في مراجعة شائعة الاستخدام لمجسات جهد غشاء الميتوكوندريا.
يتداخل أزرق الميثيلين بصريًا عند تراكيز العمل نفسها تمامًا. فتتداخل نطاقات امتصاصه قرب 600 إلى 665 nm مع انبعاث المجسات الحمراء، لذلك تبقى تأثيرات المرشح الداخلي والإخماد وامتصاص ضوء الإثارة جميعها احتمالات واقعية. كما أن الصبغة كاتيون ثانٍ محب للدهون يتغير توزيعه هو نفسه مع الجهد الجاري قياسه. والحماية من ذلك هي التكرار مع العينات الفارغة: المسبار وحده، والصبغة وحدها، والمسبار مع كل تركيز من الصبغة، وإزالة الاستقطاب الكاملة باستخدام FCCP كمرجع صفري، ويفضل أيضًا استخدام مسبار ثانٍ مختلف بصريًا. وقد أرست دراسة تجاوز Complex III هذا النهج بإعادة اختبار استعادة جهد الغشاء باستخدام كل من safranine O وTMRM بعد التثبيط بالأنتيميسين وmyxothiazol، والحصول على التعافي النوعي نفسه. مراسل بصري واحد يعطي إشارة مبدئية. ومراسلان مستقلان يوفران دليلًا.
ثلاثة أنواع من التحضير، وثلاثة أسئلة مختلفة
الميتوكوندريا المعزولة، والخلايا المنفذة، والخلايا السليمة ليست إعدادات حساسية متبادلة ضمن اختبار واحد. بل هي مفاهيم مختلفة ذات مبادئ تشغيلية مختلفة.
تحافظ الميتوكوندريا المعزولة على سلسلة نقل الإلكترونات والغشاء الداخلي وآليات المصفوفة، مع إزالة غشاء البلازما والسيتوسول وبنية الشبكة. وهذه الإزالة هي المقصودة: إذ يمكن تحديد الركائز وADP والمثبطات وتراكيز الصبغة بدقة، ومن ثم إسناد التأثير إلى مسار محدد. لكن الثمن هو فقدان الإمداد الطبيعي بالركائز والإشارات والطلب.
تحافظ الخلايا المنفذة على الميتوكوندريا داخل جزء كبير من بنيتها الخلوية، مع السماح للركائز الخارجية وADP بالعبور عبر غشاء البلازما المفتوح. وهي الأداة المناسبة لتحديد خلل في مسار ركيزة ضمن سياق خلوي. لكن الإفراط في النفاذية يضر الغشاء الخارجي، كما تُغسل بعض آليات التنظيم السيتوسولية.
أما الخلايا السليمة فتحافظ على كل شيء: حاجز غشاء البلازما، والعوامل المختزلة في السيتوسول، ونقل الركائز الداخلي، وشبكة الميتوكوندريا، والطلب على ATP. وهي الأقرب إلى الفسيولوجيا والأبعد عن تحديد الآلية، لأن امتصاص الصبغة واختزالها واحتجازها كلها تشكل التعرض الفعلي للميتوكوندريا.
استخدمت دراسة TEGDMA المستويات الثلاثة عمدًا: ميتوكوندريا دماغ معزولة لدراسة استعادة الأكسدة والجهد بالصبغة، وخلايا جذعية من لب الأسنان منفذة أساسًا لتحديد موضع الخلل في أكسدة الركائز المرتبطة بـComplex I، وخلايا جذعية سليمة لقياس الأثر الفسيولوجي الصافي للصبغة بتركيز 2 uM على استهلاك الأكسجين المثبط. وللقراء الذين يقارنون قراءات الميتوكوندريا بين أنواع التحضير، يقدم الشرح المرافق لكيفية نقل أزرق الميثيلين للإلكترونات عبر السلسلة التنفسية الخلفية المتعلقة بالمسار، بينما يغطي دليل قراءة دراسات تنفس أزرق الميثيلين منطق الجرعة والمثبطات.
الضوابط التي تتطلبها صبغة نشطة أكسدةً واختزالًا
يحتاج عامل تدوير الأكسدة والاختزال إلى قائمة ضوابط أطول من المثبط العادي، لأن كيمياء الصبغة وحدها قد تحاكي الظواهر البيولوجية.
في قياس التنفس، استخدم حجرة تحتوي على المحلول المنظم فقط لقياس الانحراف، وحجرة تحتوي على المحلول المنظم مع الصبغة من دون مادة بيولوجية، والصبغة مع أي عامل اختزال خارج خلوي موجود في الاختبار، ثم الروتينون مع الأنتيميسين في النهاية لتحديد استهلاك الأكسجين غير الميتوكوندري في الخلايا السليمة. ويجب الانتباه إلى أن الصبغة المختزلة يعاد أكسدتها عبر نقل الإلكترونات إلى الأكسجين لتكوين بيروكسيد الهيدروجين، لذلك فإن العينة الفارغة المحتوية على الصبغة وحدها من دون مانح إلكترونات تقلل من تقدير استهلاك الأكسجين الخالي من الخلايا الذي يظهر بمجرد توفر NADH أو NADPH.
بالنسبة إلى بيروكسيد الهيدروجين، يُفضل استخدام Amplex UltraRed المعاير مع horseradish peroxidase بدل أصباغ DCFDA غير الانتقائية، والتحقق باستخدام catalase، واختبار الاعتماد على الإضاءة، لأن الصبغة عامل محسس ضوئي. وقد وجدت دراسة ميتوكوندريا الدماغ أن عبء البيروكسيد ارتفع بأكثر من أربعة أضعاف عند تركيز 100 nM فقط من الصبغة، بينما تباطأت إزالته، مع تكوّن البيروكسيد مباشرة بواسطة الصبغة المختزلة من دون وسيط superoxide. وترد تفاصيل اختيار المسبار وضوابط الضوء في المقال المرافق عن قياس أنواع الأكسجين التفاعلية في تجارب الصبغات، بينما تُناقش المسألة الأوسع المتعلقة بمتى يعمل البيروكسيد كإشارة ومتى يصبح عبئًا إلى جانب توازن الأكسدة والاختزال الخلوي وادعاءات مضادات الأكسدة.
بالنسبة إلى ادعاءات المسار، اختبر موقعي تثبيط Complex III كليهما: antimycin A عند موقع Qi وmyxothiazol عند موقع Qo، إلى جانب نقطة نهاية لـComplex IV باستخدام السيانيد. وكانت دراسة أقدم على دماغ الفأر قد أبلغت عن استعادة التنفس المحجوب بالروتينون باستخدام الصبغة، لكن ليس التنفس المحجوب بالأنتيميسين، بينما وجدت الدراسة اللاحقة على ثلاثة أنواع استعادة جزئية مع كلا المثبطين ودليلًا على الاختزال المباشر لـcytochrome c. لذلك ينبغي التعامل مع التجاوز باعتباره متوافقًا مع البيانات الأحدث، لا باعتباره محسومًا، لأن تركيز الصبغة وموقع المثبط وحالة الركيزة وتوزيع الصبغة كلها تغير المسار الملحوظ.
مصفوفة اختيار الاختبار
استخدم هذا الجدول لاختيار القياس انطلاقًا من السؤال، لا العكس.
| السؤال البيولوجي | أفضل اختبار | التحضير | الضابط الأساسي | العامل المربك الشائع |
|---|---|---|---|---|
| هل تعيد الصبغة تدفق الإلكترونات؟ | استهلاك الأكسجين باستخدام Oroboros أو Seahorse مع بروتوكول محدد للركائز والمثبطات | ميتوكوندريا معزولة لرسم المسار؛ خلايا سليمة لقياس الأثر الصافي | عينة أكسجين فارغة تحتوي على الصبغة فقط؛ الروتينون مع الأنتيميسين في النهاية | تدوير الأكسدة والاختزال يستهلك الأكسجين من دون إنتاج ATP |
| هل تعيد الصبغة تخليق ATP؟ | معدل حركي لتخليق ATP، باستخدام luciferase أو اختبار إنزيمي مقترن | ميتوكوندريا معزولة أو خلايا منفذة مضبوطة | الأوليغومايسين؛ اختبار استرداد بإضافة ATP معلوم مع الصبغة | تثبيط المراسل والتوهين البصري؛ الخلط بين المحتوى والمعدل |
| هل تكون الاستعادة كفؤة من ناحية الطاقة؟ | قياس متوازٍ لتدفق الأكسجين ومعدل ATP؛ مع الإبلاغ عن ATP لكل أكسجين | ميتوكوندريا معزولة أو خلايا منفذة | استخدام الركائز وADP نفسها في القراءتين | تدفق الصبغة إلى الأكسجين إلى البيروكسيد يضخم المقام |
| هل تعيد الصبغة جهد الغشاء؟ | Safranine O في الميتوكوندريا المعزولة؛ TMRM بتحميل منخفض في الخلايا؛ مسبار ثانٍ عند الإمكان | مطابقة المسبار مع التحضير | إزالة استقطاب كاملة باستخدام FCCP؛ مسح طيفي للصبغة وحدها | الامتصاص والإخماد قرب 600 إلى 665 nm؛ تغير توزيع الصبغة |
| هل يقع الخلل في Complex I؟ | قياس التنفس باستخدام الغلوتامات مع المالات أو البيروفات مع المالات مقابل السكسينات | معزولة أو منفذة | مرجع الروتينون؛ المقارنة مع السكسينات | توفر الصبغة مسارًا بديلًا، لذلك قد تبدو فعالية Complex I مستعادة رغم أنه جرى تجاوزه |
| هل يقع الخلل في Complex III؟ | قياس التنفس باستخدام antimycin A وmyxothiazol كل على حدة، مع قياس الجهد بالتوازي | ميتوكوندريا معزولة | مثبطا موقعي Qi وQo؛ نقطة نهاية لـComplex IV | تحدد حالة أكسدة واختزال الصبغة وتوزيعها بين الحجرات المسار |
| هل ترفع الصبغة عبء البيروكسيد؟ | Amplex UltraRed مع peroxidase، بعد المعايرة؛ ومستشعر متعامد في الخلايا | يطابق التحضير السؤال المطروح | Catalase؛ من دون peroxidase؛ ضابط الظلام مقابل الضوء | الصبغة نفسها تدور أكسدةً واختزالًا وتحفز ضوئيًا تكوّن البيروكسيد |
يتطلب الحد الأدنى لادعاء مقنع تمرير تراكيز الصبغة نفسها، 100 nM و300 nM و1 uM و2 uM، عبر قياس تدفق الأكسجين في ظروف التسرب وADP والأوليغومايسين والعامل المفكك للاقتران، ومعدل تخليق ATP، وجهد الغشاء باستخدام مسبارين ويفضل أن يكونا مختلفين، وانطلاق البيروكسيد المعاير مع catalase وضوابط خالية من الخلايا. أبلغ عن المجموعة المترابطة: تدفق الأكسجين plus معدل ATP plus ATP لكل أكسجين plus الجهد plus البيروكسيد. أي رقم واحد من هذه الأرقام بمفرده ليس سوى قياس يبحث عن معنى. :::