
Artikel
Metileenblou as antioksidant en pro-oksidant: wat verander die uitkoms?
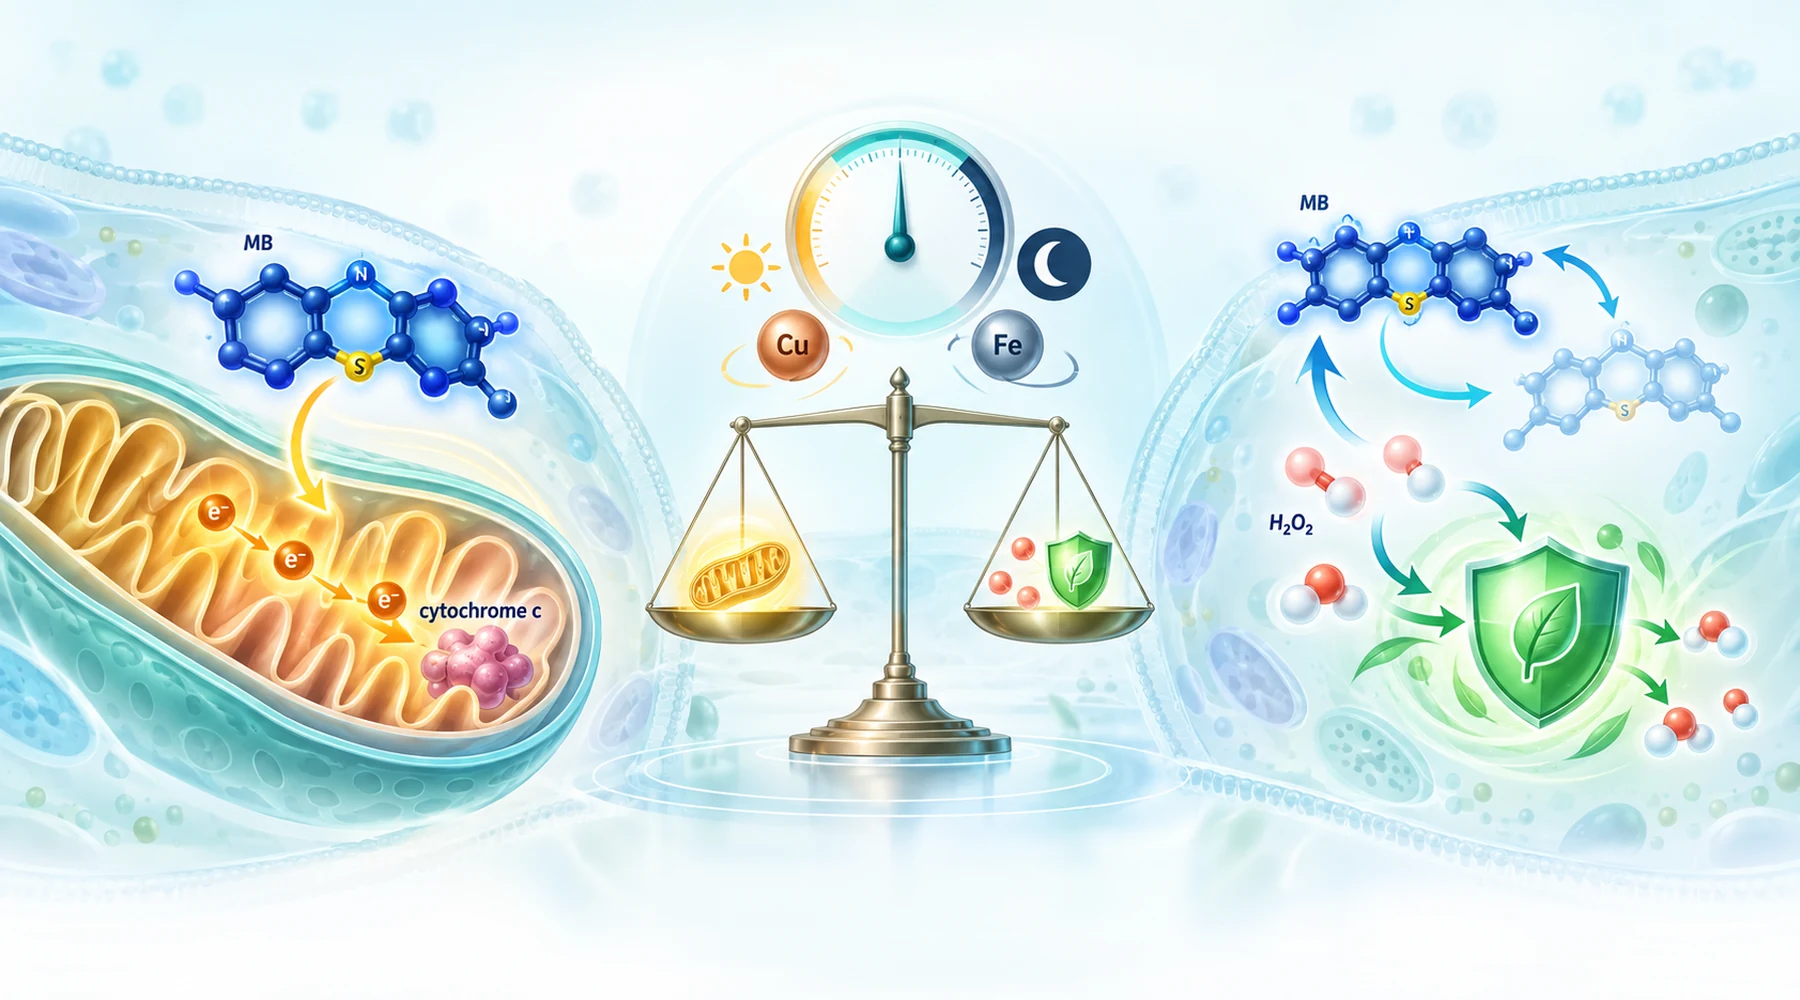
Gestel twee laboratoriums toets dieselfde blou kleurstof en rapporteer teenoorgestelde resultate. In die eerste haal geïsoleerde breinmitochondria beter asem en maak hulle meer ATP. In die tweede stel dieselfde preparaat baie meer waterstofperoksied vry. Albei verslae is korrek. Hulle beskryf dieselfde siklus vanuit twee teenoorgestelde perspektiewe, en die verwarring begin wanneer lesers een kant as die hele verhaal beskou.
Die fout is om te vra watter etiket by die molekule pas. Metileenblou is ’n tussenganger vir elektrone, soos die kaart van sy selbiologiese teikens in ’n breër konteks wys. Geoksideerde kleurstof aanvaar elektrone en word kleurlose leucoMB. LeucoMB dra daardie elektrone verder oor en word weer blou. Wat jy waarneem, hang af van wie die elektrone skenk, wie hulle ontvang en of die stelsel die waterstofperoksied wat onderweg gevorm word, kan verwyder. Die nuttige vraag is nooit of die kleurstof ’n antioksidant is nie. Dit is wat die toestande die elektronoordrag laat doen.
Die siklus wat albei kante oplewer
In die donker is die kernsiklus kort. NADH, NADPH of draers in die respiratoriese ketting reduseer die kleurstof. Die gereduseerde kleurstof het dan mededingende roetes. Dit kan elektrone na sitochroom c oordra en die vloei om ’n beskadigde kompleks ondersteun, wat verklaar waarom respirasie en membraanpotensiaal gedeeltelik herstel wanneer kompleks I of III geblokkeer word. Of dit kan elektrone direk na suurstof oordra, wat die blou vorm regenereer en waterstofperoksied vorm. Omdat die kleurstof geregenereer word, kan ’n klein hoeveelheid hierdie siklus baie keer herhaal en voortdurend reduseerekwivalente verbruik en peroksied vorm.
Twee verdere vertakkings verander die chemie heeltemal. Vrye koper of yster omskep daardie diffundeerbare peroksied deur Fenton-tipe reaksies in veel meer vernietigende plaaslike oksidante. Rooi lig maak ’n afsonderlike fotochemiese roete oop waarin aangeslane kleurstof energie na suurstof oordra en singletsuurstof vorm, ’n spesie wat in besonderhede behandel word in die verduideliking van tipe I- en tipe II-fotochemie. Redokssiklusse in die donker, metaalversterkte skade en fotodinamiese skade is drie verskillende meganismes wat toevallig dieselfde beginmolekule deel.
Matriks van toestande en uitkomste
Die tabel hieronder is die hulpmiddel om te bewaar. Elke ry bevat een veranderlike, die rigting waarin dit die uitkoms stuur en die eksperiment daaragter. Positief beteken ’n beskermende of verbeterde meetresultaat. Nadelig beteken meer oksidant, meer uitputting of meer skade.
| Toestand | Rigting van die uitkoms | Wat die eksperiment getoon het |
|---|---|---|
| Lae konsentrasie, 0.1 tot 1 uM, geïsoleerde mitochondria | Positiewe bio-energetika plus hoër peroksied | 0.1 uM het suurstofverbruik in hartmitochondria van gesonde en diabetiese rotte verbeter; 100 nM tot 1 uM het ATP, membraanpotensiaal en kalsiumopname in geblokkeerde breinmitochondria gedeeltelik herstel, terwyl peroksiedvrystelling onder elke toestand gestyg het |
| Hoër konsentrasie, bo 5 uM, selle sonder glukose | Nadelige oksidantsein | Endoteelselle het ’n algemene ROS-probe geoksideer en gereduseerde glutatioon verloor bo 5 uM wanneer glukose afwesig was; die byvoeging van glukose het albei voorkom |
| Kompleks I-substrate (glutamaat plus malaat) | Meer peroksied | Navorsing op sowel brein- as hartmitochondria het verhoogde peroksiedvrystelling met NADH-gekoppelde substrate gevind |
| Suksinaat plus rotenoon, hartmitochondria, 0.1 uM | Minder peroksied in daardie protokol | Die enigste duidelik antioksidatiewe peroksiedmeting in die stel; let daarop dat die protokol rotenoon en ’n ander weefsel ingesluit het, dus verklaar die substraat alleen dit nie |
| Rooi lig, 20 uM plus 630 nm | Nadelige DNA-skade | Geen beduidende mitochondriale DNA-letsels in die donker by 20 uM nie; dieselfde konsentrasie met rooi lig het elke getoetste fragment beskadig |
| Baie hoë konsentrasie in die donker, 100 uM | Nadelige selektiewe DNA-skade | Selektiewe mitochondriale DNA-letsels by purienryke sekwensies, ’n sprongsgewyse verandering teenoor die nanomolêre peroksiedsein |
| Koper of yster plus NADH, selvrye DNA | Nadelige oksidatiewe letsels | Koper het skade na ’n p53-brandpuntsekwensie gerig; yster-EDTA het wydverspreide skade veroorsaak; katalase en metaalcheleerders het die onderskeie roetes geblokkeer; geoksideerde guanien het toegeneem |
| Glukose teenwoordig, intakte selle | Beskermende buffering ondanks vinniger siklusse | Glukose het kleurstofreduksie verhoog, maar netto spanning verlaag, wat strook met NADPH-voorsiening deur die pentosefosfaatroete vir antioksidantherwinning |
| Selle met verhoogde askorbaatinhoud | Gemeng: askorbaat verbruik, probesein gebuffer | Die kleurstof het intrasellulêre askorbaat geleidelik geoksideer, selfs met glukose teenwoordig, terwyl dit probe-oksidasie gedeeltelik onderdruk het; die verdedigingspoel het die koste gedra |
| Diere wat vooraf met rotenoon behandel is, kleurstof eerste toegedien | Positiewe weefseluitkoms | Voorafbehandeling met kleurstof het rotenoongeïnduseerde mitochondriale DNA-letsels in die middelbrein van muise verminder, ondanks verhoogde peroksied in geïsoleerde mitochondria |
Die patroon oor die rye heen is die kern. Peroksiedproduksie en biologiese beskerming is afsonderlike asse. ’n Behandeling kan terselfdertyd nadelig op die eerste en positief op die tweede wees.
Waarom dieselfde dosis verskillende antwoorde gee
Konsentrasie bepaal elektronoordragkapasiteit, nie die einduitkoms nie. Peroksiedvrystelling uit breinmitochondria het vanaf 50 nM merkbaar gestyg in navorsing op intakte breinmitochondria, terwyl duidelike mitochondriale DNA-skade 100 uM in die donker vereis het. Dit is ongeveer ’n tweeduisendvoudige gaping tussen die eerste sein en genotoksisiteit, maar dit is nie ’n veiligheidsmarge nie. Die eindpunte, kompartemente en blootstellingstye verskil, dus dui die getalle op afsonderlike verskynsels eerder as punte op een kurwe. Die bespreking van dosis-respons plaas hierdie soort gaping tussen ’n lae sein en hoë skade in die breër konteks van hormese.
Die substraat bepaal waar elektrone inkom. NADH-gekoppelde brandstowwe gee die kleurstof volop reduseerekwivalente vir sowel die nuttige omleiding as die verkwistende suurstofreaksie. Die dikwels aangehaalde opsomming dat suksinaat die kleurstof antioksidatief maak terwyl glutamaat dit pro-oksidatief maak, lees te veel in die data in. Die hartstudie se suksinaattoestand vir peroksiedmeting het ook rotenoon bevat en ’n ander weefsel en dosis gebruik as die breinnavorsing wat verhoogde peroksied by elke substraat en respirasietoestand gevind het.
Lig verander die meganisme, nie net die omvang nie. Die duidelikste kontras in die stel is 20 uM in die donker wat geen waarneembare uitwerking op mitochondriale DNA-fragmente gehad het nie, teenoor 20 uM onder rooi lig wat almal beskadig het. Enigiemand wat ’n beligte eksperiment met een in die donker vergelyk, vergelyk fotochemie met redokssiklusse.
Metale omskep die oksidant. Sonder metale vorm die kleurstof se siklus in die donker peroksied, ’n diffundeerbare molekule wat selle ook as ’n sein gebruik. Met toeganklike koper of yster bevorder NADH-gereduseerde kleurstof metaalreduksie, en die gereduseerde metaal aktiveer peroksied tot hidroksielagtige spesies of koperperoksiedspesies langs DNA. Dit is hoe selvrye navorsing met NADH en metaalione brandpuntselektiewe én wydverspreide DNA-skade uit dieselfde aanvanklike kleurstof opgelewer het. Metaalhantering in die kompartement, nie die kleurstof alleen nie, bepaal of hierdie roete saak maak.
Brandstofstatus bepaal of die sel die koste kan dra. In endoteelselle wat aan 2 tot 20 uM kleurstof blootgestel is, het die verwydering van glukose die oksidantkoste blootgelê, terwyl glukosevoorsiening dit uitgewis het, al het glukose ook kleurstofreduksie versnel. Vinniger siklusse met voldoende hulpbronne vir verdediging vaar beter as stadiger siklusse met uitgeputte verdediging. Beskou enige oksidantbewering wat glukose- of NADPH-status weglaat as onvolledig.
Weefsel bepaal die toerusting. Endoteelselle regenereer NADPH deur glukosemetabolisme en beskik oor sitosoliese antioksidantpoele. Geïsoleerde mitochondria het niks daarvan nie. Gesuiwerde DNA het nie eens herstelmeganismes nie. ’n Resultaat in een preparaat voorspel min oor die ander, en daarom sal die beplande artikel oor weefselspesifieke response hierdie stelsels apart moet hou.
Direkte meting is nie stroomafverdediging nie
Baie skryfwerk voeg twee lae saam wat die eksperimente apart hou. Een laag vra hoeveel oksidant verskyn het. Die ander vra hoe die sel gereageer het.
Amplex-tipe peroksiedtoetse is die naaste aan die eerste laag, en selfs hulle rapporteer netto vloed, wat produksie minus afbraak minus uitvoer beteken. Die breinmitochondria-studie het veranderinge aan albei kante gevind: meer peroksied het gevorm en ’n bygevoegde peroksiedbolus is stadiger verwyder. Verder stroomaf lê glutatioonoksidasie, askorbaatverbruik, geoksideerde guanien en DNA-letsels wat polimerase blokkeer. Elke stap voeg biologie tussen die oksidant en die meetresultaat by.
Nrf2-gedrewe antioksidantensieme en mitochondriale biogenese lê in die tweede laag. Dit is aanpassingsprogramme wat ’n ligte peroksiedpuls kan aktiveer, en die outeurs van die studie oor beskerming van breinmitochondria stel juis daardie ligte spanning as sneller voor. Hulle merk egter op dat die oorsaaklike ketting deur Nrf2 op vorige navorsing berus eerder as op hul eie volledige demonstrasie. Beskerming wat ure later deur nuwe proteïene ontstaan, beteken nie dat die aanvanklike chemie antioksidatief was nie. Dit beteken dat ’n klein pro-oksidatiewe gebeurtenis ’n groter verdediging moontlik gemaak het. Die riglyne vir die lees van sulke bewerings, insluitend toetsbeperkings en verskille tussen preparate, is die onderwerp van die gids tot die lees van metileenblou-navorsing.
Waarom toetse van mekaar verskil
’n Algemene probe soos dihidrofluoresseïen rapporteer breë probe-oksidasie, nie ’n peroksiedkonsentrasie nie. Dit hang van peroksidase- en heemchemie af en kan ’n peroksiedstyging miskyk wat ’n gekalibreerde Amplex-toets waarneem. Die breinmitochondria-studie het skerp verhoogde peroksied sonder ’n ooreenstemmende superoksiedsein waargeneem, wat ’n waarskuwing is teen die aanhaling van enige enkele kleurstofgebaseerde antioksidantbewering. Optiese oorvleueling is ’n geldige kwessie om te kontroleer, aangesien die kleurstof sigbare lig naby algemene eksitasie- en emissiebande absorbeer. Die noukeurige studie het egter teen bekende peroksiedwaardes gekalibreer, blootstelling aan eksitasielig verminder met min verandering in die sein, en stadiger peroksiedverwydering met ’n afsonderlike elektrode bevestig. Interferensie moet deur ’n kontrole ondersoek word; dit is nie ’n rede vir outomatiese verwerping nie.
Die kalsiumresultaat illustreer dieselfde behoefte aan presisie. Akute blootstelling aan die kleurstof het nie die totale kalsiumlading vóór die deurlaatbaarheidsoorgang in die hartstudie verander nie, maar dit het die tempo van kalsiumopname in geblokkeerde breinmitochondria verbeter in die diabetesgerigte hartmitochondria-studie. Verskillende eindpunte, verskillende stelsels, geen teenstrydigheid nie.
’n Kontrolelys voordat jy ’n gevolgtrekking vertrou
Beskou elke gevolgtrekking oor antioksidatiewe of pro-oksidatiewe werking as ’n verslag oor ’n stelsel, en vra vyf vrae. By watter konsentrasie en in watter kompartement? Met watter elektronskenker en watter mededingende elektronaanvaarder? In lig of donker, en by watter golflengte en dosis? Met watter metale beskikbaar en watter brandstof- en antioksidantpoele voldoende aangevul? En met watter toets, wat oksidantvloed, skade of ’n aanpassingsrespons meet? Verander enige enkele antwoord en dieselfde molekule kan oor die matriks van beskermend na skadelik beweeg sonder enige paradoks.