文章
亚甲蓝与一氧化氮:NOS、cGMP 和血管信号传导
这个问题听起来很简单:亚甲蓝是否抑制一氧化氮?在实验室中,答案被拆分为四个独立的问题,而每个问题都有不同的实验检测方法。将它们混淆,是关于亚甲蓝和一氧化氮的文章看起来自信却含糊的主要原因。
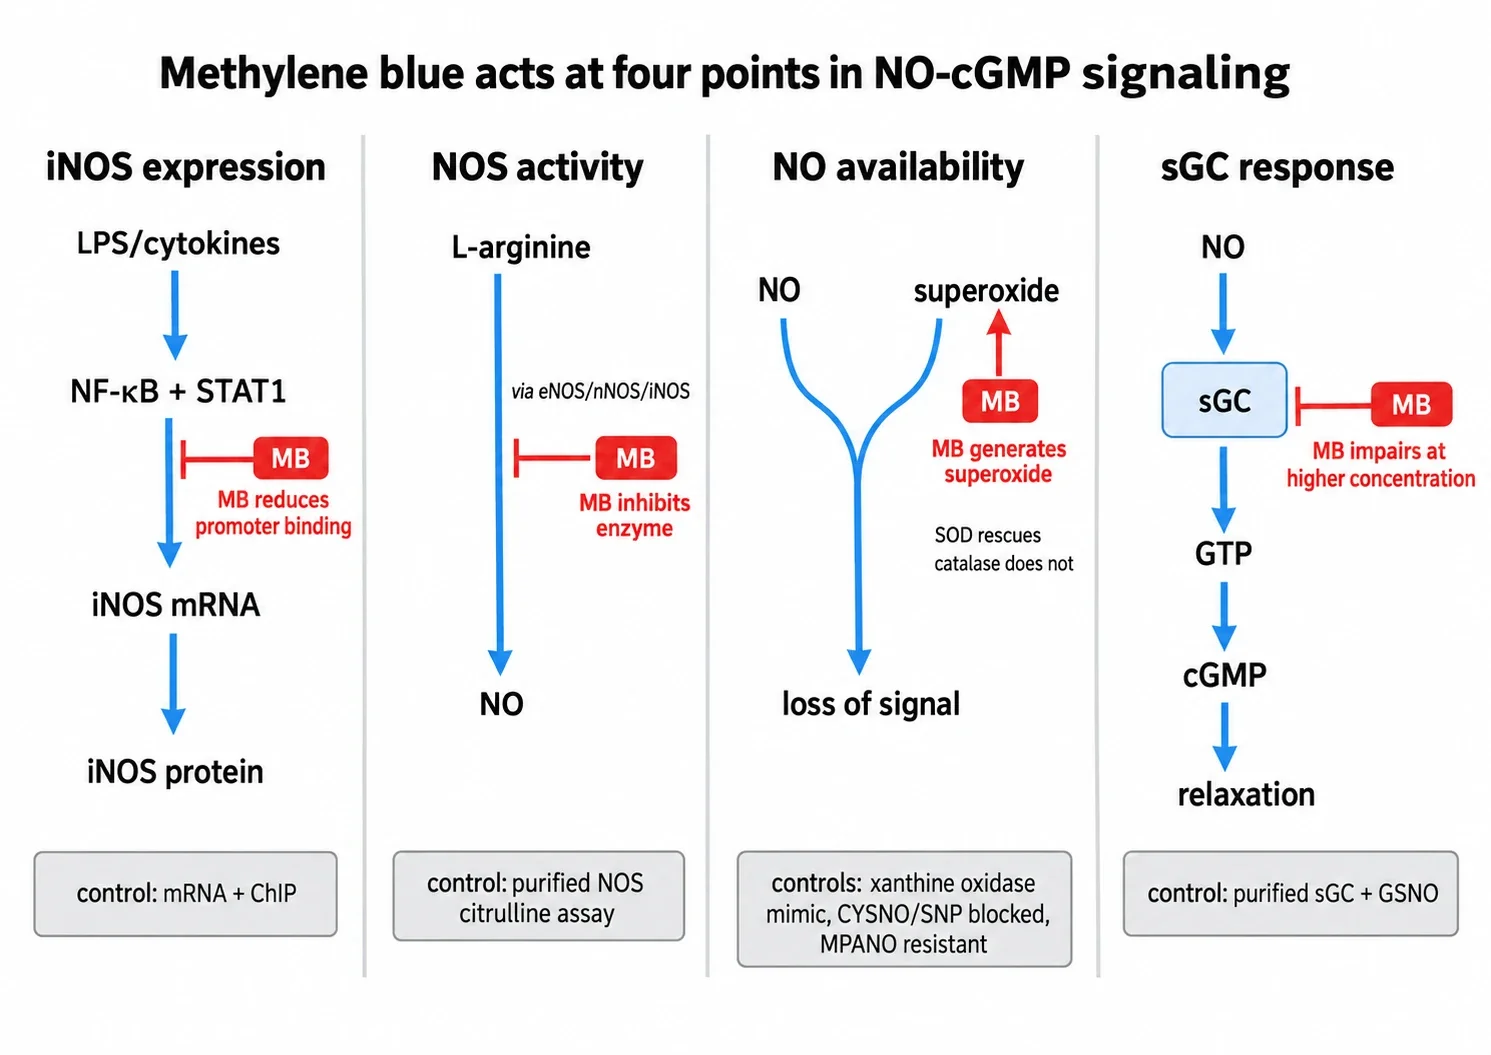
可以将一氧化氮信号看作由四个环节组成的链条。基因被转录以制造一氧化氮合酶。该酶将精氨酸转化为一氧化氮。气体扩散到目标位置,然后在与其他物质发生反应之前发挥作用。可溶性鸟苷酸环化酶检测到它并生成环磷酸鸟苷。亚甲蓝在每个环节都有已发表的影响,但这些证据来自不同的实验体系、不同浓度和不同亚型。在一个环节观察到的结果,并不能证明其作用发生在另一个环节。
用简单方式说明经典链条
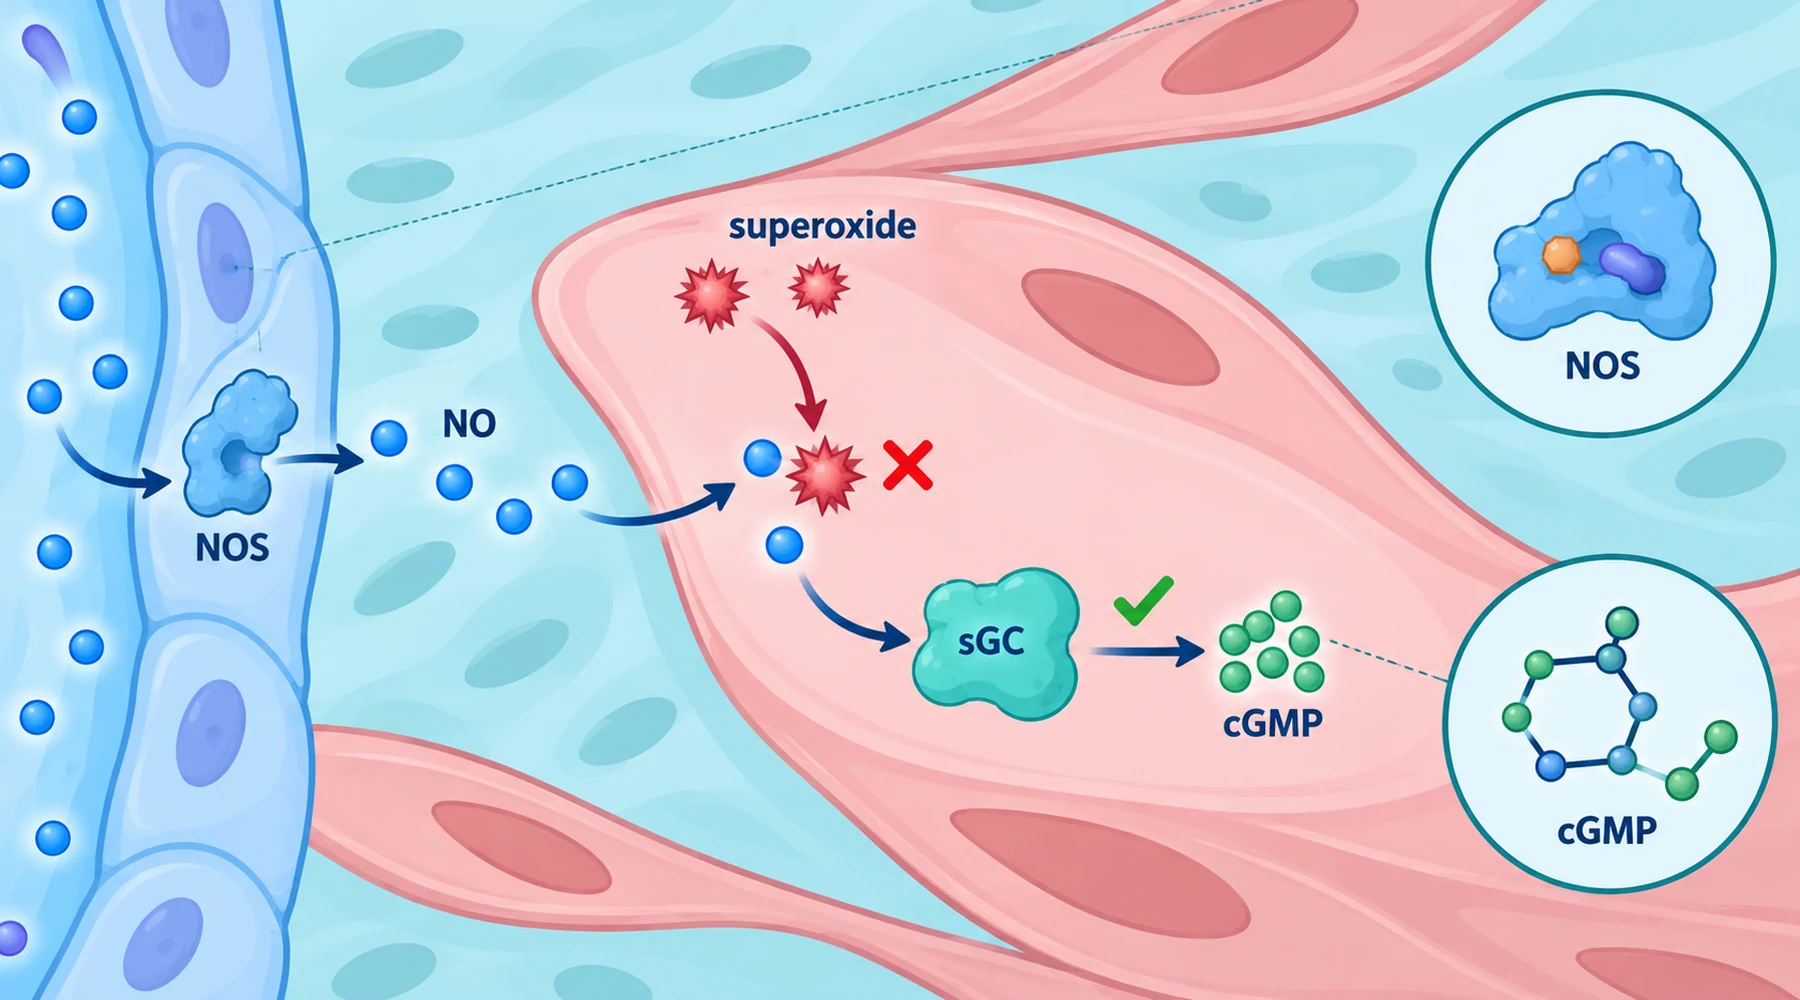
在血管壁中,标准过程如下。某种刺激作用于内皮细胞。内皮型一氧化氮合酶(称为 eNOS 或 NOS3)产生少量一氧化氮脉冲。气体扩散进入相邻的平滑肌细胞,与可溶性鸟苷酸环化酶中的还原态铁血红素结合,并加速 GTP 转化为环磷酸鸟苷。环磷酸鸟苷激活蛋白激酶 G,钙调节发生变化,肌肉随之舒张。
还有另一条需要分开考虑的链条。在感染或细胞因子暴露期间,细胞会转录另一种酶,即诱导型一氧化氮合酶(iNOS,也称 NOS2)。与 eNOS 相比,它产生更大量且持续时间更长的一氧化氮通量。第三种亚型,神经型 NOS(nNOS),又属于另一种环境。当论文只写一氧化氮合酶而未指定亚型时,应检查其实际测量的是哪一种。关于亚甲蓝电子转移方式的概述也说明了氧化还原靶点的一般规律:传递链本身不会单独决定结果,两端的参与者决定最终作用。
测量得到的环磷酸鸟苷同样是一种综合读数,而不是直接酶检测。其水平反映的是环化酶合成量减去磷酸二酯酶降解量,血管平滑肌中特别涉及 PDE5。因此,环磷酸鸟苷下降意味着到达检测器的信号减少,但其本身并不能说明是哪一个环节失效。
环节 1:产生的 iNOS 酶减少
在受到细菌脂多糖、干扰素 gamma 或两者共同刺激的小鼠巨噬细胞中,亚甲蓝阻止了预期的 iNOS 蛋白升高,并显著抑制了 iNOS 信使 RNA,这一结果来自巨噬细胞转录实验。关键在于未发生变化的部分。抑制蛋白 I kappa B alpha 的降解、NF kappa B 和 STAT1 的磷酸化,以及这些因子进入细胞核的过程基本保持不变。变化的是它们与 DNA 的结合,这一点通过染色质免疫沉淀实验得到证实,该实验显示 iNOS 启动子区域的占据减少。
这是位于酶数量上游的基因调控效应,而不是对已有酶的急性阻断。它属于炎症信号传导,其中转录因子必须先结合启动子,之后蛋白质才会出现。它不能直接说明静息血管中的组成型 eNOS 情况,应以这些限定条件描述。
环节 2:已有 NOS 酶运行速度降低
一项大鼠研究检测了不同层面的作用。清醒雄性大鼠静脉注射脂多糖,三小时后接受生理盐水或 3 mg/kg 静脉注射亚甲蓝,然后在下丘脑 NOS 活性研究中通过标记精氨酸转化为瓜氨酸的方法测量内侧基底下丘脑中的一氧化氮合酶活性。仅压力加生理盐水会诱导一定程度的钙非依赖性活性,而脂多糖使其升高至约对照水平的十倍。亚甲蓝消除了这两种诱导成分。在该组织中,该剂量和时间点下,依赖钙的组成型活性没有改变。
应准确理解这一结果:在这些条件下,测得的 iNOS 类型活性受到抑制。它不是基因表达测量,也不能证明亚甲蓝永久性选择性作用于 iNOS 而不影响 eNOS 或 nNOS。纯化酶实验进一步说明了这一点。在纯化一氧化氮合酶的直接检测中,亚甲蓝在 30 micromolar 浓度下完全阻断瓜氨酸生成,其半数抑制浓度在没有超氧化物歧化酶时约为 5.3 micromolar,在有超氧化物歧化酶时约为 9.2 micromolar,该结果发表于纯化 NOS 与鸟苷酸环化酶比较研究。另一项纯化 nNOS 研究指出,可能涉及对酶结合血红素的氧化。实际启示是,直接 NOS 抑制在分离系统中确实存在,但不能将下丘脑结果扩展为“亚甲蓝在所有情况下都会保护所有组成型 NOS”。
环节 3:一氧化氮在到达目标前丢失
最清楚证明环磷酸鸟苷下降可能由非酶阻断因素解释的实验,来自培养的兔肺动脉平滑肌细胞。该实验完全绕过内源性 NOS,直接加入一氧化氮供体,然后检测亚甲蓝是否仍然抑制环磷酸鸟苷反应,见血管平滑肌超氧化物研究。
实验测试了三种 1 到 100 micromolar 的供体:S 亚硝基 L 半胱氨酸、硝普钠,以及一种稳定的脱氨基类似物 MPANO。所有供体均使环磷酸鸟苷升高约 1.5 倍至 12 倍。10 micromolar 亚甲蓝使前两者降低 51% 至 100%,但 MPANO 反应不变。如果亚甲蓝只是阻断环化酶催化位点,则这种供体选择性很难解释,因为三者最终都作用于同一个下游酶。
随后三个对照实验将机制定位到超氧化物。第一,使用黄嘌呤加黄嘌呤氧化酶生成细胞外超氧化物,复制了相同模式:CYSNO 和硝普钠受到阻断,而 MPANO 不受影响。第二,亚甲蓝使平滑肌细胞产生具有剂量和时间依赖性的超氧化物,通过细胞色素 c 还原法测得。第三,超氧化物歧化酶完全阻止了抑制作用,而过氧化氢酶没有作用,这表明在该实验体系中,直接相关物种是超氧化物而不是过氧化氢。
共培养版本的实验值得说明,因为它定位了作用发生的位置。覆盖玻片上的内皮细胞短时间与平滑肌细胞共培养,使基础释放的内皮因子使平滑肌环磷酸鸟苷升高三到八倍。预处理任一细胞区域都会降低该信号,而超氧化物歧化酶部分恢复了内皮细胞预处理造成的影响。换句话说,亚甲蓝不一定需要作用于平滑肌检测细胞内部。它可以通过在信使传递过程中降低信号来发挥作用。亚甲蓝研究指南将这一点视为一般原则:在指定分子靶点之前,应先明确干预发生的细胞区室。
称其为 NOS 抑制是不正确的。供体发挥作用并不需要合酶步骤,但信号仍然下降。
环节 4:检测器本身响应降低
亚甲蓝对可溶性鸟苷酸环化酶的直接作用确实存在,但浓度十分关键。在上述纯化酶比较研究中,一氧化氮刺激的环化酶需要约 60 micromolar 亚甲蓝才能达到半数抑制,而 NOS 的半数抑制浓度约为 5 至 9 micromolar,即使 1 millimolar 也只能产生部分最大阻断。这大约相差六到十一倍。因此,单凭环磷酸鸟苷数值下降,不能将低 micromolar 细胞实验标记为选择性环化酶抑制。
后续氧化还原研究增加了另一层注意事项:亚甲蓝使一氧化氮激活的环化酶失活,其机制不同于简单的空气氧化血红素铁。因此,检测器可能受到影响,但具体化学机制尚未完全确定,而且浓度差异意味着在低 micromolar 暴露下,应首先排除超氧化物和 NOS 作用。这也是磷酸二酯酶调控需要考虑的位置。除非测量或阻断了降解过程,否则环磷酸鸟苷积累减少可能同时符合合成减少、降解加快或两者兼有。
为什么这不能简化为一个血压结论
每个环节都在不同系统中得到验证。巨噬细胞转录不同于下丘脑酶活性。脂多糖后的下丘脑活性不同于静息内皮张力。共培养中基础释放的内皮因子不同于激动剂刺激的血管舒张。10 micromolar 亚甲蓝作用于培养肺动脉细胞不同于人体循环。将这些结果合并成“亚甲蓝通过阻断一氧化氮升高血压”这样的说法,会丢弃实验控制设计本来要保留的关键区别。
三个检查可以保持解释准确。第一,明确亚型:静息血管张力中的 eNOS,诱导性炎症通量中的 iNOS,以及神经和部分纯化酶环境中的 nNOS。第二,明确一氧化氮信号的来源:内源性合成、基础内皮释放,或特定供体,例如 CYSNO、硝普钠或 MPANO,因为稳定供体抵抗亚甲蓝,而不稳定供体则没有。第三,明确浓度和挽救实验:超氧化物歧化酶挽救提示超氧化物参与,过氧化氢酶无效说明在该实验体系中过氧化氢不是主要因素,黄嘌呤氧化酶模拟显示充分性,而纯化酶实验区分直接催化作用与信号传递损失。
简要总结如下。与其将亚甲蓝视为选择性环化酶阻断剂,不如将其看作对一氧化氮到环磷酸鸟苷信号传导具有多个作用位点的扰动因素。根据实验体系和浓度不同,它可以降低 iNOS 转录因子结合,直接抑制 NOS 酶,通过超氧化物生成降低一氧化氮可用性,并削弱一氧化氮激活的环化酶。环磷酸鸟苷信号在血管研究中的作用以及细胞实验中使用的一氧化氮供体比较分别更详细介绍这些分支,而用于区分氧化还原效应和酶效应的方法解释了为什么超氧化物歧化酶加过氧化氢酶加稳定供体控制在该领域文献中经常出现。
亚甲蓝处理后出现低环磷酸鸟苷值,只能说明链条中的某个环节被破坏。只有控制实验才能说明具体是哪一个环节。