
文章
将亚甲蓝与细胞呼吸联系起来的实验
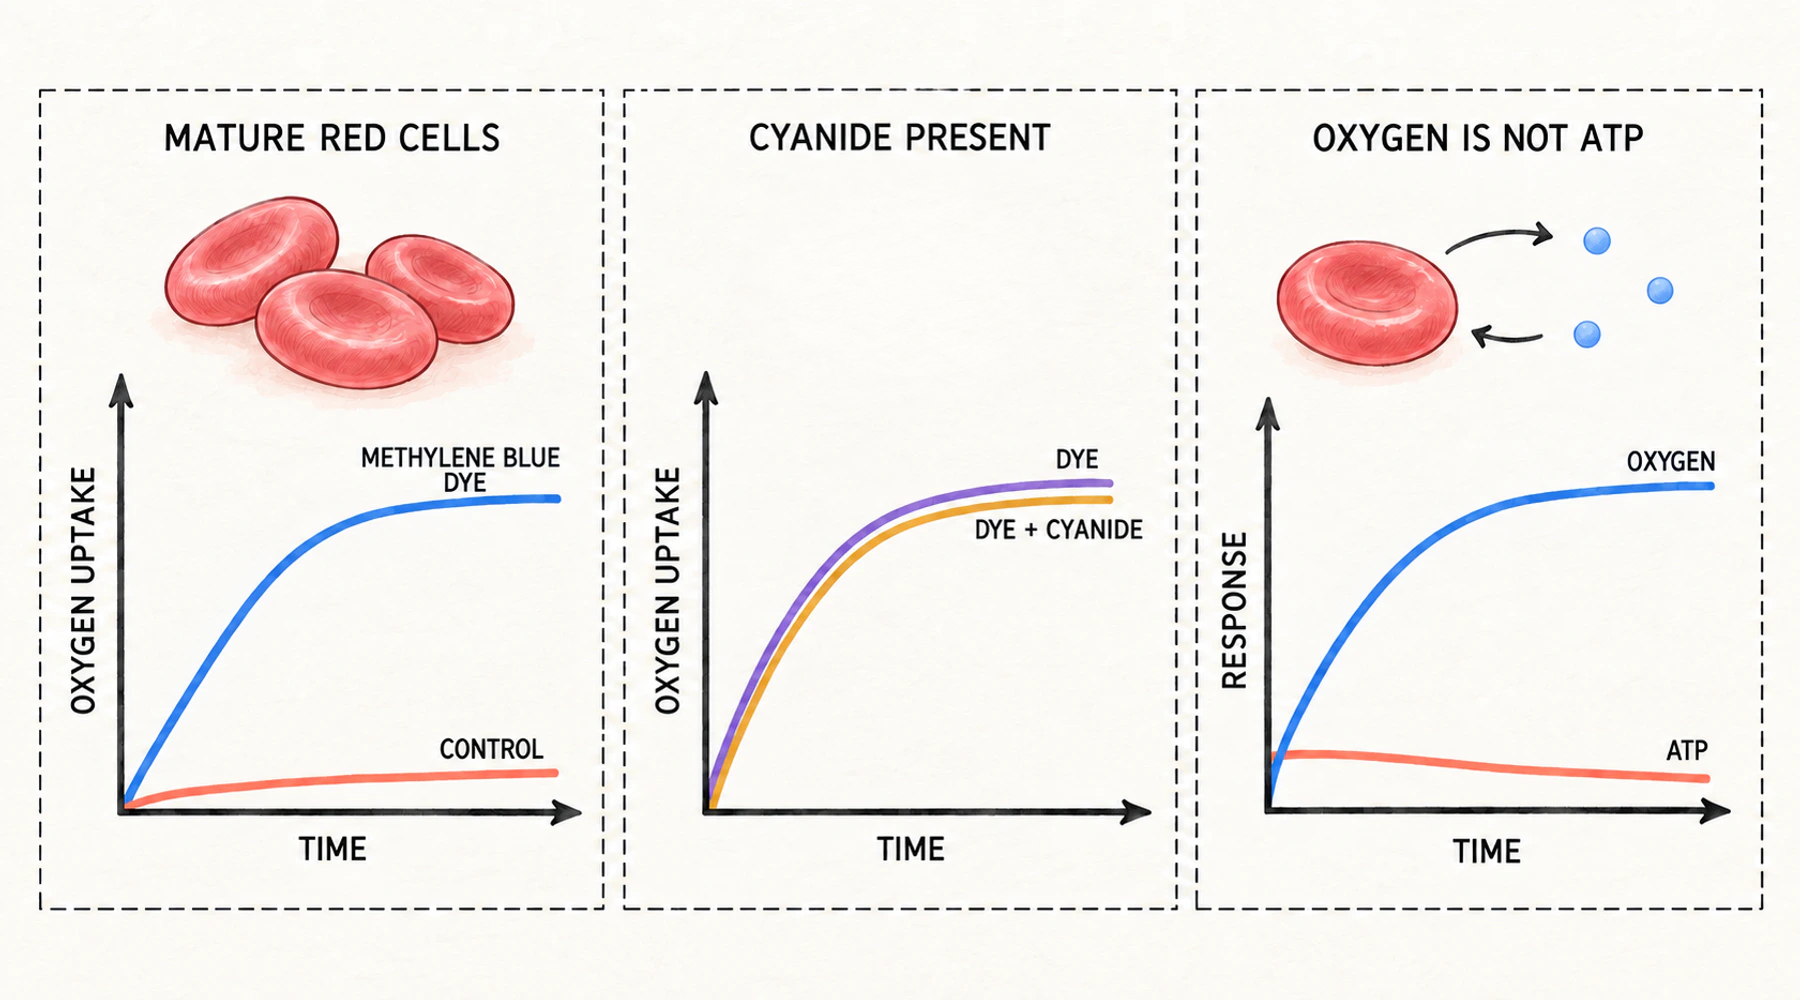
在37 °C下温育三小时的去纤维蛋白人血,会消耗其中约百分之二的氧气。在温育前加入少量亚甲蓝,同样的血液会消耗约百分之六十五的氧气。细胞没有发生任何变化。改变的只是溶液。
这个数字来自George Harrop和E. S. Guzman Barron于1928年在约翰斯·霍普金斯大学发表的一篇论文,也是“亚甲蓝改善细胞呼吸”这一广泛流传说法的来源。这个说法并非错误,但它的含义比表面看起来更狭窄。
表格中的数字实际测量了什么
终点指标是通过气体分析确定的氧摄取量。Harrop和Barron在10 °C下使用棉花过滤新鲜采集的血液,以去除白细胞,使样品充满氧气,将样品分开,向其中一部分加入染料,并在温育后分析两者。白细胞计数很少超过每立方毫米约一千个。氧消耗量被报告为样品初始氧含量中消失的比例。
他们还测量了二氧化碳,而这一方法在这里遇到了限制。去纤维蛋白血液在温育第一个小时内每100 mL释放多达两个毫摩尔的二氧化碳,原因与所研究的反应无关,因此全血的呼吸商无法使用。只有在Locke溶液中的洗涤细胞产生了可解释的数据,并且无论是否加入染料,数值都集中在0.73至0.80之间。
这一细节并非无关紧要。在这些论文中,“呼吸”指的是密闭容器中的气体交换。氧消耗与有用能量输出之间的差异将在氧消耗能告诉你什么以及不能告诉你什么关于ATP的信息中单独讨论。
染料在细胞呼吸最低时增加作用最大
成熟哺乳动物红细胞几乎没有可测量的氧消耗。带核鸟类红细胞则有。Harrop和Barron同时进行了两类实验,而这种对比构成了他们论证的基础。
在哺乳动物样品中,染料使氧消耗增加了二十到五十倍。在本身已经进行呼吸的鹅血中,增加量从未超过两倍。初始呼吸水平越高,染料能够增加的幅度越小。
同一物种内部也出现了相同趋势。一名患有真性红细胞增多症、含有未成熟细胞的患者的人血样品,在没有染料时消耗了11.3%的氧气,而健康供体洗涤细胞仅消耗2.8%。加入染料后,患者样品达到63.4%,仅提高了六倍,而正常细胞提高了近三十倍。染料使成熟细胞趋向于未成熟细胞的行为,这正是作者所描述的作用。
氰化物本应阻止这一过程
当时已知氰化物可以阻止细胞氧化。Harrop和Barron仍然将其与染料一起加入实验。
牛血结果具有代表性。三小时内,没有任何添加物时,氧含量从22.61降至22.03体积百分比。加入亚甲蓝后降至12.84。加入亚甲蓝和五千分之一摩尔氰化钾后,降至12.74。染料的作用基本未受影响。
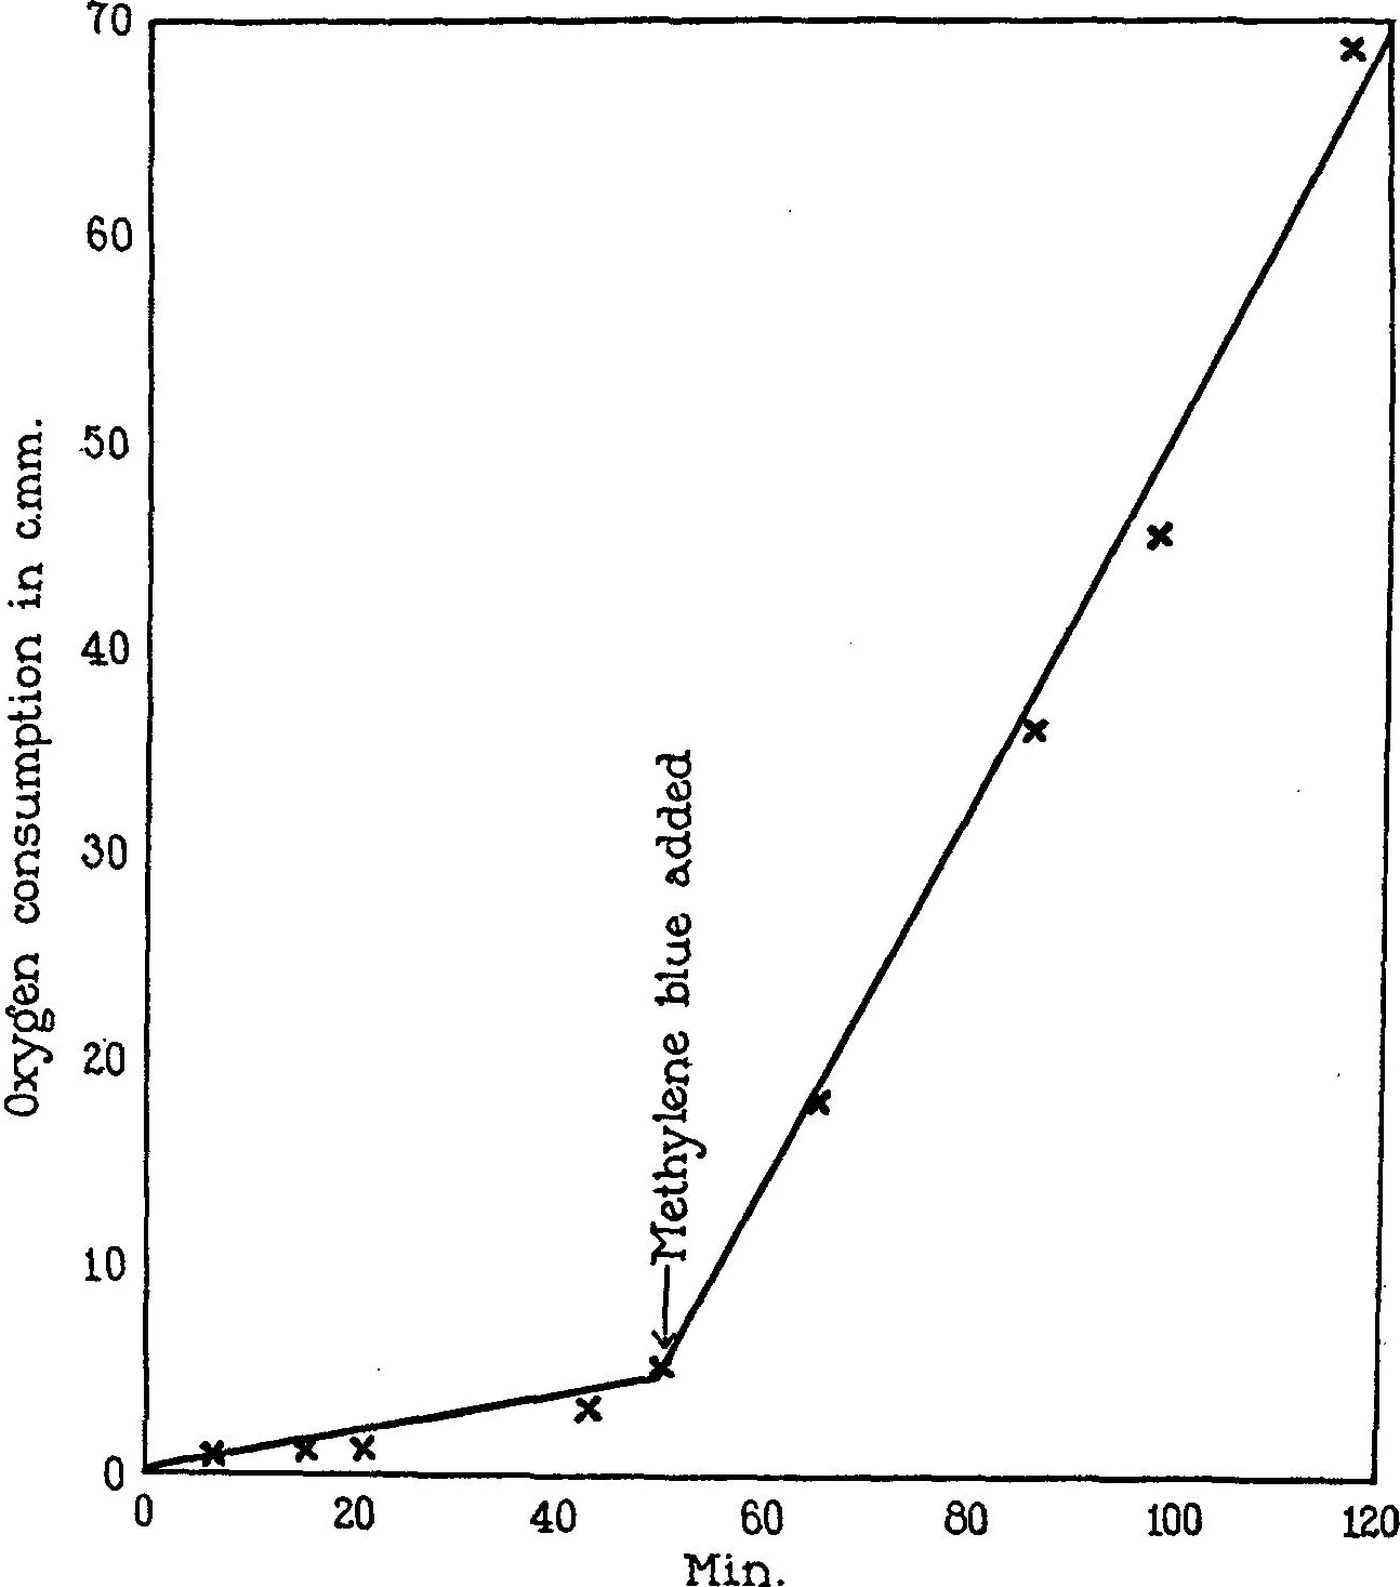
**图:**人红细胞连续微量呼吸记录。箭头表示加入亚甲蓝。在此之前,曲线几乎平坦;之后持续上升。转载自Harrop和Barron,《Journal of Experimental Medicine》48:207–223 (1928),PMID 19869478。
他们的结论是,染料作为氧载体发挥作用,“提供了一种在成年哺乳动物无核红细胞中已经消失的物质”。两年后,洛克菲勒研究所的Michaelis和Salomon将这一争论表述为永久性的形式:染料的作用要么是“染料的一种偶然性质”,要么染料是“生物体内某种未知物质的模型”。这个分歧至今没有完全解决。变化在于,现在可以更加精确地描述细胞。
肝脏提取物也产生相同作用
Michaelis和Salomon发现,器官的冷水提取物也会产生相同刺激作用。大鼠肝脏最强,其后依次为肾脏、脾脏和睾丸。脑、肌肉和血清几乎没有作用或没有作用。
随后他们测试了提取物对一氧化碳的反应。由提取物或染料诱导的呼吸,在98%一氧化碳和2%氧气的混合气体中没有改变。同样的气体混合物使酵母呼吸以及带核鸡红细胞的呼吸受到约60%至80%的抑制,这与Warburg关于一氧化碳敏感性呼吸酶的描述一致。因此,这种未鉴定的组织物质并不是Warburg的酶。
过程中排除了几个候选身份。还原型谷胱甘肽和半胱氨酸仅产生了它们自身氧化所需的氧消耗。Harden和Young的辅酶被排除,因为肌肉含量最高,而表现出的作用几乎最低。Keilin几年前命名的细胞色素也遇到了同样矛盾。他们自己提出的活性物质来自细胞核的观点,被称为仅仅是一种推测。
这种作用具有条件限制
细胞必须保持完整。蒸馏水造成的溶血或反复冷冻会消除染料和提取物的响应,而部分溶血会按照比例降低响应。
糖也是必需的。葡萄糖、果糖和蔗糖支持染料诱导的呼吸;甘露醇则不能。在没有糖的情况下,完全没有呼吸,且染料似乎会在此过程中损伤细胞,因此一到两小时后再加入葡萄糖无法恢复。作者提出,染料可能正在氧化细胞所需的结构成分。
光照显著增强染料作用,但在黑暗中作用仍然明显。其他可还原染料表现不同:甲苯胺蓝与亚甲蓝相当或更强,而靛蓝二磺酸盐几乎没有作用。染料的氧化还原电位与其作用大小之间没有出现明确关系,作者将其归因于膜通透性和毒性。
该作用追踪的是发酵,而不是呼吸
Barron于1930年的研究从细胞悬液转向正常大鼠器官和移植肿瘤的组织切片。
在没有有氧糖酵解的组织中,亚甲蓝没有作用或略微降低氧消耗:肾脏约14%,胰腺约14%,肝脏约5%。在有氧条件下进行发酵的组织中,它增加氧消耗:脾脏约8%,脑约13%。肿瘤增加范围从人乳腺癌约27%到Rous鸡肉瘤超过80%,大致与各组织的有氧糖酵解程度成比例。
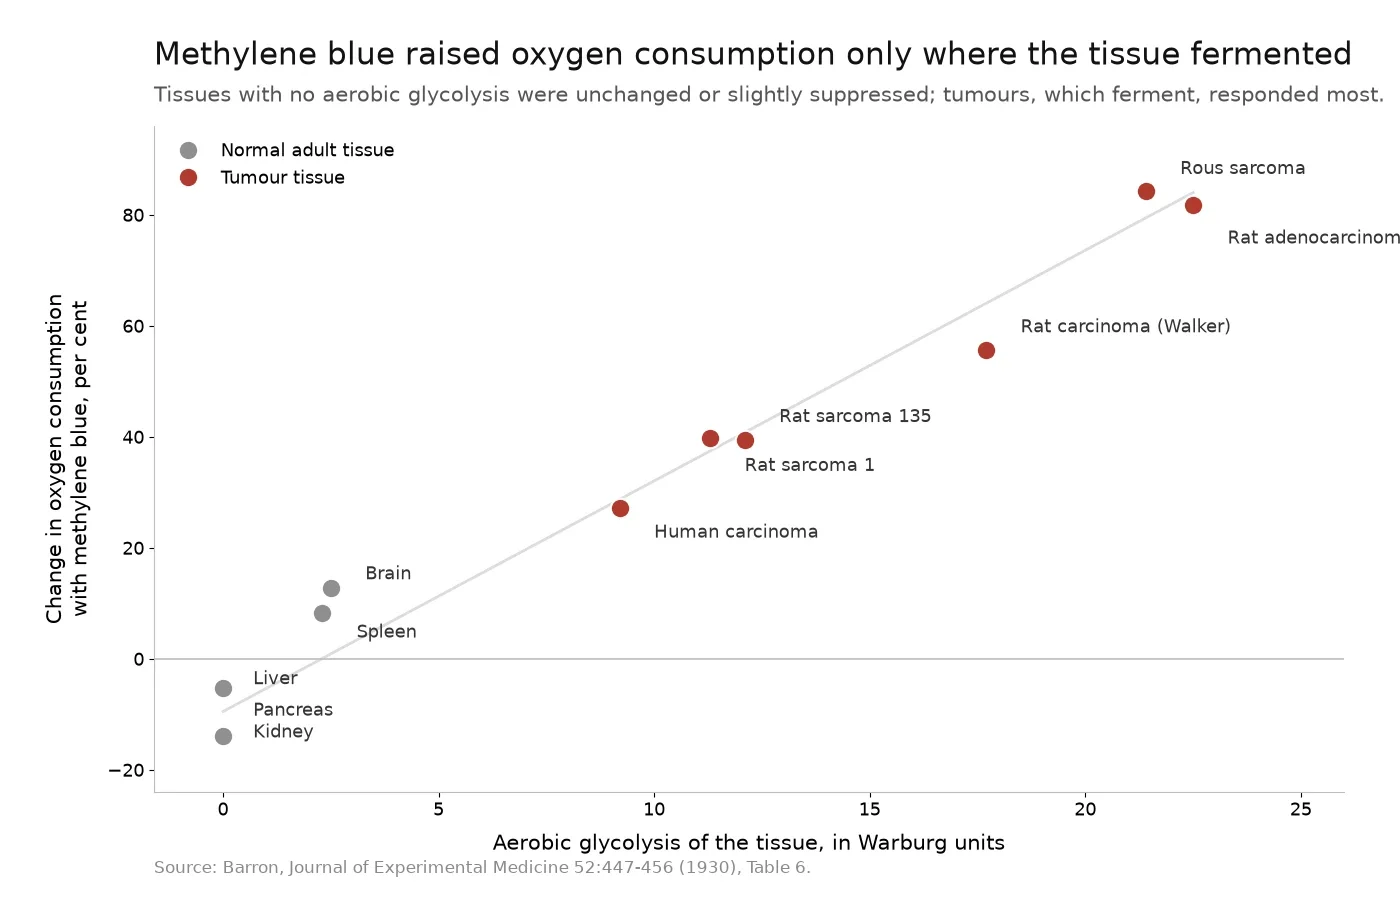
**图:**每个点代表一种组织类型。横轴为有氧糖酵解;纵轴为加入亚甲蓝后的氧消耗变化。数据来自Barron,《Journal of Experimental Medicine》52:447–456 (1930),表6,PMID 19869777。
随后氰化物实验产生了镜像结果。当这些此前无响应组织的呼吸被氰化物阻断且发酵显现时,染料再次增加氧消耗:肾脏约59%,肝脏约19%,脾脏约286%,睾丸约200%。
Barron提出,染料可以作为检测细胞或组织发酵能力的方法,并以一个推测结束:在含染料培养基中经过多代培养的肿瘤,未来可能使肿瘤代谢永久类似正常组织。这是1930年提出的研究问题,而不是治疗声明。
这些实验不可能测量什么
在1928年和1930年,“呼吸”意味着氧消耗。三磷酸腺苷(ATP)首次于1929年被报道,而关于分离线粒体在电子传递过程中进行磷酸酯化的证明直到1949年才出现。早期亚甲蓝论文无法测量能量产生,而且它们也没有声称自己测量了这一点。
细胞本身是第二个问题。成熟哺乳动物红细胞不含线粒体。在网织红细胞阶段,它们通过选择性自噬清除线粒体和核糖体,因此成熟红细胞依靠糖酵解运行,并主要依赖磷酸戊糖途径产生NADPH,而不是ATP。在1928年的实验中,并不存在需要修复的电子传递链。任何消耗氧气的过程都在进行其他事情。
如今,这一过程已经得到较合理的描述。亚甲蓝接受细胞还原当量中的电子并转化为无色亚甲蓝,随后被分子氧重新氧化,完成循环。在人红细胞中,依赖NADPH的黄素还原酶以及相关二硫键还原酶执行还原步骤。一项1976年的研究使用标记葡萄糖发现,染料刺激己糖单磷酸旁路,低浓度作用依赖氧合血红蛋白,而较高浓度0.1 mM会产生过氧化氢。还原型染料与氧气反应产生的是过氧化物,而不是磷酸键。
在线粒体中,情况比流行总结所暗示的更加存在争议。一种研究路线认为,染料从复合体I区域接受电子,并将其传递给细胞色素c。另一项研究发现,在小鼠脑线粒体中,亚甲蓝无法在抗霉素阻断后恢复呼吸,并认为电子受体位于复合体III的泛醌结合位点。第三项研究发现,低浓度提高静息氧消耗,同时不改变ADP刺激的呼吸。最直接的表述是,亚甲蓝诱导的氧消耗并不依赖氧化磷酸化:即使呼吸链受到抑制,甚至在不存在呼吸链的制备物中,这一过程仍然持续。
两者差异也存在直接测量结果。在分离的大鼠肝线粒体中,增加染料浓度降低呼吸控制比并导致肿胀,作者将其描述为氧化磷酸化解偶联。在灌流大鼠肝脏中,亚甲蓝提高氧消耗,同时ATP与ADP比例下降。
临床记录也传达了相同信息。高铁血红蛋白血症通过大约每公斤体重一至两毫克的静脉注射亚甲蓝进行处理,该过程依赖NADPH还原途径,而更大剂量会导致正在处理的情况。相同综述指出,该作用在完整红细胞中最明显,而在存在溶血时降低,这正是1930年溶血实验结果在七十三年后医院环境中的再次出现。一种有益作用和有害作用位于剂量阈值两侧的化合物,不能根据氧消耗测量推断其使用量。
为什么批次属于讨论内容
Harrop和Barron注意到了一个值得再次阅读的现象。亚甲蓝本身在光谱仪中会产生位于高铁血红蛋白两个特征峰之间的条带,“在粗略观察时可能很容易造成混淆”。染料可以模拟正在寻找的物质。
同样的问题也具有化学形式。一种作为微量成分存在的相关吩噻嗪具有自身的氧化还原行为、自身通透性和自身毒性。一项记录明确说明了这一风险:在亚甲蓝碘化研究中,含有约7%至8% Azure B的样品主要产生碘化