文章
亚甲蓝如何干扰用于测量它本身的实验
一个实验室以标准饲养浓度的亚甲蓝培育斑马鱼胚胎,然后用两种方法测量代谢。第 1 天,Seahorse 分析仪报告耗氧增加。第 4 天和第 5 天,Alamar Blue 微孔板测定报告能量消耗下降。同样的染料,同样的鱼品系,结论却相反。随后,一个不显眼的对照揭示了问题:只含亚甲蓝和 Alamar Blue 试剂、完全没有鱼的孔,读数也比仅含试剂的孔更暗。部分结果来自生物学变化,部分则是染料在给自己的考试打分。2025 年发表于 Communications Biology、研究发育中斑马鱼体内亚甲蓝作用的论文记录了这种区分。这正是亚甲蓝测定干扰的典型形式,也说明了为什么具有氧化还原活性的染料需要普通受试化合物不需要的对照。
刃天青测定实际报告什么
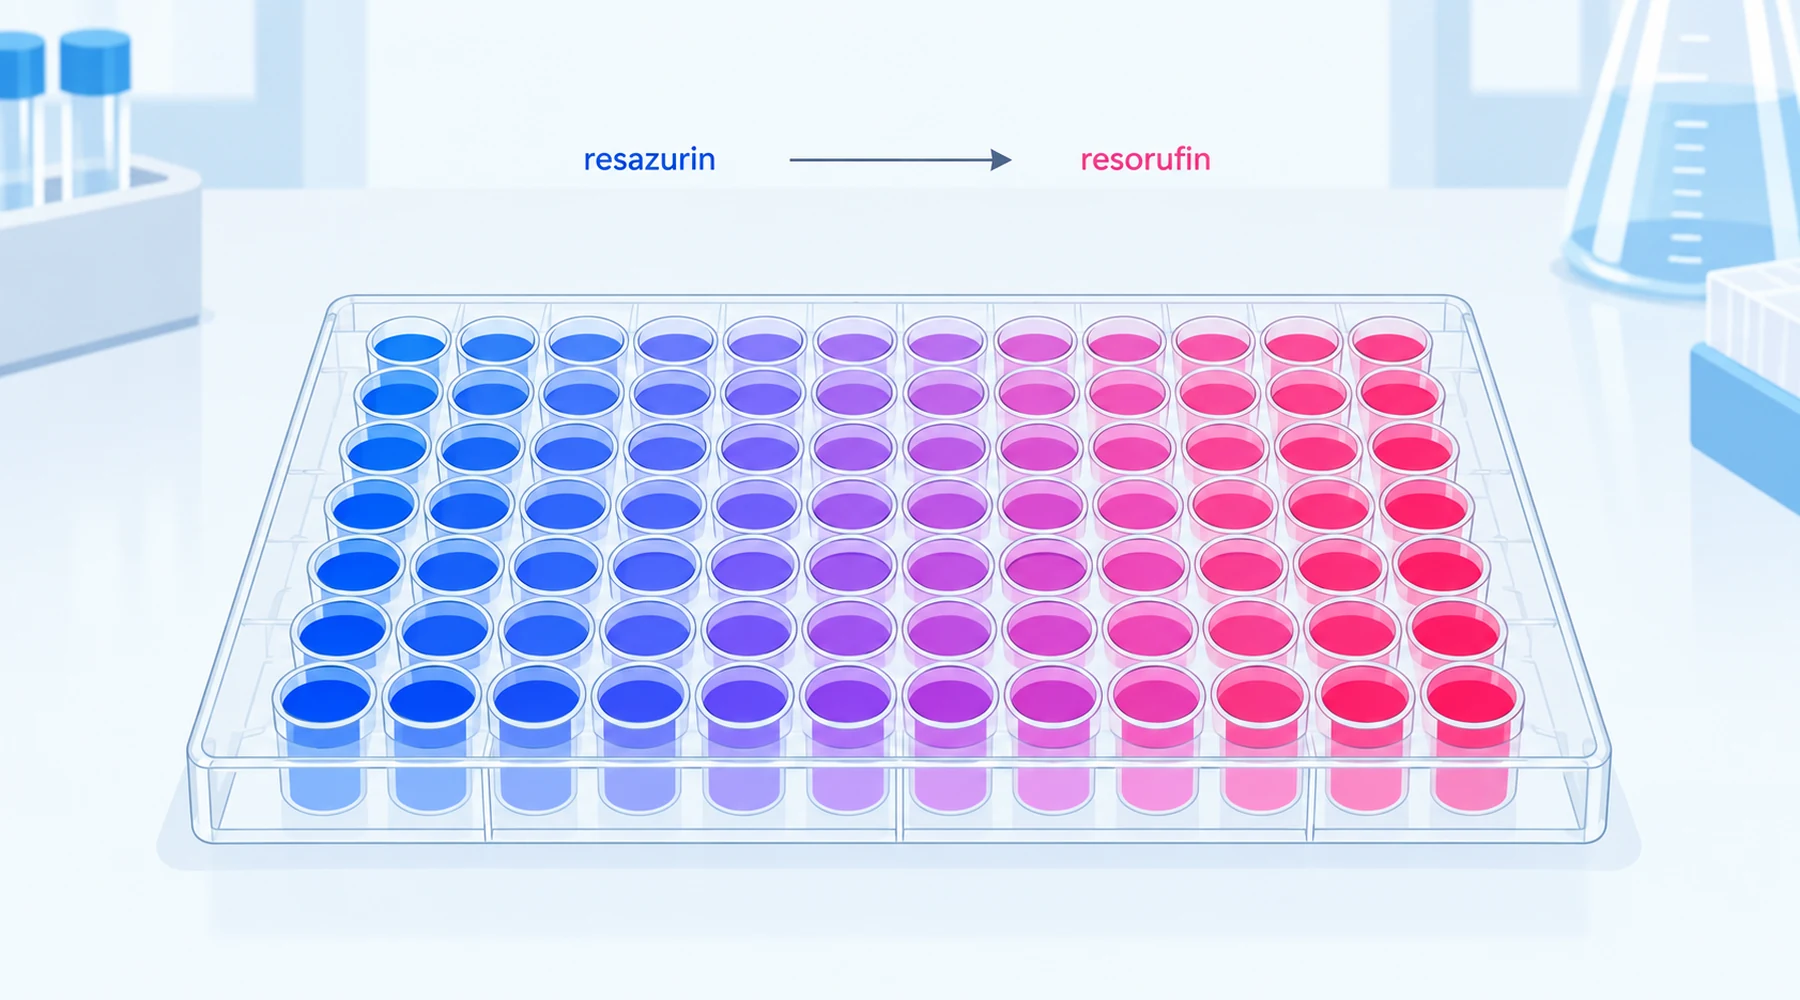
Alamar Blue 是一种刃天青溶液的品牌名称,因此亚甲蓝对 Alamar Blue 的干扰和亚甲蓝对刃天青测定的干扰,描述的是同一种冲突。氧化态刃天青呈蓝色,几乎不发荧光。代谢活跃的细胞将它还原为试卤灵,后者呈粉红色,在激发波长约 560 nm、发射波长约 590 nm 时具有强荧光。根据制造商的微孔板实验方案,可用激发范围约为 530 至 570 nm,发射范围约为 580 至 610 nm。如果还原进一步进行,试卤灵会转变为荧光较弱的二氢试卤灵,因此孔内细胞过多或反应时间过长,都会使校准曲线的高值端向下弯曲。
电子主要来自 NADH 和 NADPH,由胞质、微粒体和线粒体中的细胞还原酶及黄递酶传递。因此,读数反映的是综合还原能力,并非活细胞计数,也并非线粒体测量。信号更高,可能意味着细胞更多、每个细胞的还原通量更大,或两者兼有。一种改变 NADH 流向的化合物,即使没有杀死任何细胞,也能改变信号。请记住这一点,因为改变 NADH 流向正是亚甲蓝的作用之一。
两条干扰途径,同一个降低的信号
亚甲蓝通过两条相互独立的途径扭曲刃天青读数,任意一条单独存在,都能降低表观荧光。
途径 1 是光学干扰。 亚甲蓝在红光区有强吸收,单体吸收带位于约 660 至 665 nm,二聚体肩峰位于约 607 至 610 nm,其尾部延伸至试卤灵约 590 nm 的发射区域。光路中的染料吸收部分激发光,并再次吸收部分已发射的荧光。这种内滤效应即使在试卤灵生成量不变时,也会让孔变暗。光谱还随染料状态变化:对水和环糊精溶液中亚甲蓝光谱的因子分析区分出单体、二聚体和主客体复合物三种物种,它们在 500 至 700 nm 范围内具有不同的消光系数,因此光学误差的大小会随浓度、聚集和结合状态变化。实验上,应通过下文所述的加标回收试验,区分单纯光学衰减与分子猝灭,因为二者的纠正方法不同。
途径 2 是氧化还原竞争。 氧化态亚甲蓝接受 NAD(P)H 的电子,形成无色的隐色亚甲蓝;分子氧再将其氧化回蓝色形态,同时生成包括过氧化氢在内的还原态氧产物。这个循环每运行一轮,就会消耗原本可用于还原刃天青的还原当量,并在消耗氧的同时生成过氧化物。因此,Alamar Blue 信号降低可能意味着电子流经了亚甲蓝循环,而没有用于生成试卤灵;无论细胞实际发生了什么,微孔板读数都会将其表现为代谢下降。同样的化学过程也解释了测氧仪器中一个方向相反的陷阱:还原态染料被氧重新氧化时,即使没有任何生物学成分,也会驱动化学耗氧。因此,呼吸测定同样需要染料空白对照。氧、ATP 和膜电位读数的比较在线粒体情境下说明了这一点。
信号改变和生物学改变可以同时成立
这项斑马鱼研究的价值,恰恰在于它没有接受简单的二选一解释。生物学变化是真实的:两种饲养浓度都使第 1 天胚胎的基础耗氧增加,较低浓度使 ATP 相关呼吸增加,第 2 天用 JC-10 探针测得的膜电位升高,而第 1 天和第 4 天的线粒体复合物转录本减少。伪影也是真实的:鱼在 Alamar Blue 步骤前洗涤三次后,头部、口部和嗅觉区域仍带有可见的蓝色染色;含染料和试剂的无细胞孔自身也出现了幅度小但显著的荧光下降。第 4 天和第 5 天鱼体的 Alamar Blue 下降幅度大于无细胞效应,因此作者将结果解释为真实的代谢变化,只是观察它的读数受到轻微扭曲。这是正确的理解方式。一种既能参与氧化还原循环、又能吸收光的蓝色染料,通常会同时扰动研究中的生物学途径和报告试剂的化学过程;对照的任务是量化各自的贡献,而不是宣称其中一个不存在。环糊精结合研究也提供了相关启示:当主体分子将染料包合起来时,染色和葡萄糖摄取的增强一同减弱,这支持了代谢效应需要染料直接相互作用、而非弥散性氧化还原干扰的解释。将染料的物理读数与功能读数关联起来,正是区分机制与伪影的方法;关于阅读基于染料的代谢论断的指南进一步展开了这种做法。
区分两者的对照
在解释任何来自刃天青微孔板的亚甲蓝结果之前,先运行这些对照。浓度、培养基、孵育时间和光照必须与细胞实验完全一致,因为上面的每条途径都依赖这些条件。
| # | 对照 | 检测什么 | 通过标准 | 若未通过 |
|---|---|---|---|---|
| 1 | 培养基加染料,无试剂,无细胞 | 测定波长处的染料背景 | 背景相对于细胞信号较小 | 按各浓度分别扣除空白,绝不能只用一个全局空白 |
| 2 | 培养基加试剂,无染料,无细胞 | 试剂自发还原 | 孵育期间基线低且稳定 | 缩短孵育时间、更换培养基,或接受更高的背景下限 |
| 3 | 培养基加染料加试剂,无细胞 | 染料与试剂的直接化学反应 | 在噪声范围内与对照 2 相同 | 报告偏移量,不要将其归因于细胞 |
| 4 | 在溶剂对照孔与染料孔中加入试卤灵标准品 | 光学衰减或猝灭 | 两种基质中的回收率相同 | 按各染料剂量量化损失并校正,或更换读数方法 |
| 5 | 比较经洗涤与未经洗涤的无细胞残留带入对照 | 洗涤步骤后的残余染料 | 洗涤消除了无细胞效应 | 内化的染料仍然存在,因此对照 3 和 4 依然适用 |
对照 3 和 4 是多数论文会跳过、而多数亚甲蓝论文都需要的一对对照。对照 3 捕捉化学干扰,对照 4 捕捉光学干扰,两者共同在提出任何生物学论断之前,限定伪影的范围。
正交读数,各有自己的限制条件
没有任何单一的第二种测定能够为第一种测定背书。每一种正交读数都避开了某条途径,却仍暴露于另一条途径,因此应选择盲点不重叠的组合。氧化还原活性化合物的测定选择矩阵介绍了配对逻辑,而膜电位探针指南详细讨论了荧光方面的注意事项。
Seahorse 耗氧测量追踪电子流向氧,而不是流向试卤灵,因此完全绕开了报告试剂的化学过程。不过,染料也会通过化学过程消耗氧,所以必须在完整培养基中设置不含线粒体的染料空白对照。ATP 荧光素酶测定使用生物发光而非试卤灵荧光,因此避开了光谱重叠和还原酶竞争,但代价是报告 ATP 储量的平衡,而不是合成通量。TMRM 或 JC-10 等膜电位探针回答的是电荷梯度是否维持,但它们的荧光也位于染料吸收的同一可见光范围,因此残余蓝色染色同样使其复杂化,需要在每个染料剂量下设置仅含染料的空白对照。呼吸复合物亚基的转录本测量完全避开光学影响,并整合数小时内的变化,可与分钟尺度的微孔板读数互补。
因此,一项可信的亚甲蓝代谢论断,最低限度需要:带有对照 1 至 4 的刃天青结果,加上一个基于不同物理原理的非刃天青终点,再明确说明变化反映的是细胞数量、每个细胞的还原通量,还是两者兼有。缺少其中任何一项,读者就无法区分代谢减弱与孔内信号变暗。
干扰控制工作表
对于每次将染料与氧化还原报告试剂结合使用的实验,将这份工作表复制到实验记录本中。它是本文提供的原创实用资料:每个染料浓度填写一行。
A. 信号途径。 对每个浓度,记录:预期以单体还是二聚体为主(低微摩尔浓度与数十微摩尔及以上浓度)、无细胞孔中最终孔内混合物在 590 nm 处的吸光度,以及试卤灵加标回收百分比。如果回收率低于约 90%,应将该剂量下的所有荧光值视为受到光学衰减的值,而非准确的生物学值。
B. 化学检查。 在每个读数时间点,记录无细胞染料加试剂的荧光相对于仅含试剂基线的百分比。如果偏移量随时间增大,说明染料在测定期间正与报告系统发生反应,只读取终点会误导判断。考虑采用动力学读数或换用其他报告试剂。
C. 生物学交叉核对。 写明本次实验选择的正交读数、它自己的染料空白对照,以及如果刃天青结果真实,预期会出现什么结果。真实的代谢下降应使一个独立终点朝一致的方向变化。如果正交终点不一致,暂时不要相信任何一个结果,应重新设计实验,而不是把两者取平均。
D. 结论句。 按以下形式写一句话:在所述剂量和阶段,刃天青信号改变了所述幅度,其中所述幅度属于无细胞伪影,而正交终点(与之相符或不符)。如果任何一项空缺,实验就还没有完成。
亚甲蓝仍是一种有用的代谢探针,而斑马鱼研究显示,在许多设施每天都会倒入排水道的那些剂量下,它确实具有线粒体效应。只是这种染料要求使用它无法干扰的仪器来测量。为它设置仅含染料的孔、进行加标回收,并采用一种基于不同物理原理的读数,干扰就不再是陷阱,而成为一个可以用数值量化的量。