
文章
测量亚甲蓝的线粒体效应:氧气、ATP和膜电位
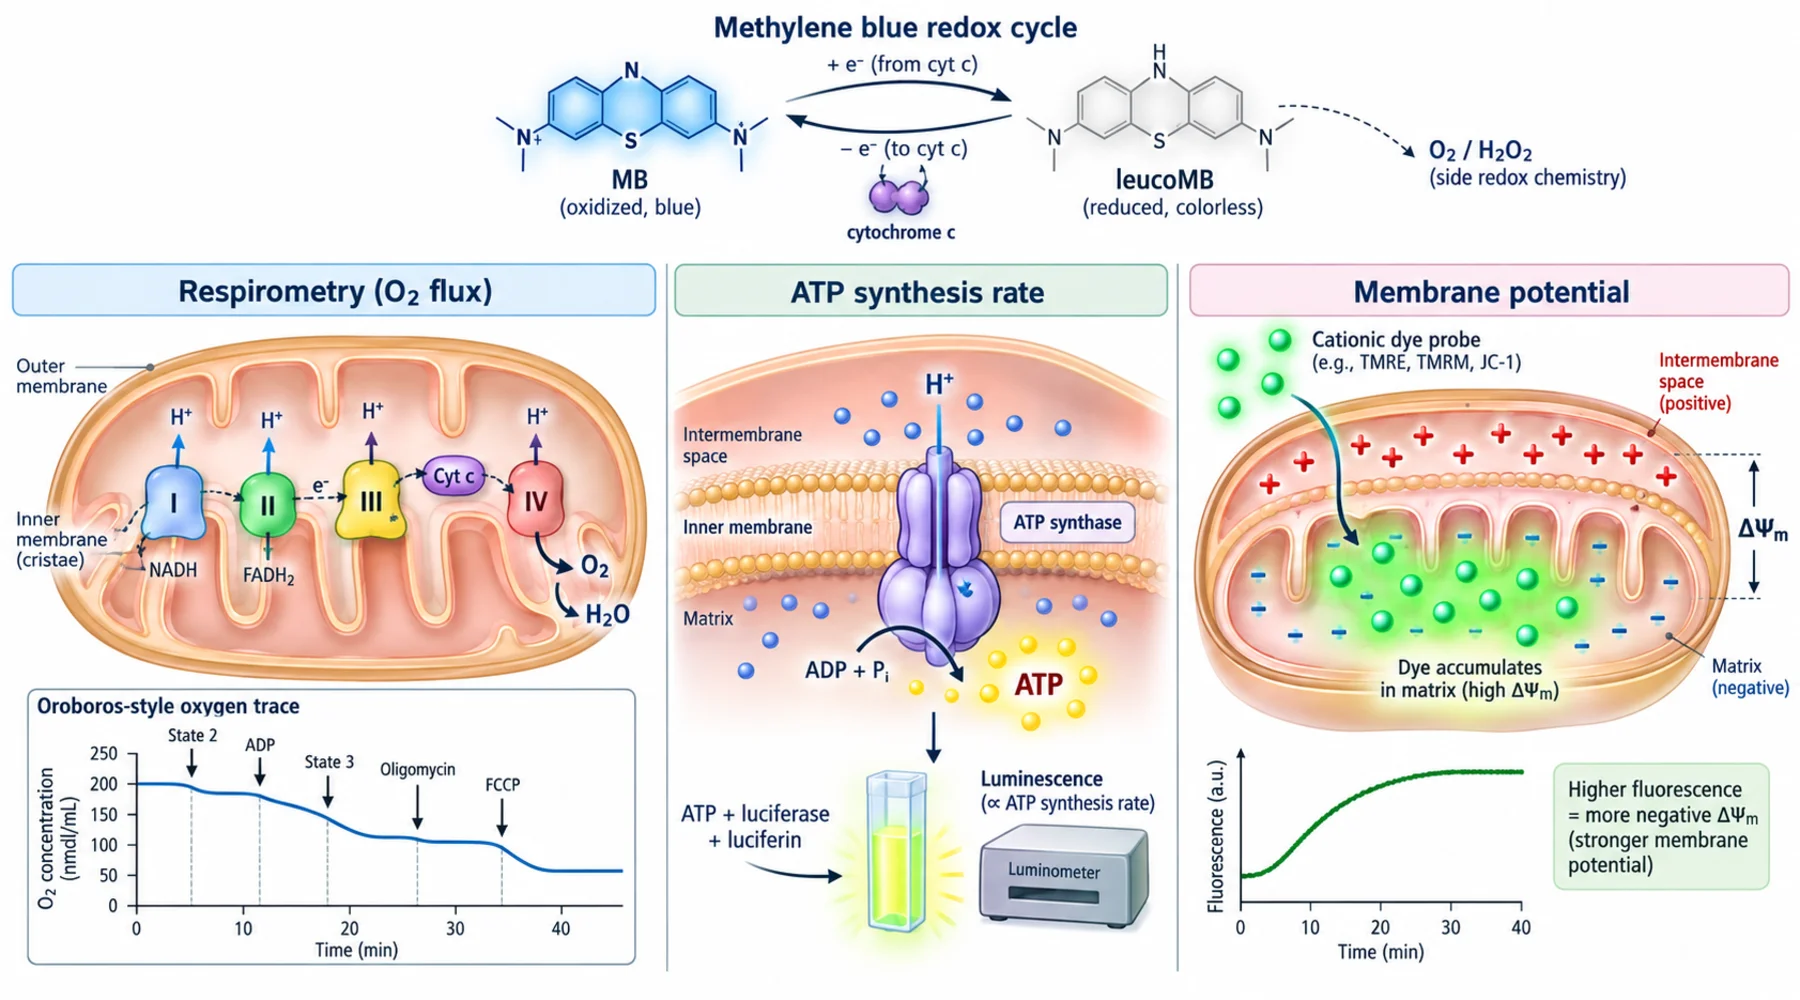
假设一个实验室向呼吸受损的线粒体中加入亚甲蓝,并观察到氧消耗增加。自然会写出的句子是该染料恢复了线粒体功能。但这个句子可能是错误的。氧通量、ATP合成和膜电位是三个不同的概念。它们共享同一个细胞器,就像备份、同步和共享共享同一个云文件夹一样:彼此相关,但遵循不同规则。将其中一个与另一个混淆,即使每个测量在技术上都正确,解释仍然会失败。
亚甲蓝容易造成这种混淆,因为它参与了被测量的系统。它是一种氧化还原循环剂,可以在上游接受电子并在下游释放电子;它也是一种亲脂性阳离子,会在线粒体处于能量状态时积累;同时还是一种强蓝色化合物,在与常见探针相同的光谱范围内吸收和发射光。单个读数无法承担这些信息。布达佩斯线粒体研究中展示的可靠模式是:同时测量氧通量、ATP合成速率、膜电位以及过氧化氢释放,并在每一步加入针对染料特性的对照。
呼吸测定测量的是氧通量,而不是能量输出
高分辨率呼吸测定,无论使用 Oroboros Oxygraph 还是 Seahorse 细胞外通量分析仪,都只报告一件事:氧被还原的速度。它不会报告每个电子泵出了多少质子、保留了多少梯度,或者ATP合酶是否利用了该梯度。
术语非常重要。在分离线粒体中,没有ADP的底物提供的是漏呼吸,含饱和ADP的底物提供的是氧化磷酸化能力,而解偶联剂滴定提供的是最大电子传递能力。在完整细胞中,Seahorse对应指标包括基础呼吸、寡霉素敏感的ATP相关呼吸、质子泄漏、FCCP定义的最大呼吸,以及鱼藤酮加抗霉素抗性的非线粒体氧消耗。将Seahorse输出称为State 3和State 4,是赋予该实验体系并不支持的精确性,正如Agilent Mito Stress Test框架所说明的。
亚甲蓝打破了“更多氧气等于更多能量”的直觉联系。在分离的豚鼠脑线粒体中,根据分离脑线粒体研究,100 nM至1 uM染料在谷氨酸加苹果酸、琥珀酸以及α-甘油磷酸底物条件下提高了静息氧消耗,其中α-甘油磷酸条件下增加约64%,但健康线粒体中的ADP刺激呼吸基本未改变。由于泄漏增加,而ADP刺激通量保持平稳,计算得到的呼吸控制比下降。该下降并不意味着染料损伤了线粒体,而意味着染料在正常呼吸之上增加了一个消耗氧的氧化还原循环。仅报告升高值的亚甲蓝氧消耗检测测量到了真实化学过程,但没有说明能量保存情况。
恢复实验在更大尺度上显示了同样的差距。当复合体I被阻断时,氧通量恢复约三倍,而ATP合成仅恢复约1.5倍。更多氧气到达电极,但较少氧气用于产生ATP。任何关于改善氧化磷酸化的声明都需要ATP方面的数据,最好以ATP/氧比表示,并说明分母的计算方式。
ATP检测测量合成速率,含量不能替代速率
ATP检测回答的是另一个问题:单位时间内生成多少ATP。动力学读数,例如通过数分钟追踪的萤火虫荧光素酶发光,或在340 nm读取的己糖激酶加葡萄糖-6-磷酸脱氢酶偶联检测,可以得到速率。单次终点总ATP测量得到的是含量,它反映的是合成减去消耗,单独无法说明氧化磷酸化情况。
布达佩斯团队使用了抑制腺苷酸激酶的偶联酶法,并发现亚甲蓝在1至2 uM浓度下使鱼藤酮处理和抗霉素处理的线粒体ATP生成略微但显著提高。这是真实的恢复,但属于部分恢复。TEGDMA毒性研究在不同模型中得出了类似结果:5 mM牙科单体TEGDMA使复合体I相关呼吸从约286个通量单位降至约28,而2 uM染料使其恢复至约86。
对于有色氧化还原化合物,有两个对照不可省略。第一,使用寡霉素确定测得的ATP合成有多少依赖ATP合酶。第二,使用已知ATP加完整试剂以及实验中确切染料浓度进行无细胞加标回收实验,至少测试0、100 nM、300 nM、1 uM和2 uM。染料可能吸收发射光、抑制报告酶,或改变试剂氧化还原化学过程,而通用的荧光素酶检测指南建议针对这类干扰进行生化反筛。不要因为1 uM浓度通常低于高浓度淬灭水平,就假设其不存在伪影。
膜电位探针测量的是染料分布,而不是通量
番红O、TMRM和TMRE、罗丹明123以及JC-1都是可穿膜阳离子。它们根据电化学平衡积累于带负电的基质中,因此总体荧光通过探针所在位置间接反映电位。它们都不测量ATP或电子通量。
每种探针都有适合的实验体系。番红O适用于分离线粒体和通透化细胞,通常接近2 uM,激发波长约495 nm,发射波长约585 nm,并在淬灭模式下工作,此时摄取变化会改变总体荧光。TMRM和TMRE适用于完整细胞中的低纳摩尔加载、非淬灭模式,此时去极化会释放染料并降低线粒体荧光;高负载时,信号方向可能因自淬灭而反转。JC-1提供方便的绿色到红色比例,但依赖加载量和线粒体质量,因此相比经过严格控制的TMRM,其定量能力较弱。这些权衡总结于广泛使用的线粒体膜电位探针综述中。
亚甲蓝会在实际工作浓度下产生光学干扰。其接近600至665 nm的吸收带与红色探针发射重叠,因此内滤效应、淬灭以及激发光吸收都是合理可能性。该染料本身也是第二种亲脂性阳离子,其分布会随被测电位变化。解决方法是增加冗余并设置空白:仅探针、仅染料、探针加各浓度染料、使用FCCP完全去极化作为零点参考,以及最好加入第二种光学性质不同的探针。复合体III旁路研究通过在抗霉素和粘噻唑抑制后同时使用番红O和TMRM重复膜电位恢复实验,并获得相同的定性恢复结果,建立了这一标准。一个光学报告器只是提示;两个独立报告器才构成证据。
三种制备,三个不同问题
分离线粒体、通透化细胞和完整细胞不是同一个检测方法的不同敏感性设置。它们是不同概念,具有不同操作原理。
分离线粒体保留电子传递链、内膜和基质机制,同时去除了质膜、细胞质和网络结构。这种去除正是其价值所在:底物、ADP、抑制剂和染料浓度都可以精确定义,因此可以分配具体通路。代价是失去天然底物供应、信号传递和需求。
通透化细胞保留了大部分细胞结构中的线粒体,同时允许外源底物和ADP通过开放的质膜进入。它适用于在细胞环境中定位底物通路缺陷。过度通透化会损伤外膜,而细胞质调控会流失。
完整细胞保留所有因素:质膜屏障、细胞质还原剂、内源底物运输、线粒体网络以及ATP需求。它们最接近生理状态,但最远离机制解析,因为染料摄取、还原和隔离都会影响有效线粒体暴露。
TEGDMA研究有意使用了三个层级:分离脑线粒体用于观察染料对氧化和电位的恢复;通透化牙髓干细胞主要用于将损伤定位到复合体I相关底物氧化;完整干细胞用于观察2 uM染料对受抑制氧消耗的生理净效应。对于比较不同制备体系中的线粒体读数的读者,关于亚甲蓝如何在线粒体呼吸链中传递电子的配套说明提供了通路背景,而关于如何解读亚甲蓝呼吸研究的指南涵盖剂量和抑制剂逻辑。
氧化还原活性染料所需的对照
氧化还原循环剂需要比普通抑制剂更长的对照列表,因为仅染料化学反应就可能模拟生物效应。
对于呼吸测定,应设置仅缓冲液腔体用于漂移检测、缓冲液加染料但无生物材料的腔体、染料加检测体系中存在的任何细胞外还原剂,以及在完整细胞中使用末端鱼藤酮加抗霉素定义非线粒体氧消耗。注意,还原后的染料可通过向氧转移电子重新氧化并形成过氧化氢,因此在没有电子供体时设置染料空白,会低估NADH或NADPH存在后出现的无细胞氧消耗。
对于过氧化氢,优先使用经过校准的Amplex UltraRed加辣根过氧化物酶,而不是非选择性的DCFDA染料;使用过氧化氢酶验证,并测试光照依赖性,因为该染料是光敏剂。脑线粒体研究发现,仅100 nM染料即可使过氧化物负荷增加超过四倍,同时降低清除速度,并且过氧化物由还原染料直接形成,不经过超氧化物中间体。探针选择和光照控制的细节属于关于测量染料实验中的活性氧的配套文章,而过氧化物何时作为信号、何时作为负担的问题,则与细胞氧化还原平衡和抗氧化声明一同讨论。
对于通路声明,应测试复合体III的两个抑制位点:Qi位点的抗霉素A和Qo位点的粘噻唑,并加入氰化物处理的复合体IV终点。早期小鼠脑研究报告染料可以恢复鱼藤酮阻断但不能恢复抗霉素阻断的呼吸,而后来的三物种研究发现两种抑制剂下均有部分恢复,并有直接细胞色素c还原的证据。应将旁路机制视为与新数据相符,而不是已经确定,因为染料浓度、抑制位点、底物状态和染料分布都会改变观察到的路径。
检测选择矩阵
根据问题选择测量方法,而不是反过来。
| 生物学问题 | 最佳检测 | 制备体系 | 关键对照 | 常见混淆因素 |
|---|---|---|---|---|
| 染料是否恢复电子通量? | 使用定义底物和抑制剂方案的Oroboros或Seahorse氧消耗检测 | 用于通路解析的分离线粒体;用于整体效应的完整细胞 | 染料单独氧空白;末端鱼藤酮加抗霉素 | 氧化还原循环消耗氧但不产生ATP |
| 染料是否恢复ATP合成? | 动态ATP合成速率,荧光素酶或偶联酶检测 | 分离线粒体或受控通透化细胞 | 寡霉素;已知ATP加染料加标回收 | 报告系统抑制和光学衰减;将含量误认为速率 |
| 恢复是否具有能量效率? | 平行氧通量加ATP速率;报告ATP/氧 | 分离线粒体或通透化细胞 | 两种读数使用相同底物和ADP | 染料到氧再到过氧化物的通量增加分母 |
| 染料是否恢复膜电位? | 分离线粒体使用番红O;细胞中低负载TMRM;可能时使用第二探针 | 探针匹配制备体系 | FCCP完全去极化;染料单独光谱扫描 | 600至665 nm附近的吸收和淬灭;染料分布变化 |
| 缺陷是否位于复合体I? | 使用谷氨酸加苹果酸或丙酮酸加苹果酸,与琥珀酸比较的呼吸测定 | 分离或通透化体系 | 鱼藤酮参考;琥珀酸比较 | 染料提供替代路径,因此复合体I活性可能显示恢复,实际是旁路 |
| 缺陷是否位于复合体III? | 分别使用抗霉素A和粘噻唑进行呼吸测定,并平行检测电位 | 分离线粒体 | Qi和Qo位点抑制剂;复合体IV终点 | 染料氧化还原状态和区 |