
Стаття
Метиленовий синій і оксид азоту: NOS, cGMP та судинна сигналізація
Запитання здається простим: чи пригнічує метиленовий синій сигнал оксиду азоту? У лабораторії воно розпадається на чотири окремі запитання, і для кожного потрібна своя експериментальна перевірка. Саме їх змішування є головною причиною того, що тексти про метиленовий синій і оксид азоту звучать упевнено, але залишаються нечіткими.
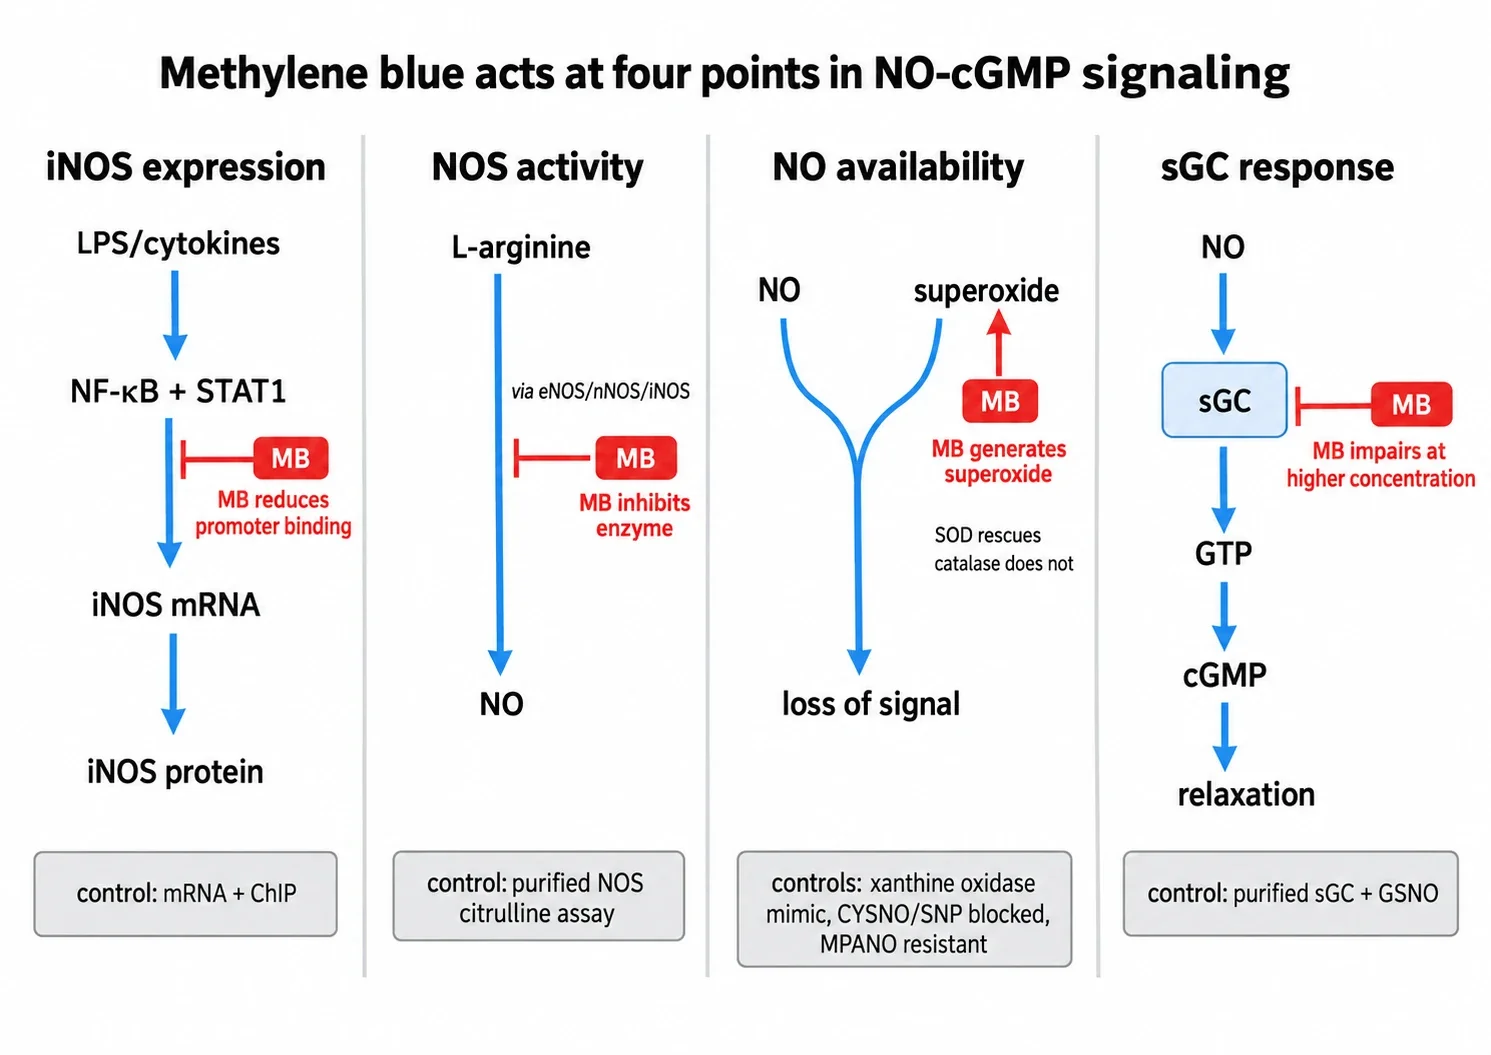
Уявіть сигнал оксиду азоту як ланцюг із чотирьох ланок. Ген транскрибується, щоб утворилася синтаза оксиду азоту. Фермент перетворює аргінін на оксид азоту. Газ дифундує до своєї мішені, перш ніж прореагує з чимось іншим. Розчинна гуанілатциклаза виявляє його й утворює циклічний GMP. Опубліковані дослідження описують вплив метиленового синього на кожну ланку, але ці дані отримано в різних експериментальних системах, за різних концентрацій і для різних ізоформ. Результат для однієї ланки не доводить дії на іншу.
Канонічний ланцюг простими словами
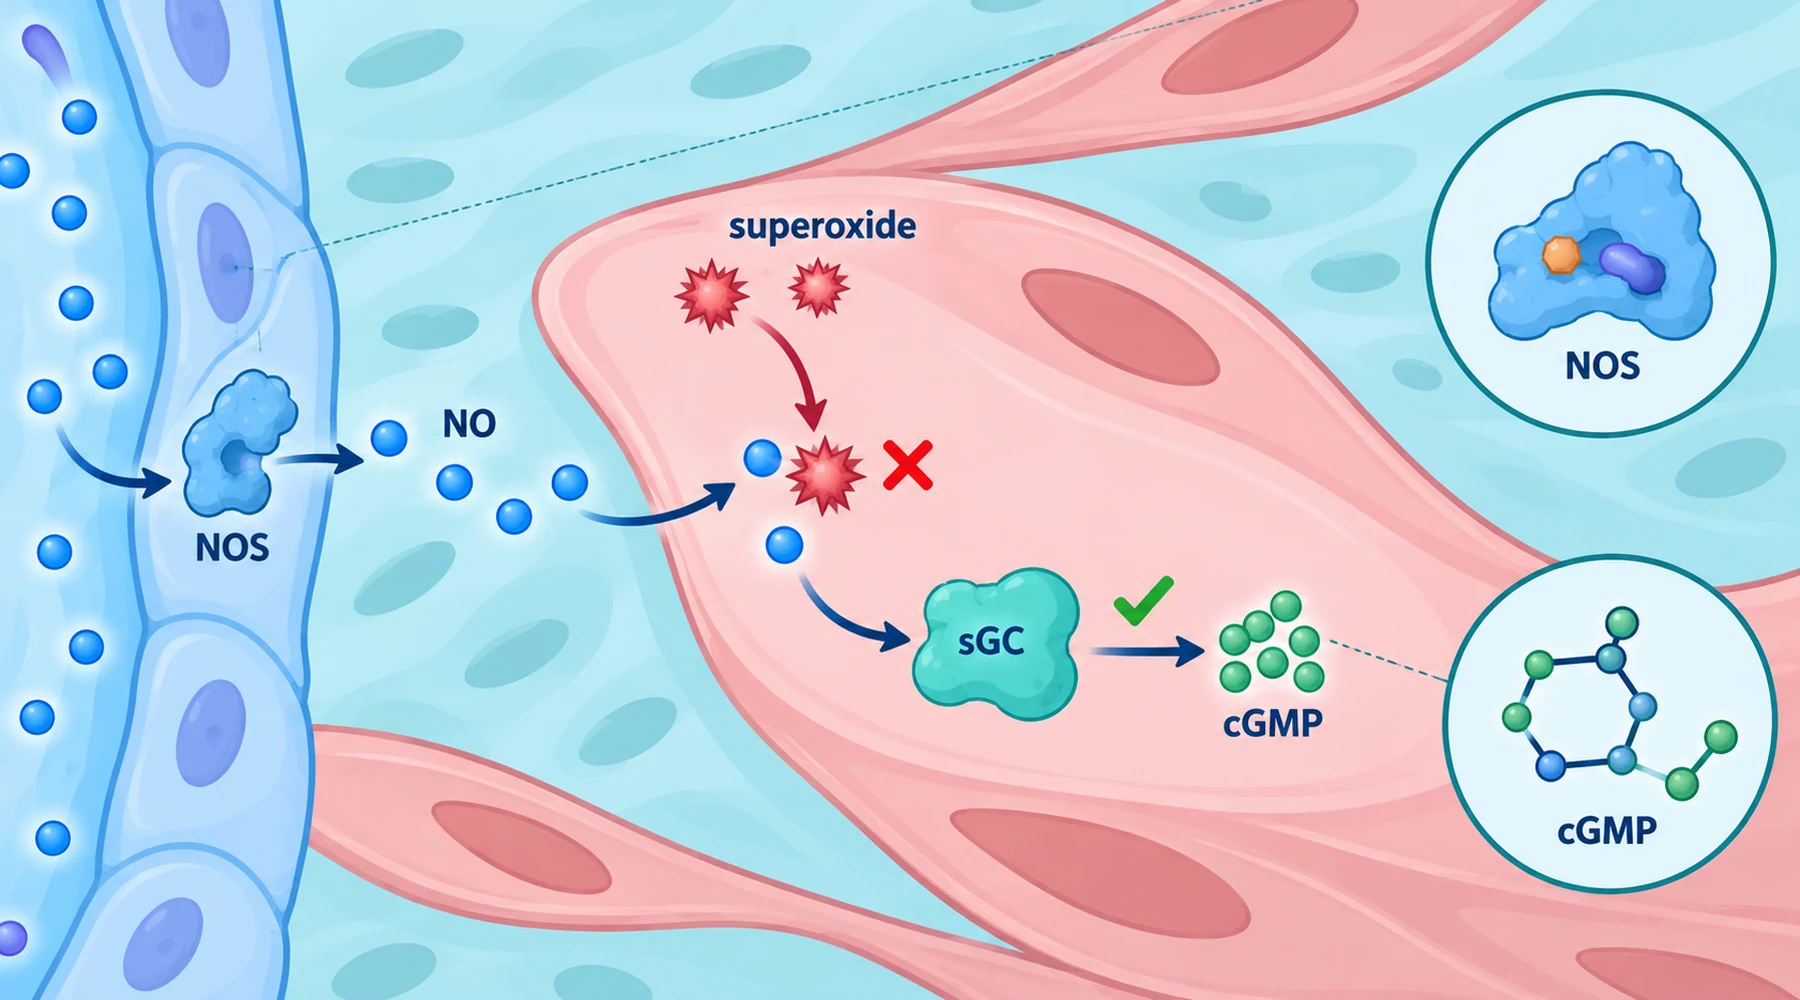
У стінці кровоносної судини стандартна послідовність має такий вигляд. Стимул діє на ендотеліальну клітину. Ендотеліальна синтаза оксиду азоту, яку називають eNOS або NOS3, утворює невеликий імпульс оксиду азоту. Газ дифундує в сусідню гладеньком’язову клітину, зв’язується з гемом розчинної гуанілатциклази, залізо якого перебуває у відновленому стані, і прискорює перетворення GTP на циклічний GMP. Циклічний GMP активує протеїнкіназу G, змінюється регуляція кальцію, і м’яз розслаблюється.
Є й другий ланцюг, який варто розглядати окремо. Під час інфекції або впливу цитокінів клітини транскрибують ген іншого ферменту — індуцибельної синтази оксиду азоту, або iNOS, яку також називають NOS2. Вона створює більші й триваліші потоки оксиду азоту, ніж eNOS. Третя ізоформа, нейрональна NOS, або nNOS, належить до ще іншого контексту. Коли в статті йдеться про синтазу оксиду азоту без уточнення ізоформи, зупиніться й перевірте, яку саме вимірювали. Огляд того, як метиленовий синій переносить електрони, наголошує на тому самому щодо окисно-відновних мішеней загалом: система перенесення сама по собі нічого не робить, а результат визначають партнери на обох її кінцях.
Виміряний рівень циклічного GMP також є інтегральним показником, а не прямим аналізом активності ферменту. Його рівень відображає синтез циклазою за вирахуванням розщеплення фосфодіестеразами, особливо PDE5 у гладеньких м’язах судин. Отже, зниження циклічного GMP означає, що до детектора дійшло менше сигналу. Саме по собі воно не вказує, яка ланка дала збій.
Ланка 1: утворюється менше ферменту iNOS
У макрофагах мишей, стимульованих бактеріальним ліпополісахаридом, інтерфероном гамма або обома чинниками, метиленовий синій запобігав очікуваному підвищенню рівня білка iNOS і значно знижував рівень матричної РНК iNOS в експериментах із транскрипцією в макрофагах. Особливо показовим є те, що не змінилося. Деградація інгібітора I каппа B альфа, фосфорилювання NF каппа B і STAT1 та переміщення цих факторів у ядро залишалися переважно незмінними. Зменшилося їхнє зв’язування з ДНК, що підтвердила імунопреципітація хроматину: вона показала зниження зв’язування з промотором iNOS.
Це вплив на регуляцію генів, який передує зміні кількості ферменту, а не негайне блокування вже наявного ферменту. Він належить до запальної сигналізації, у якій фактори транскрипції мають зв’язатися з промотором, перш ніж з’явиться білок. Цей результат нічого прямо не говорить про конститутивну eNOS у судині в стані спокою, і описувати його слід саме в цих межах.
Ланка 2: наявний фермент NOS працює повільніше
Дослідження на щурах перевіряло інший рівень. Самцям щурів у свідомості внутрішньовенно вводили ліпополісахарид, а через три години — фізіологічний розчин або метиленовий синій у дозі 3 mg на kg внутрішньовенно. Активність синтази оксиду азоту в медіобазальному гіпоталамусі вимірювали за перетворенням міченого аргініну на цитрулін у дослідженні активності NOS у гіпоталамусі. Уже стрес разом із фізіологічним розчином індукував певну кальційнезалежну активність, а ліпополісахарид підвищував її приблизно до рівня, що в десять разів перевищував контрольний. Метиленовий синій усував обидві індуковані складові. Кальційзалежна конститутивна активність у цій тканині за цієї дози й у цій часовій точці не змінювалася.
Читайте цей результат буквально: за цих умов виміряна активність типу iNOS була пригнічена. Це не вимірювання експресії генів і не доказ незмінної вибірковості щодо iNOS порівняно з eNOS або nNOS. Робота з очищеним ферментом підкреслює потребу в обережності. У прямих аналізах очищеної синтази оксиду азоту метиленовий синій повністю блокував утворення цитруліну за концентрації 30 мікромолярів; концентрація напівмаксимального пригнічення становила приблизно 5.3 мікромоляра без супероксиддисмутази та 9.2 мікромоляра з нею, як повідомлено в порівняльному дослідженні очищеної NOS і гуанілатциклази. Окреме дослідження очищеної nNOS вказало на участь окиснення гему, зв’язаного з ферментом. Практичний висновок полягає в тому, що пряме пригнічення NOS справді відбувається в ізольованих системах, але результат для гіпоталамуса не можна поширювати на загальне твердження, ніби метиленовий синій ніде не впливає на всі конститутивні NOS.
Ланка 3: оксид азоту втрачається, не досягнувши мішені
Найчіткішу демонстрацію того, що зниження циклічного GMP можна пояснити не лише блокуванням ферменту, отримано в культивованих гладеньком’язових клітинах легеневої артерії кроля. Схема досліду повністю оминала ендогенну NOS: донори оксиду азоту додавали безпосередньо, а потім перевіряли, чи метиленовий синій усе одно пригнічує відповідь циклічного GMP, у дослідженні супероксиду в гладеньких м’язах судин.
Три донори випробували в діапазоні від 1 до 100 мікромолярів: S-нітрозо-L-цистеїн, нітропрусид натрію та стабільний дезамінований аналог під назвою MPANO. Усі вони підвищували рівень циклічного GMP приблизно від 1.5 до 12 разів. Метиленовий синій за концентрації 10 мікромолярів пригнічував відповідь на перші два донори на 51–100 відсотків, а відповідь на MPANO залишав незмінною. Якби метиленовий синій просто блокував каталітичний центр циклази, таку вибірковість щодо донорів було б важко пояснити, адже всі три діють через той самий фермент на наступному етапі.
Далі три контрольні досліди пов’язали цей механізм із супероксидом. По-перше, утворення позаклітинного супероксиду за допомогою ксантину та ксантиноксидази відтворювало ту саму картину: відповідь на CYSNO і нітропрусид блокувалася, а на MPANO — зберігалася. По-друге, метиленовий синій спричиняв залежне від дози й часу утворення супероксиду гладеньком’язовими клітинами, яке вимірювали за відновленням цитохрому c. По-третє, супероксиддисмутаза повністю запобігала пригніченню, тоді як каталаза — ні. Це вказує на супероксид, а не перекис водню, як на безпосередній чинник у цій експериментальній системі.
Варіант експерименту зі спільним культивуванням варто описати, оскільки він показує, де саме виникає ефект. Ендотеліальні клітини на покривних скельцях короткочасно культивували разом із гладеньком’язовими клітинами, тож ендотеліальний фактор, що вивільнявся за базальних умов, підвищував рівень циклічного GMP у гладеньких м’язах від трьох до восьми разів. Попередня обробка метиленовим синім будь-якої з двох клітинних популяцій зменшувала цей сигнал, а супероксиддисмутаза частково усувала наслідки попередньої обробки ендотелію. Інакше кажучи, метиленовому синьому взагалі не обов’язково діяти всередині гладеньком’язової клітини-детектора. Він може послаблювати сигнал, усуваючи сигнальну молекулу на шляху до мішені. Посібник із читання досліджень метиленового синього подає це як загальне правило: перш ніж називати молекулярну мішень, укажіть компартмент, у якому відбулося втручання.
Називати це пригніченням NOS було б неправильно. Для дії донорів етап за участю синтази не був потрібний, проте сигнал усе одно знижувався.
Ланка 4: сам детектор реагує слабше
Прямий вплив на розчинну гуанілатциклазу існує, але концентрації мають значення. У згаданому вище порівнянні очищених ферментів для напівмаксимального пригнічення циклази, стимульованої оксидом азоту, знадобилося близько 60 мікромолярів метиленового синього, тоді як для NOS цей показник становив приблизно від 5 до 9 мікромолярів. Навіть 1 мілімоляр забезпечував лише часткове максимальне блокування. Це приблизно шести-одинадцятикратна різниця. Тому зниження циклічного GMP у клітинному експерименті за низьких мікромолярних концентрацій не можна називати вибірковим пригніченням циклази лише на підставі значення циклічного GMP.
Пізніше окисно-відновне дослідження додало ще одне застереження: метиленовий синій деактивував циклазу, активовану оксидом азоту, за механізмом, відмінним від простого окиснення заліза гему киснем повітря. Отже, робота детектора може порушуватися, але хімічний механізм остаточно не з’ясований, а різниця в концентраціях означає, що за впливу низьких мікромолярних концентрацій насамперед варто виключити ефекти супероксиду та NOS. Тут також потрібний контроль фосфодіестераз. Якщо розщеплення не вимірювали й не блокували, зменшене накопичення циклічного GMP може відповідати меншому синтезу, швидшому розщепленню або обом процесам.
Чому це не зводиться до одного твердження про артеріальний тиск
Кожну ланку встановлено в іншій системі. Транскрипція в макрофагах — не те саме, що активність ферменту в гіпоталамусі. Активність у гіпоталамусі після введення ліпополісахариду — не те саме, що тонус, підтримуваний ендотелієм у стані спокою. Ендотеліальний фактор, що вивільняється за базальних умов у спільній культурі, — не те саме, що вазодилатація, стимульована агоністом. Культивовані клітини легеневої артерії за концентрації метиленового синього 10 мікромолярів — не кровообіг людини. Зводити все це до твердження на кшталт «метиленовий синій підвищує артеріальний тиск, блокуючи оксид азоту» означає відкидати саме ті відмінності, для збереження яких і були розроблені контрольні досліди.
Три перевірки допомагають зберегти точність викладу. По-перше, назвіть ізоформу: eNOS — для судинного тонусу в стані спокою, iNOS — для індукованого запального потоку, nNOS — для нейрональних контекстів і деяких досліджень очищеного ферменту. По-друге, назвіть спосіб надходження сигналу оксиду азоту: ендогенний синтез, базальне вивільнення ендотелієм або конкретний донор, як-от CYSNO, нітропрусид чи MPANO, адже стабільний донор був стійким до дії метиленового синього, а лабільні — ні. По-третє, зазначте концентрацію й спосіб усунення ефекту: усунення ефекту супероксиддисмутазою вказує на участь супероксиду, відсутність ефекту каталази свідчить проти ролі перекису водню в цій експериментальній системі, відтворення ефекту ксантиноксидазою показує достатність такого механізму, а аналізи очищених ферментів відокремлюють прямий вплив на каталіз від втрат сигналу під час його перенесення.
Стислий підсумок такий. Метиленовий синій доцільніше розглядати як чинник, що впливає на кілька ділянок сигналізації від оксиду азоту до циклічного GMP, а не як вибірковий блокатор циклази. Залежно від експериментальної системи й концентрації він може зменшувати зв’язування факторів транскрипції з промотором iNOS, безпосередньо пригнічувати ферменти NOS, знижувати доступність оксиду азоту через утворення супероксиду та порушувати роботу циклази, активованої оксидом азоту. Матеріали про роль сигналізації циклічного GMP у судинних дослідженнях і порівняння донорів оксиду азоту, які використовують у клітинних аналізах докладніше розглядають по одному з цих напрямів, а матеріал про методи відокремлення окисно-відновних ефектів від впливу на ферменти пояснює, чому поєднання супероксиддисмутази, каталази та контрольного досліду зі стабільним донором так часто трапляється в цій літературі.
Низький рівень циклічного GMP після впливу метиленового синього вказує на розрив ланцюга. Лише контрольні досліди показують, яка саме ланка розірвалася.