
Članek
Metilensko modrilo za barvanje DNA in RNA: uporaba v gelih in na membranah
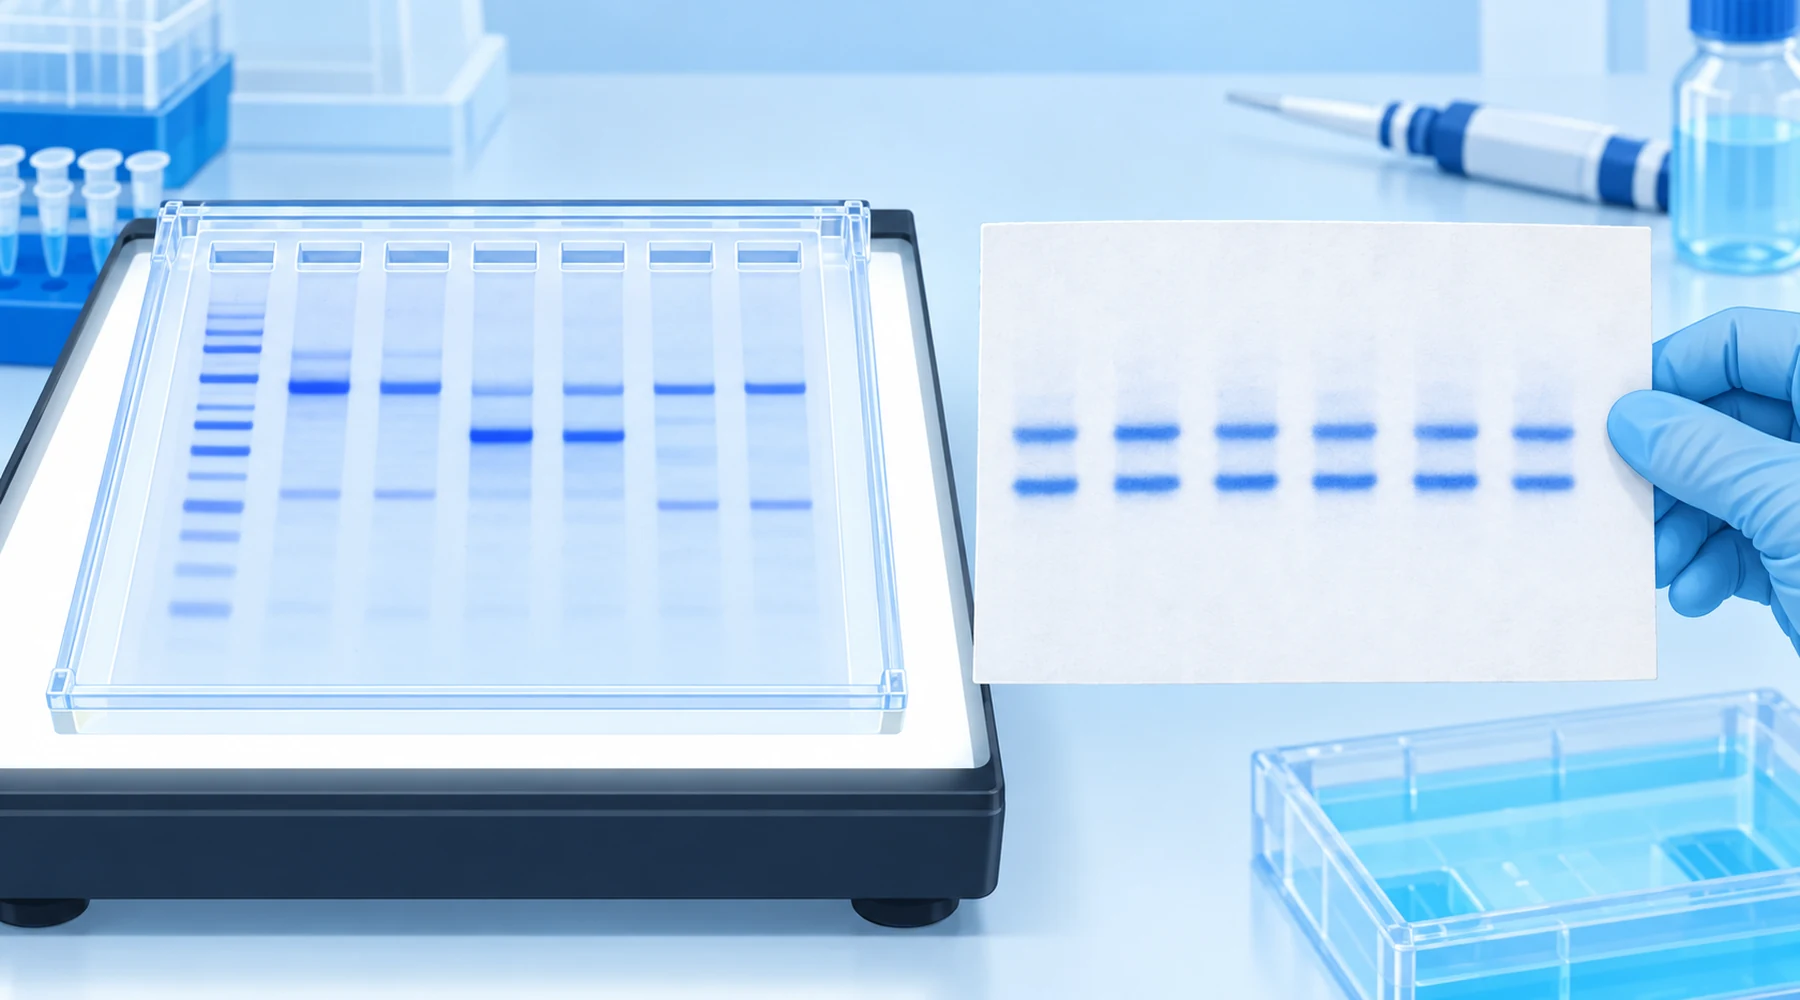
Študent izvede elektroforezo v agaroznem gelu, ga obarva z metilenskim modrilom in ne vidi ničesar tam, kjer je pričakoval izrazit pas. Na sosednjem delovnem mestu podoktorski raziskovalec z modrilom iz iste stekleničke obarva membrano za prenos Northern in v treh minutah dobi ostre ribosomske pasove. Študent sklepa, da gel ni uspel. Gel ni bil neuspešen. Nalogi sta bili različni, isto barvilo pa pri vsaki deluje z drugačno občutljivostjo, drugačnim ozadjem in drugačnimi pravili za nadaljnje korake.
Barvanje DNA in RNA z metilenskim modrilom temelji na isti kemiji, vendar nima istega namena. V gelu barvilo pokaže, koliko nukleinske kisline je v poroznem matriksu. Na membrani pokaže, ali je prenos uspel in ali je bil nanos vzorcev v steze enakomeren. Ko je ta razlika jasna, postanejo razumljivi tudi protokoli, meje zaznavanja in omejitve združljivosti.
Kratek odgovor
Metilensko modrilo je planarno kationsko barvilo, ki se na nukleinske kisline veže nekovalentno in reverzibilno, s kombinacijo elektrostatskega privlaka do fosfatnih skupin, interkalacije med bazne pare in vezave v mali žleb. Prav ta reverzibilnost je bistvena. Pasove je mogoče obarvati, jih opazovati v vidni svetlobi in dokumentirati, nato pa razbarvati ali očistiti za kloniranje, hibridizacijo ali ponovno hibridizacijo s sondo.
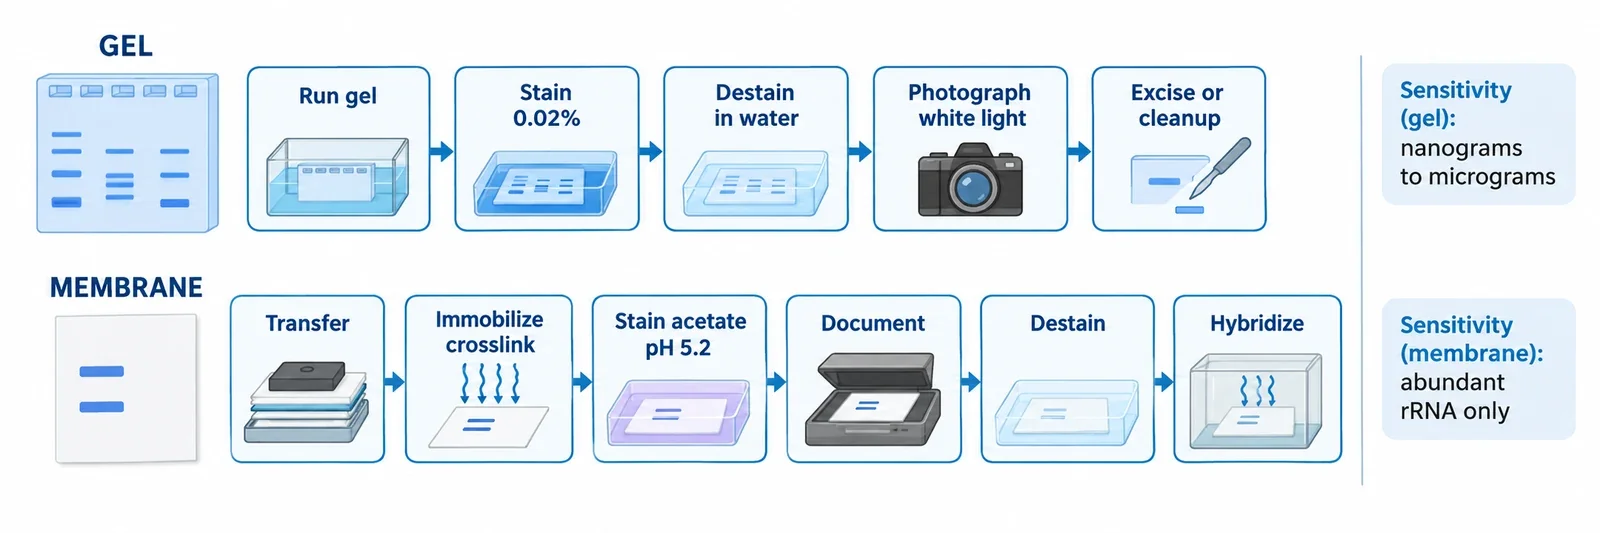
Za barvanje dvoverižne DNA v agaroznem gelu z metilenskim modrilom standardni hitri postopek uporablja 0.02 odstotka w/v (200 mikrogramov na mL) v vodi, približno 15 minut barvanja in nato približno 15 minut razbarvanja v vodi, z opazovanjem na osvetljevalniku z belo svetlobo. Za membrane klasični postopek za prenos Northern uporablja 0.02 do 0.04 odstotka barvila v natrijevem acetatu pri pH okoli 5.2, nekaj minut barvanja po prenosu in imobilizaciji, nato spiranje z vodo in popolno razbarvanje pred hibridizacijo. Občutljivost je skromna: v dobrih pogojih od nekaj deset do nekaj sto nanogramov na pas v gelu, konservativni priročniki pa navajajo 0.5 do 1 mikrogram. To je za več velikostnih redov več kot pri etidijevem bromidu in barvilih SYBR. Za membrane ni uporabne enotne meje zaznavanja posameznega transkripta, ker barvilo prikazuje predvsem obilno ribosomsko RNA in celotno količino nanesenega materiala. V nobenem od teh postopkov ne uporabljajte komercialne raztopine prehranskega dopolnila kot nadomestila. Validirane metode predpostavljajo barvilo analitske čistosti, določene pufre in delo brez RNaz, kadar je prisotna RNA.
Kako deluje vezava in kje lahko zavede
Uporaben model ima tri dele. Prvič, pozitivno nabit obročni sistem privlači negativno nabito fosfatno ogrodje. Spektroskopske raziskave kažejo, da pri nizki koncentraciji soli prevladuje ta elektrostatski prispevek, medtem ko modeliranje in molekulska dinamika interkalacijo ter vezavo v mali žleb opredeljujeta kot stabilna načina vezave na dvoverižno DNA, kot je povzeto v spektroskopski raziskavi vezave metilenskega modrila na DNA. Drugič, obstaja določena prednostna vezava na GC: modeliranje daje prednost zaporednima korakoma CpG in GpC, poskusi pa poročajo o prednostni vezavi na duplekse, bogate z GC, v raziskavi o prednostnih mestih interkalacije metilenskega modrila, vendar se vežejo tudi dupleksi AT. Rutinsko barvanje ni specifično za zaporedje. Tretjič, na enoverižno DNA in RNA se barvilo veže predvsem prek elektrostatskih interakcij ter zlaganja z dostopnimi bazami in dupleksnimi območji, zato je intenzivnost barvanja odvisna od dolžine, zaporedja in sekundarne strukture.
Iz tega sledita dve posledici. Ker je vezava nekovalentna, se barvilo izpira. Pasovi v poliakrilamidnih gelih hitro zbledijo, če jih ne fiksiramo namenoma; posebna različica s trajno fiksacijo obstaja prav zato, ker je običajno barvanje začasno, kot opisujeta Soto in Draper za gele PAGE. Ker je barvilo fotosenzibilizator, lahko dolgotrajno močno osvetljevanje obarvane DNA ob prisotnosti kisika oksidira gvanin in sčasoma povzroči prelome v posameznih verigah; mehanizem je podrobno opisan v raziskavi o oksidaciji gvanina, fotosenzibilizirani z metilenskim modrilom. Kratko opazovanje v beli svetlobi se izogne dobro znanim poškodbam zaradi UV pri klasičnih postopkih z etidijevim bromidom, kar je resnična prednost pri preparativnem pridobivanju DNA. Vidna svetloba je nežnejša, ni pa neškodljiva. Če boste DNA klonirali, naj bo osvetljevanje kratko. Za širšo fotokemijsko razlago tega opozorila glejte dve poti v fotokemiji metilenskega modrila. Za redoks par in nabojna stanja, ki pojasnjujejo, zakaj se oksidirana oblika veže, reducirana pa ne, glejte kemijo strukture in lastnosti metilenskega modrila.
Prva naloga: barvanje v gelih
Barvanje gela odgovarja na eno vprašanje: ali je v tem pasu dovolj nukleinske kisline, da jo vidimo s prostim očesom. Najbolje opisan primer je dvoverižna DNA v agarozi. Izvirna metoda barvanja gelov z metilenskim modrilom, ki so jo razvili Flores in sodelavci, je validirala hitri protokol z 0.02 odstotka barvila v 1-odstotni agarozi ter pokazala uspešno nadaljnje pridobivanje in kloniranje DNA. Isti dobaviteljev protokol je objavljen na strani izdelka metilensko modrilo podjetja IBI Scientific, kjer sta drug ob drugem navedena postopek za membrane z 0.04 odstotka barvila in hitra različica za gele.
Praktični postopek:
- Elektroforezo izvedite kot običajno. Barvajte po elektroforezi, ne med njo, razen če sta bila prenos ali ločljivost validirana za spremenjeno metodo.
- Gel potopite v 0.02 odstotka w/v metilenskega modrila v destilirani vodi in ga ob nežnem stresanju barvajte približno 15 minut.
- Razbarvajte z več menjavami vode, skupno približno 15 minut, dokler se obarvanost ozadja matriksa ne zmanjša in pasovi ne izstopijo.
- Gel takoj fotografirajte na osvetljevalniku z belo svetlobo.
Agaroza in poliakrilamid se obnašata različno. Agaroza zadržuje barvilo v matriksu, zato je razbarvanje počasnejši korak. Tanki poliakrilamidni geli se hitro obarvajo, a tudi hitro izgubijo barvilo, kar olajša preparativno izrezovanje, oteži pa arhiviranje rezultatov. Sintetične oligonukleotide v poliakrilamidu je mogoče locirati z istim postopkom z 0.02 odstotka barvila v 20 do 30 minutah z večkratnim spiranjem z vodo, po uveljavljenih metodah PAGE iz zbirke Current Protocols. Poročali so tudi o zelo razredčenih različicah s približno 0.0002 odstotka barvila v razredčenem TBE za preparativne oligonukleotide, ki trajajo več ur, vendar je dokazna podlaga šibkejša.
Razlika med DNA in RNA je pomembna. Dvoverižna DNA omogoča najmočnejšo strukturno opredeljeno vezavo. RNA in enoverižna DNA se obarvata, vendar šibkeje in manj predvidljivo. Pri agaroznih gelih z RNA in formaldehidom večina laboratorijev preskoči barvanje z modrilom v gelu in RNA najprej prenese na membrano ter jo obarva tam. S tem šibek signal v gelu zamenja za jasnejši signal na membrani in hkrati dobi zapis o nanosu vzorcev.
Druga naloga: barvanje na membranah
Barvanje membrane odgovarja na drugačno vprašanje: ali je prenos uspel in ali so steze primerljive. Klasična uporaba je reverzibilno barvanje po Herrinu in Schmidtu za prenos Northern, prvotno z 0.04 odstotka barvila v 50 mM natrijevem acetatu pri pH 5.0 za 2 do 3 minute, nato s spiranjem z vodo; barvilo je pred hibridizacijo mogoče odstraniti z razredčenim SDS v SSPE.
Pogosto uporabljena sodobna različica poteka takole:
- RNA ali denaturirano DNA prenesite na najlon ali nitrocelulozo, nato jo imobilizirajte z UV-zamreženjem ali segrevanjem, da se vzorec med barvanjem ne izgubi.
- Neobvezno, a pogosto: membrano približno 15 minut namakajte v 5-odstotni ocetni kislini.
- Barvajte 5 do 10 minut v 0.02 do 0.04 odstotka metilenskega modrila v 0.3 do 0.5 M natrijevem acetatu pri pH okoli 5.2.
- Spirajte in razbarvajte v vodi 5 do 15 minut, dokumentirajte, nato pred hibridizacijo odstranite preostalo barvilo.
Pri prenosu Northern prevladuje pozitivno nabit najlon. Tudi nitroceluloza je primerna za isti postopek z ocetno kislino in acetatom. Posnetek se uporablja za potrditev prenosa, primerjavo pasov 28S in 18S (ali 23S in 16S pri bakterijski RNA), označevanje lestvic in standardov ter za okvirni zapis za normalizacijo glede na skupno RNA. Objavljene metode prenosa Northern kvantificirajo obarvane ribosomske pasove za preverjanje nanosa vzorcev, vključno z raziskavo na področju mlekarstva, ki je uporabila ribosomske pasove, obarvane z metilenskim modrilom, za normalizacijo. Na enak način je mogoče prikazati membrane za prenos Southern, vendar je barvilo veliko bolj uveljavljeno za preverjanje nanosa in prenosa pri metodi Northern. Poleg tega se DNA pri metodi Southern pred prenosom denaturira, zato podatkov o občutljivosti v gelih ni mogoče neposredno prenesti na membrane.
Meje zaznavanja in ozadje: kje modrilo zaostaja
Spodnja primerjava je namenoma približna. Učinkovitost barvanja je odvisna od odstotka gela, širine pasu, optike in doslednosti pri razbarvanju. Vsako številko obravnavajte kot velikostni red, ne kot specifikacijo.
| Barvilo in format | Približna meja zaznavanja na pas | Razlaga |
|---|---|---|
| Metilensko modrilo, dsDNA v agarozi | 40 do 250 ng pri optimizaciji; 0.5 do 1 mikrogram po konservativni oceni | Dovolj za preparativne nanose in učne gele. Šibko za pasove s sledovi nukleinskih kislin. |
| Metilensko modrilo, kratka ssDNA ali RNA ali oligonukleotidi v PAGE | Približno 0.1 do 0.5 mikrograma | Odvisno od dolžine in strukture. Ni univerzalne meje. |
| Etidijev bromid, dsDNA v agarozi | Približno 1 do 10 ng | V primerjavi Floresa približno štirikrat občutljivejši od optimiziranega barvanja z modrilom. Zahteva UV. |
| SYBR Green I, dsDNA | Približno 60 pg | Potrebno je fluorescenčno slikanje. |
| SYBR Gold, DNA in RNA | Približno 25 pg | V več formatih več kot desetkrat občutljivejši od etidijevega bromida. |
| Barvanje s srebrom, nukleinske kisline v PAGE | Približno 0.3 do 0.9 ng; poročali so o 100 pg RNA pri optimiziranem zaporedju barvanja najprej z modrilom in nato s srebrom | Zelo občutljivo, vendar kemično zahtevno in neprimerno za pridobivanje nukleinskih kislin. |
| Toluidinsko modrilo, RNA in oligonukleotidi v PAGE | Običajne delovne količine so v stotinah ng, dokumentirano približno 250 ng | Vidna svetloba kot pri metilenskem modrilu, vendar brez standardizirane meje, primerljive s specifikacijami SYBR. |
Nadzor ozadja odloča o tem, ali je skromen signal uporaben. Prosto barvilo je intenzivno obarvano, zato kontrast dosežemo z odstranjevanjem nevezanega barvila, ne da bi odstranili vezano. Bolj koncentrirano barvilo redko poveča občutljivost. Predvsem podaljša čas razbarvanja. Na točno določenem gelu, membrani in s konkretno kamero preverite niz razredčitev ter uporabljajte le območje, v katerem integrirana gostota ostaja sorazmerna z vhodno količino. Metilensko modrilo omogoča semikvantitativno normalizacijo nanosa vzorcev. Ne gre za kvantitativni test z velikim dinamičnim razponom, saj se kapaciteta membrane, učinkovitost prenosa, nasičenost in razbarvanje razlikujejo med stezami.
Omejitve združljivosti: kaj ostane uporabno po barvanju
Kloniranje po barvanju z modrilom je dokazano. Flores in sodelavci so izrezali obarvane pasove iz agaroznega gela, pridobili DNA ter izvedli ligacijo in transformacijo, pri čemer so poročali o uspešnejšem kloniranju kot po barvanju z etidijevim bromidom in osvetljevanju z UV. Verjetni razlog je manj fotopoškodb, ne pa koristni učinek samega barvila. Izpostavljenost beli svetlobi naj bo kratka, pridobljeno DNA pa očistite po običajnem postopku ekstrakcije iz gela.
Za PCR in sekvenciranje je dokazov manj. Preostalo barvilo se veže na nukleinske kisline, zato pred encimskimi koraki vzorec razbarvajte in očistite. Pričakovati je, da bo ustrezno prečiščena DNA iz gela, obarvanega z modrilom, uporabna, vendar toleranca za neposredni prenos ostankov barvila pri različnih polimerazah in kemijah sekvenciranja ni dobro kvantificirana. Ne predpostavljajte je.
Hibridizacija na membrani je združljiva z barvanjem, če dosledno upoštevate vrstni red: prenos, imobilizacija, barvanje, dokumentiranje, razbarvanje, hibridizacija. To zaporedje sta zasnovala Herrin in Schmidt. Barvanje pred prenosom ali izpuščanje razbarvanja pomeni drugačno metodo, ki zahteva lastno validacijo. Po odstranitvi barvila običajno odstranjevanje sond in ponovna hibridizacija potekata normalno. Za barvanje na ravni celic z isto skupino barvil in razlago, zakaj postopkov za fiksirane razmaze ni mogoče prenesti na metode z živimi celicami, glejte atlas barvanja za mikroskopijo.
Izrezovanje pasov je primerno za preparativno agarozo in oligonukleotide v PAGE, locirane z modrilom, če se izognete različici s trajno fiksacijo. Elektroelucija po razbarvanju je za reverzibilno vezavno barvilo kemijsko smiselna, vendar je kontroliranih podatkov o izkoristku, specifičnih za metilensko modrilo, malo. Po eluciji vzorec razsolite ali oborite.
Ponavljajoče se težave
Šibki pasovi v gelu običajno pomenijo premajhno maso za kolorimetrično barvanje, zlasti pri kratkih enoverižnih tarčah ali RNA. Nanesite več vzorca, uporabite sveže barvilo, pred zvišanjem koncentracije podaljšajte barvanje in razbarvanje ustavite prej. Povsem moder gel brez kontrasta običajno pomeni prekomerno barvanje ali premalo menjav vode. Bledenje pasov v PAGE je pričakovana posledica kemije, ne neuspešnega barvanja. Fotografirajte hitro. Neenakomerno ozadje membrane kaže na gube, mehurčke, prstne odtise, neenakomerno stresanje ali neenakomeren prenos. Brez hibridizacijske kontrole tega ne razlagajte kot neenak nanos vzorcev. Razmazan, šibek ribosomski vzorec lahko pomeni razgradnjo, lahko pa tudi nepopoln prenos, premalo skupne RNA (običajne steze vsebujejo od nekaj do več deset mikrogramov) ali pretirano razbarvanje. Barvilo prikazuje obilno ribosomsko RNA. Ne prikazuje specifičnega transkripta. To je naloga sonde.
Varnost in ravnanje brez pretiranih trditev
Z metilenskim modrilom je lažje ravnati kot z etidijevim bromidom, vendar ni neškodljivo. Aktualni varnostni list MilliporeSigma uvršča barvilo v kategorijo 4 akutne oralne strupenosti, škodljivo pri zaužitju, in predpisuje odstranjevanje po odobreni poti za odpadke v skladu z varnostnim listom Sigma-Aldrich za metilensko modrilo. Etidijev bromid ima strožja opozorila glede genotoksičnosti, vključno s sumom na učinke na zarodne celice v njegovem varnostnem listu Sigma-Aldrich za etidijev bromid. Njegove gele in raztopine se običajno zbira ločeno kot nevarne kemične odpadke, kot je navedeno v vodniku Thermo Fisher po barvilih za nukleinske kisline. Pri obeh upoštevajte varnostni list in pravila ustanove. Suho barvilo hranite tesno zaprto in na suhem, delovno raztopino ponovno uporabite le, kolikor to dopušča protokol, obarvane membrane hranite suhe med listi filtrirnega papirja, gele pa fotografirajte, preden pasovi zaradi difuzije izginejo.
Zapomnite si praktično pravilo. Geli preverjajo vidnost pri velikem nanosu v beli svetlobi. Membrane preverjajo prenos in nanos vzorcev, preden sonda opravi občutljivo zaznavanje. Eno barvilo služi obema namenoma, s skromno občutljivostjo, reverzibilno vezavo in strogim vrstnim redom korakov.