
Artykuł
Pomiar reaktywnych form tlenu w eksperymentach z błękitem metylenowym
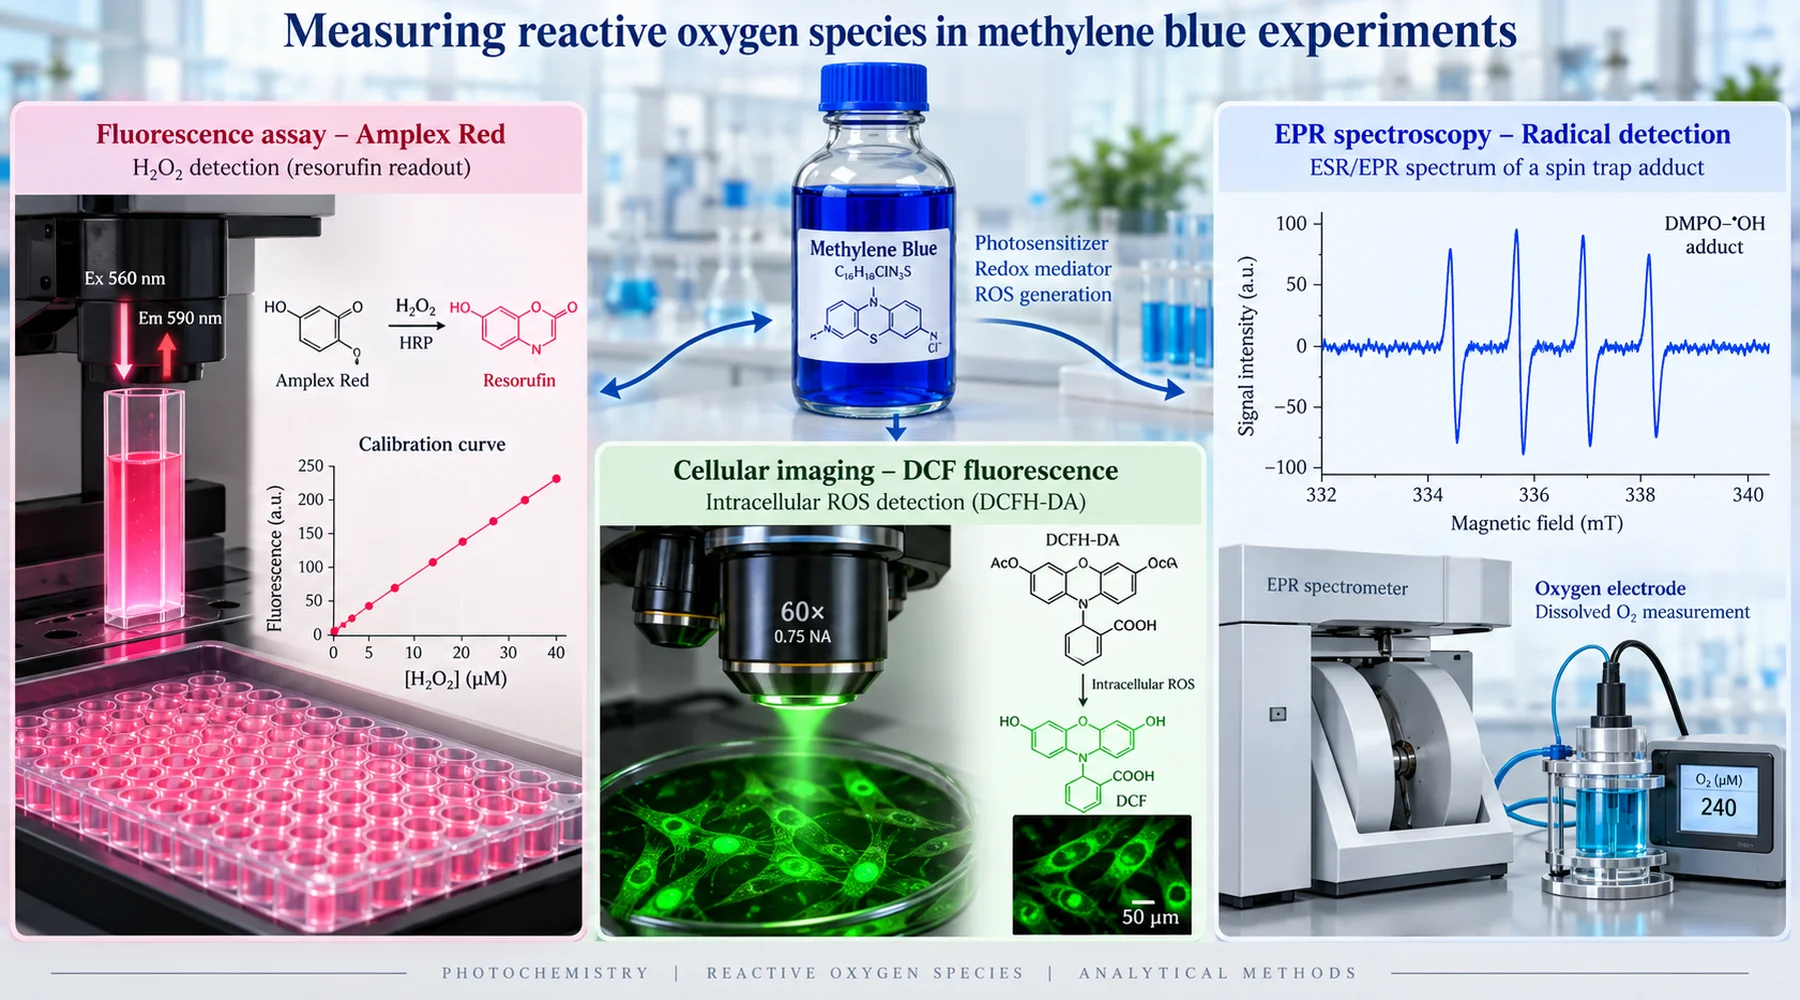
Dwa laboratoria prowadzą eksperymenty, które każde z nich nazywa badaniem działania przeciwutleniającego błękitu metylenowego. Jedno donosi, że barwnik ogranicza powstawanie reaktywnych form tlenu. Drugie — że je wytwarza. Oba przedstawiają wyraźne krzywe zależności odpowiedzi od dawki. Oba działają w dobrej wierze. Różnica nie wynika z oszustwa ani niekompetencji. Polega na tym, że obie grupy mierzyły różne zjawiska przy różnym oświetleniu, używając sond odpowiadających na różne pytania, a następnie opisały obie odpowiedzi tym samym skrótem: ROS.
Błękit metylenowy jest cząsteczką trudną do precyzyjnego badania, ponieważ uczestniczy w reakcjach chemicznych, które ma pomagać obserwować. W ciemności przenosi elektrony między donorami a akceptorami i wraca do swojej wyjściowej postaci, gotowy do kolejnego cyklu. Pod wpływem światła staje się fotosensybilizatorem, osiągając wzbudzony stan trypletowy, z którego może przekazywać energię tlenowi, wytwarzając tlen singletowy, lub przenosić elektrony, tworząc rodniki i nadtlenek wodoru. Każda sonda wprowadzona do takiego układu może zostać utleniona, zredukowana, odbarwiona lub optycznie zamaskowana przez sam barwnik. Dlatego pierwsze pytanie dotyczące dowolnego odczytu ROS nigdy nie brzmi: jaka jest wartość? Brzmi ono: co test rzeczywiście wykrywa i jak barwnik wpływa na test?
Amplex Red: skalibrowany test nadtlenku wodoru
Połączenie błękitu metylenowego z Amplex Red jest najbardziej wiarygodnym zestawieniem w tej literaturze, jeśli układ zostanie prawidłowo przygotowany. Chemia reakcji jest swoista: peroksydaza chrzanowa wykorzystuje nadtlenek wodoru do utleniania substratu Amplex do fluorescencyjnego produktu, rezorufiny, przy stechiometrii wynoszącej w przybliżeniu jeden do jednego. Nadtlenek z próbki przekłada się na fluorescencję rejestrowaną przez detektor. Żadna inna klasyczna reaktywna forma tlenu nie napędza tej reakcji bezpośrednio.
Decydującą zaletą jest kalibracja. Staranny badacz analizuje wzorce o znanym stężeniu nadtlenku w tym samym buforze, przy tych samych stężeniach peroksydazy i substratu, tym samym czasie inkubacji oraz tych samych ustawieniach optycznych, a następnie odczytuje wyniki próbek względem uzyskanej krzywej. W badaniu izolowanych mitochondriów mózgu, stanowiącym podstawę tej metody, autorzy postąpili właśnie tak: na końcu każdej serii pomiarowej dodawali znane ilości nadtlenku, a wyniki podali jako szybkości w pikomolach na minutę na miligram białka, zamiast w arbitralnych jednostkach fluorescencji. To właśnie zamienia świecenie w pomiar.
Trzy szczegóły tego badania warto naśladować. Po pierwsze, autorzy zweryfikowali sygnał za pomocą katalazy, która rozkłada nadtlenek. Wzrost fluorescencji wywołany błękitem metylenowym zatrzymał się po dodaniu katalazy, potwierdzając, że sygnał pochodził od nadtlenku, a nie od artefaktu optycznego. Po drugie, bezpośrednio sprawdzili wpływ oświetlenia, przerywając wiązkę wzbudzającą migawką tak, aby próbki otrzymywały jedną ósmą zwykłej dawki światła; sygnał spadł zaledwie o dziewięć procent. Ponad dziewięćdziesiąt procent zgłoszonego przez nich nadtlenku powstawało niezależnie od światła używanego do pomiaru. Po trzecie, osobno zmierzyli usuwanie nadtlenku za pomocą elektrody i stwierdzili, że barwnik zarówno zwiększał jego wytwarzanie, jak i spowalniał usuwanie. Sonda wskazująca jedynie fluorescencję netto połączyłaby te dwa efekty w jeden.
Test nadal ma słabe punkty, a błękit metylenowy ujawnia kilka z nich. Barwnik absorbuje światło w szerokim zakresie czerwieni, w którym rezorufina emituje, więc przy wysokich stężeniach barwnika próbka może maskować własny sygnał wskutek efektów filtra wewnętrznego. Wzorce powinny zatem zawierać takie samo stężenie barwnika jak próbki. Amplex Red może też sam ulegać fotoutlenianiu, a jego produkt, rezorufina, może uczestniczyć w cyklach fotoredoks generujących anionorodnik ponadtlenkowy i nadtlenek, co ma ogromne znaczenie, gdy w eksperymencie oświetlany jest również fotosensybilizator. Praktycznym rozwiązaniem jest najpierw naświetlenie próbek z błękitem metylenowym, a następnie oznaczenie porcji próbek z odczynnikami Amplex w ciemności, zamiast jednoczesnego oświetlania barwnika i sondy. Wreszcie dysmutaza ponadtlenkowa nie tylko obniża sygnał Amplex: przekształcenie anionorodnika ponadtlenkowego w nadtlenek może go zwiększyć. Kontrola z SOD, w której fluorescencja wzrasta, nie jest nieudana. Wskazuje ona na anionorodnik ponadtlenkowy jako formę powstającą na wcześniejszym etapie szlaku.
DCFDA: nieswoisty wskaźnik utleniania
Połączenie błękitu metylenowego z DCFDA jest źródłem większości nieporozumień. DCFH-DA jest prekursorem wprowadzanym do komórek. Esterazy wewnątrz komórki odszczepiają jego grupy octanowe, pozostawiając niefluorescencyjny DCFH, którego utlenienie daje fluorescencyjny DCF. Lista czynników, które go utleniają, jest długa: rodniki hydroksylowe, produkty pośrednie reakcji peroksydazy i hemu, dwutlenek azotu, kwas podchlorawy oraz rodniki pochodzące od nadtlenoazotynu. Sam nadtlenek wodoru nie utlenia go bezpośrednio z szybkością użyteczną w pomiarze; fluorescencja zależna od nadtlenku zwykle wymaga udziału żelaza, białek hemowych lub reakcji z udziałem peroksydazy.
Krytyczna ocena, którą należałoby przywołać w każdej sekcji metod, pochodzi z analizy DCFH jako sondy przeprowadzonej przez Kalyanaramana i współpracowników, omówionej w badaniu mitochondriów mózgu, w którym z tego powodu odrzucono DCFDA. Wykazali oni, że barwnik reaguje powoli, z nieokreśloną stechiometrią, bez prawidłowej kalibracji i również ze związkami nienależącymi do ROS. Sonda wzmacnia też to, co mierzy: jednoelektronowe utlenienie DCFH wytwarza rodnik DCF, który reaguje z tlenem, tworząc anionorodnik ponadtlenkowy, a ten ulega dysmutacji do dodatkowego nadtlenku. Odczyt częściowo sam wytwarza reakcje chemiczne, o których informuje.
Nie oznacza to, że DCFDA jest bezużyteczny. Oznacza, że jest narzędziem przesiewowym, a nie metodą identyfikacji. Wzrost fluorescencji DCF oznacza nasilenie zależnego od utleniaczy utleniania sondy. Nie oznacza wzrostu ilości nadtlenku, a z pewnością nie oznacza wzrostu całkowitej ilości ROS — wielkości, której nie mierzy żadna pojedyncza sonda. Wcześniejsze badania błękitu metylenowego, oparte na utlenianiu DCF przy stężeniach przekraczających jeden mikromol na litr, wskazywały na działanie prooksydacyjne, podczas gdy w innych układach w tym samym okresie obserwowano ochronę przed śmiercią komórek wywołaną nadtlenkiem. Obie obserwacje mogą być prawdziwe dla tego samego barwnika w różnych warunkach redoks, a sam wynik DCF nie pozwala ustalić, który utleniacz odpowiadał za sygnał. Znaczenie wcześniejszego badania mitochondriów mózgu polega na tym, że zastąpiono w nim ten test przesiewowy skalibrowanym pomiarem nadtlenku i bezpośrednio wykazano obciążenie: nawet sto nanomoli barwnika na litr kilkakrotnie zwiększało uwalnianie nadtlenku przy każdym badanym substracie i w każdym badanym stanie oddechowym.
DCFDA kryje jeszcze jedną pułapkę charakterystyczną dla błękitu metylenowego. Barwnik ma intensywną barwę i jest aktywny w reakcjach redoks, może więc powodować zanik fluorescencji, wygaszać emisję lub utleniać sondę niezależnie od komórkowych ROS. Kontrola bezkomórkowa z barwnikiem i sondą, ale bez komórek, nie jest opcjonalnym dodatkiem. To eksperyment, który pozwala stwierdzić, czy barwnik oddziałuje z sondą.
Pułapkowanie spinowe i zużycie tlenu: tożsamość i strumień reakcji
O ile sondy fluorescencyjne informują, że pojawiło się coś zdolnego do wywołania utleniania, o tyle elektronowy rezonans spinowy z pułapkami spinowymi dostarcza informacji bliższej temu, czym to było. W klasycznym badaniu fotochemii błękitu metylenowego wykorzystano ESR do wykrycia rodnika askorbinianowego powstającego z udziałem barwnika, askorbinianu i światła, a następnie wykazano powstawanie nadtlenku w eksperymentach mierzących zużycie tlenu oraz katalizowane żelazem powstawanie rodników hydroksylowych w eksperymentach z pułapkowaniem spinowym. Każda technika odpowiadała na pytanie, na które pozostałe nie mogły odpowiedzieć: ESR pozwalał ustalić tożsamość rodnika, zużycie tlenu określało strumień reakcji niezależnie od jakiejkolwiek sondy fluorescencyjnej, a ich połączenie wykazało, że w tym samym oświetlanym układzie zachodziły zarówno szlaki z udziałem tlenu singletowego, jak i rodników.
Ten wynik z 1984 roku nadal brzmi jak ostrzeżenie. Przy oświetleniu i w obecności reduktora barwnik wytwarzał nadtlenek, a w obecności żelaza układ generował rodnik hydroksylowy, najbardziej reaktywną formę w tym zestawie. Autorzy powiązali to z obecnością askorbinianu w oku i zakwestionowali beztroskie stosowanie barwnika w okulistyce. Współcześni czytelnicy powinni zwrócić uwagę na warunki: światło plus reduktor plus żelazo. Usunięcie któregokolwiek z tych elementów osłabia lub eliminuje ten szlak.
Elektrody tlenowe uzasadniają swoją przydatność inaczej. Elektroda typu Clarka mierzy zużycie tlenu netto, co pozwala ustalić, że reakcje redoks napędzane przez barwnik zużywają tlen cząsteczkowy, i dostarcza danych kinetycznych, których nie może sfabrykować żaden artefakt fluorescencji. Nie identyfikuje jednak produktu. Powstawanie nadtlenku, anionorodnika ponadtlenkowego i wody oraz zanik tlenu singletowego wiążą się ze zużyciem tlenu. Strumień reakcji bez określenia tożsamości produktu jest równie niepełny jak tożsamość bez strumienia, dlatego rzetelne publikacje łączą pomiar elektrodą ze skalibrowanym testem nadtlenku lub pułapką spinową.
Dlaczego wyniki dotyczące działania przeciwutleniającego są sprzeczne
Zestawienie tych trzech rodzajów odczytów pokazuje, że pozorne sprzeczności w literaturze dotyczącej błękitu metylenowego wynikają z różnic metodologicznych oraz trzech faktów biologicznych.
Po pierwsze, barwnik jest jednocześnie przenośnikiem elektronów i źródłem nadtlenku. Odciągając elektrony od miejsc łańcucha oddechowego, w których tlen w przeciwnym razie przekształciłby się w anionorodnik ponadtlenkowy, może zmniejszać ilość jednej formy ROS, podczas gdy jego zredukowana postać bezpośrednio redukuje tlen do nadtlenku, zwiększając ilość innej. Laboratorium badające mitochondrialne reakcje redoks i rolę barwnika jako drogi obejściowej powinno więc spodziewać się odpowiedzi zależnych od sondy: w tej samej kuwecie odczyt czuły na anionorodnik ponadtlenkowy spada, a odczyt nadtlenku rośnie.
Po drugie, nadtlenek w małych dawkach jest sygnałem, a nie tylko czynnikiem uszkadzającym. W późniejszym badaniu mitochondriów mózgu myszy, stanowiącym kontynuację wcześniejszych prac, stwierdzono wytwarzanie nadtlenku już przy pięćdziesięciu nanomolach barwnika na litr, bez uszkodzeń mitochondrialnego DNA przy stężeniach terapeutycznych, a po wcześniejszej ekspozycji na barwnik obserwowano ochronę przed uszkodzeniami wywołanymi rotenonem. Dopiero przy stu mikromolach na litr, znacznie powyżej zakresu terapeutycznego, barwnik uszkadzał wybrane fragmenty DNA, natomiast czerwone światło w połączeniu z dwudziestoma mikromolami barwnika na litr powodowało powstawanie tlenu singletowego, który uszkadzał wszystkie badane fragmenty. Proponowany mechanizm ma charakter hormetyczny: niewielka produkcja nadtlenku uruchamia mechanizmy obrony przeciwutleniającej związane z Nrf2 oraz biogenezę mitochondriów, więc krótkoterminowy odczyt prooksydacyjny poprzedza długoterminowy efekt przeciwutleniający. Wynik testu odczytany po godzinie może różnić się od wyniku odczytanego po jednym dniu, ponieważ w tym czasie zmieniła się biologia układu.
Po trzecie, światło decyduje nawet o tym, jaka cząsteczka jest obecna. Oświetlenie powoduje demetylację barwnika prowadzącą do Azure B i pokrewnych produktów, a lampa mikroskopu nad szalką wystarcza do jego aktywacji fotosensybilizującej. Eksperymenty prowadzone w ciemności i przy oświetleniu są różnymi eksperymentami, a sekcja każdego protokołu dotycząca kontroli oświetlenia i postępowania z barwnikiem powinna je tak traktować.
Minimalny zestaw kontroli i sposób oceny każdego twierdzenia
Poniższe porównanie jest autorskim materiałem referencyjnym tego artykułu. Zanim zaakceptujesz jakikolwiek wynik dotyczący ROS i błękitu metylenowego, sprawdź, które wiersze autorzy uwzględnili, a które pominęli.
| Kontrola | Co pozwala wykluczyć | Jak ją przeprowadzić |
|---|---|---|
| Ciemność a określone oświetlenie | Mieszanie efektów redoks w stanie podstawowym z fotochemią | Ten sam barwnik, ta sama matryca, jedna grupa w ciemności, druga przy zmierzonej dawce światła |
| Sonda plus światło, bez barwnika | Fotochemię sondy | Oświetlić samą sondę; każdy sygnał stanowi poziom bazowy artefaktu |
| Barwnik plus światło, bez komórek lub substratu | Mylenie ROS pochodzenia komórkowego z ROS wytwarzanymi przez sam barwnik | Matryca bezkomórkowa; pozwala ustalić, co barwnik wytwarza samodzielnie |
| Katalaza | Sygnał niepochodzący od nadtlenku w teście Amplex | Sygnał powinien spaść; należy pamiętać, że oświetlany barwnik może uszkadzać samą katalazę |
| SOD | Pozwala sprawdzić udział anionorodnika ponadtlenkowego | Wzrost sygnału Amplex wskazuje na udział anionorodnika ponadtlenkowego na wcześniejszym etapie szlaku, a nie na błąd testu |
| Chelator żelaza, taki jak deferoksamina | Reakcje prowadzące do powstawania rodników hydroksylowych typu Fentona | Sprawdza, czy żelazo aktywne w reakcjach redoks odpowiada za sygnał DCFH lub pułapki |
| Wzorce nadtlenku w pełnej matrycy | Nieskalibrowaną fluorescencję | Dodatki znanych ilości nadtlenku przy identycznym stężeniu barwnika i ustawieniach optycznych |
Wynika z tego praktyczna zasada interpretacji. Skalibrowany test Amplex z peroksydazą i kontrolą z katalazą dostarcza dowodów dotyczących nadtlenku. DCFDA dostarcza dowodów dotyczących nieswoistego utleniania sondy i niczego więcej. Pułapkowanie spinowe z kontrolami wykorzystującymi zmiatacze rodników dostarcza dowodów dotyczących tożsamości rodników. Zużycie tlenu dostarcza dowodów dotyczących strumienia reakcji. Zdanie, które stwierdza więcej, niż może potwierdzić zastosowany test, niezależnie od tego, jak pewnie zostało napisane, jest zdaniem o sondzie, a nie o barwniku. Powiązane omówienia zależności od dawki i zakresu hormetycznego, mitochondrialnego przepływu elektronów, interferencji w testach z barwionymi próbkami oraz artefaktów oświetlenia w mikroskopii rozwijają każdy z tych punktów, a każdy z nich pozostaje aktualny po zastąpieniu jego tymczasowego odnośnika.