
Artykuł
Błękit metylenowy i tlenek azotu: NOS, cGMP i sygnalizacja naczyniowa
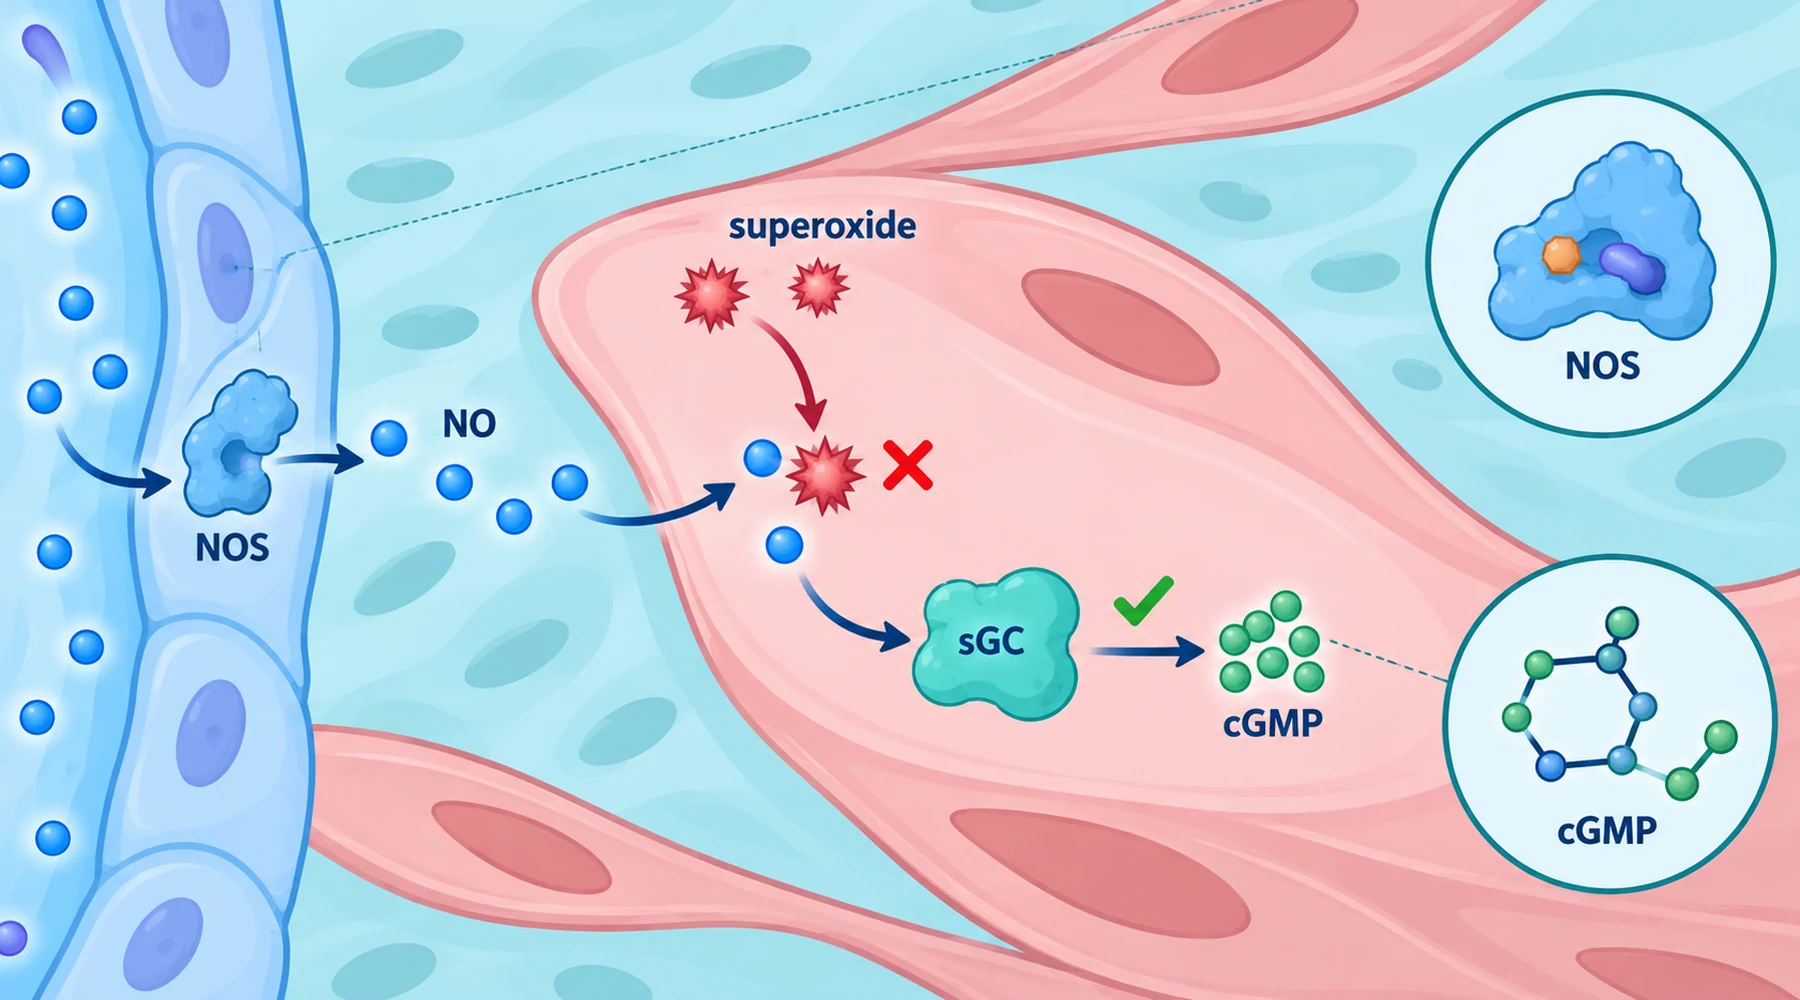
Pytanie brzmi prosto: czy błękit metylenowy hamuje działanie tlenku azotu? W laboratorium rozpada się ono na cztery odrębne pytania, z których każde wymaga innego testu eksperymentalnego. Ich mylenie jest głównym powodem, dla którego teksty o błękicie metylenowym i tlenku azotu brzmią pewnie, ale pozostają nieprecyzyjne.
Wyobraź sobie sygnał tlenku azotu jako łańcuch z czterema ogniwami. Gen ulega transkrypcji, co prowadzi do powstania syntazy tlenku azotu. Enzym przekształca argininę w tlenek azotu. Gaz dyfunduje do swojego celu, zanim przereaguje z czymś innym. Rozpuszczalna cyklaza guanylanowa wykrywa go i wytwarza cykliczny GMP. Opublikowano wyniki wskazujące na działanie błękitu metylenowego na każdym z tych ogniw, ale dowody pochodzą z różnych układów doświadczalnych, różnych stężeń i różnych izoform. Wynik dotyczący jednego ogniwa nie dowodzi działania na inne.
Kanoniczny łańcuch, opisany prostymi słowami
W ścianie naczynia krwionośnego standardowa sekwencja przebiega następująco. Bodziec działa na komórkę śródbłonka. Śródbłonkowa syntaza tlenku azotu, nazywana eNOS lub NOS3, wytwarza niewielki impuls tlenku azotu. Gaz dyfunduje do sąsiedniej komórki mięśnia gładkiego, wiąże się z hemem rozpuszczalnej cyklazy guanylanowej zawierającym żelazo w stanie zredukowanym i przyspiesza przemianę GTP w cykliczny GMP. Cykliczny GMP aktywuje kinazę białkową G, zmienia się gospodarka wapniowa, a mięsień się rozkurcza.
Istnieje drugi łańcuch, który warto rozpatrywać oddzielnie. Podczas zakażenia lub ekspozycji na cytokiny komórki prowadzą transkrypcję genu innego enzymu: indukowalnej syntazy tlenku azotu, czyli iNOS, nazywanej także NOS2. Wytwarza ona większe i dłużej utrzymujące się strumienie tlenku azotu niż eNOS. Trzecia izoforma, neuronalna NOS, czyli nNOS, należy do jeszcze innego kontekstu. Gdy publikacja mówi o syntazie tlenku azotu bez określenia izoformy, zatrzymaj się i sprawdź, którą z nich mierzono. Omówienie sposobu, w jaki błękit metylenowy przenosi elektrony, podkreśla to samo w odniesieniu do celów reakcji redoks w ogóle: przekaźnik sam w sobie niczego nie robi, a partner na każdym końcu decyduje o wyniku.
Mierzony poziom cyklicznego GMP jest również zintegrowanym wskaźnikiem, a nie bezpośrednim pomiarem aktywności enzymu. Odzwierciedla syntezę przez cyklazę pomniejszoną o rozkład przez fosfodiesterazy, zwłaszcza PDE5 w mięśniach gładkich naczyń. Spadek poziomu cyklicznego GMP oznacza więc, że do detektora dotarł słabszy sygnał. Sam w sobie nie wskazuje jednak, które ogniwo zawiodło.
Ogniwo 1: powstaje mniej enzymu iNOS
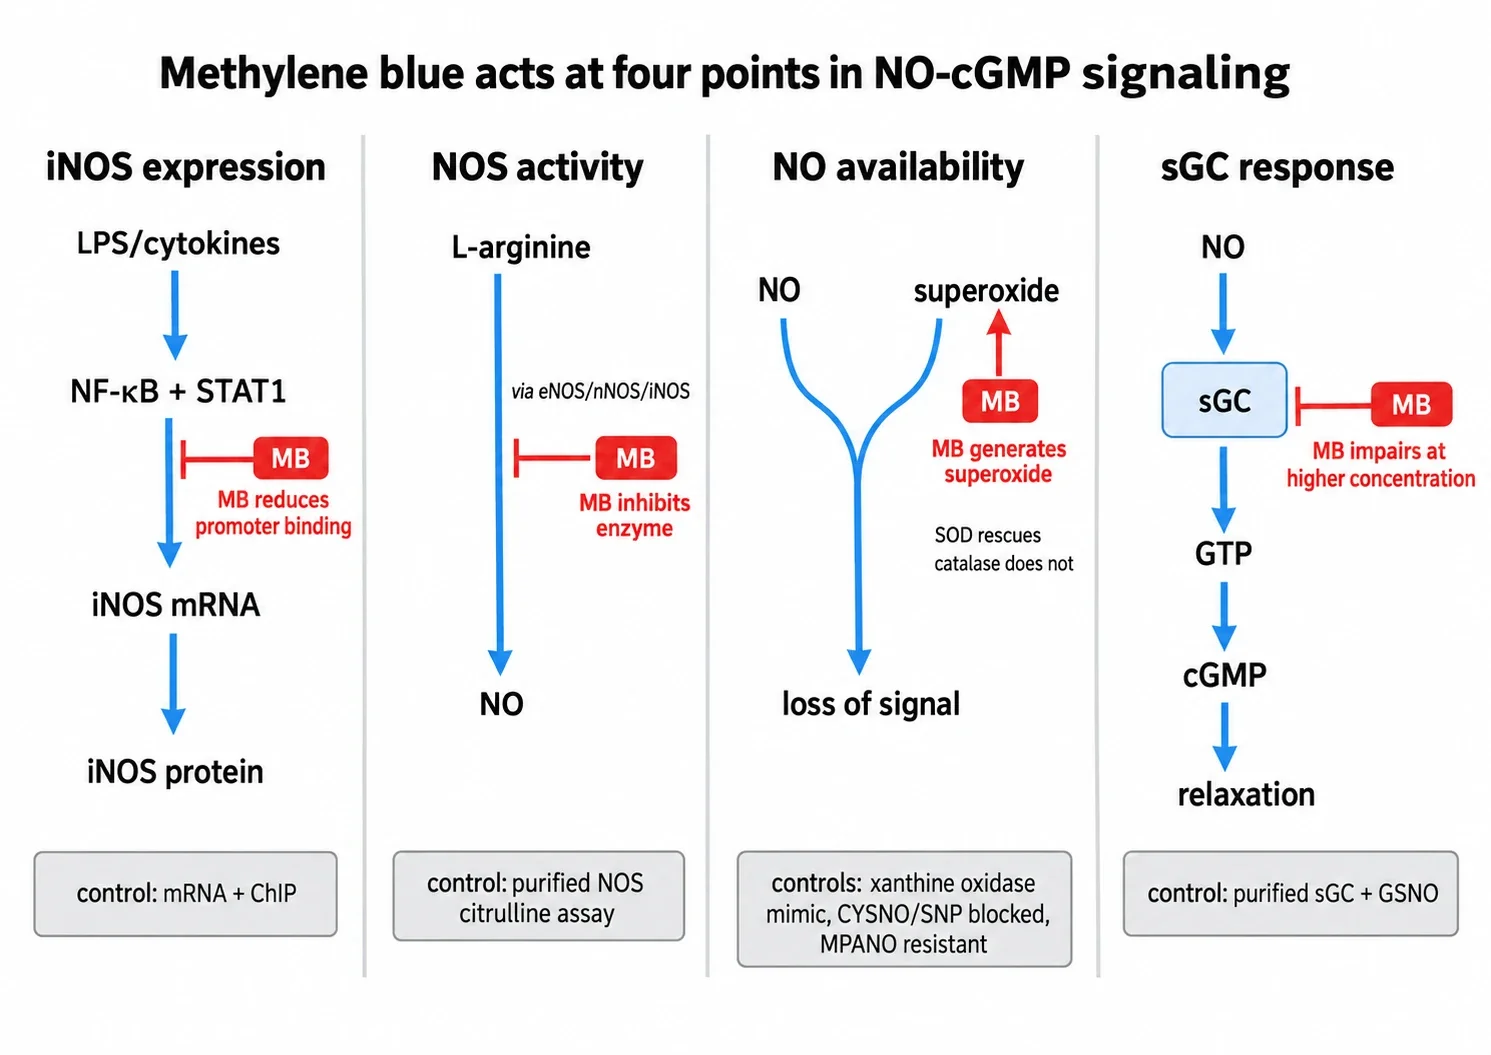
W mysich makrofagach stymulowanych bakteryjnym lipopolisacharydem, interferonem gamma lub oboma tymi czynnikami błękit metylenowy zapobiegał oczekiwanemu wzrostowi ilości białka iNOS i silnie zmniejszał ilość informacyjnego RNA iNOS w eksperymentach dotyczących transkrypcji w makrofagach. Istotne jest to, co się nie zmieniło. Degradacja inhibitora I kappa B alfa, fosforylacja NF kappa B i STAT1 oraz przemieszczanie się tych czynników do jądra pozostały w dużej mierze niezakłócone. Osłabło natomiast ich wiązanie z DNA, co potwierdzono metodą immunoprecypitacji chromatyny, wykazując mniejszą obecność tych czynników na promotorze iNOS.
Jest to efekt regulacji genu, poprzedzający zmiany ilości enzymu, a nie nagła blokada już istniejącego enzymu. Dotyczy sygnalizacji zapalnej, w której czynniki transkrypcyjne muszą związać się z promotorem, zanim pojawi się białko. Nie mówi niczego bezpośrednio o konstytutywnej eNOS w naczyniu w stanie spoczynku i tak właśnie należy go opisywać.
Ogniwo 2: istniejący enzym NOS działa wolniej
Badanie na szczurach dotyczyło innego poziomu. Przytomnym samcom szczurów podano dożylnie lipopolisacharyd, a następnie po trzech godzinach podano dożylnie sól fizjologiczną albo błękit metylenowy w dawce 3 mg na kg. Aktywność syntazy tlenku azotu w przyśrodkowo-podstawowej części podwzgórza mierzono na podstawie przemiany znakowanej argininy w cytrulinę w badaniu aktywności NOS w podwzgórzu. Sam stres w połączeniu z solą fizjologiczną indukował pewną aktywność niezależną od wapnia, a lipopolisacharyd zwiększał ją do około dziesięciokrotności poziomu kontrolnego. Błękit metylenowy eliminował oba indukowane składniki. Aktywność konstytutywna zależna od wapnia nie zmieniała się w tej tkance przy tej dawce i w tym punkcie czasowym.
Odczytuj ten wynik dokładnie tak, jak go opisano: w tych warunkach zahamowano mierzoną aktywność typu iNOS. Nie jest to pomiar ekspresji genu ani dowód trwałej selektywności wobec iNOS w porównaniu z eNOS czy nNOS. Badania oczyszczonych enzymów dodatkowo uzasadniają tę ostrożność. W bezpośrednich testach oczyszczonej syntazy tlenku azotu błękit metylenowy całkowicie blokował powstawanie cytruliny przy stężeniu 30 mikromolowym, a stężenie wywołujące połowiczne hamowanie wynosiło około 5.3 mikromola bez dysmutazy ponadtlenkowej i 9.2 mikromola w jej obecności, jak opisano w porównaniu oczyszczonej NOS i cyklazy guanylanowej. Odrębne badanie oczyszczonej nNOS wskazało na udział utleniania hemu związanego z enzymem. Praktyczny wniosek jest taki, że bezpośrednie hamowanie NOS rzeczywiście występuje w układach izolowanych, ale wyniku dotyczącego podwzgórza nie można rozszerzać na ogólne twierdzenie, że błękit metylenowy wszędzie pozostawia wszystkie konstytutywne NOS bez zmian.
Ogniwo 3: tlenek azotu zostaje utracony, zanim dotrze do celu
Najbardziej jednoznaczny dowód na to, że spadek cyklicznego GMP może wynikać z czegoś innego niż blokada enzymu, pochodzi z hodowli komórek mięśni gładkich tętnicy płucnej królika. W badaniu anionu ponadtlenkowego w mięśniach gładkich naczyń całkowicie pominięto endogenną NOS, dodając bezpośrednio donory tlenku azotu, a następnie sprawdzono, czy błękit metylenowy nadal tłumi odpowiedź cyklicznego GMP.
Przetestowano trzy donory w stężeniach od 1 do 100 mikromoli: S-nitrozo-L-cysteinę, nitroprusydek sodu oraz stabilny deaminowany analog o nazwie MPANO. Wszystkie zwiększały poziom cyklicznego GMP od około 1.5 raza do 12 razy. Błękit metylenowy w stężeniu 10 mikromoli hamował odpowiedź na pierwsze dwa o 51 do 100 procent i pozostawiał odpowiedź na MPANO bez zmian. Gdyby błękit metylenowy po prostu blokował miejsce katalityczne cyklazy, trudno byłoby wyjaśnić tę selektywność wobec donorów, ponieważ wszystkie trzy ostatecznie działają na ten sam enzym na dalszym etapie szlaku.
Następnie trzy próby kontrolne powiązały mechanizm z anionem ponadtlenkowym. Po pierwsze, wytwarzanie zewnątrzkomórkowego anionu ponadtlenkowego za pomocą ksantyny i oksydazy ksantynowej odtwarzało ten sam wzorzec: odpowiedzi na CYSNO i nitroprusydek były blokowane, a odpowiedź na MPANO pozostawała niezmieniona. Po drugie, błękit metylenowy powodował zależne od dawki i czasu wytwarzanie anionu ponadtlenkowego przez komórki mięśni gładkich, mierzone na podstawie redukcji cytochromu c. Po trzecie, dysmutaza ponadtlenkowa całkowicie zapobiegała hamowaniu, natomiast katalaza nie. Wskazuje to na anion ponadtlenkowy, a nie nadtlenek wodoru, jako bezpośrednio odpowiedzialną formę chemiczną w tym układzie.
Warto opisać wersję eksperymentu ze współhodowlą, ponieważ pozwala ona umiejscowić efekt w przestrzeni. Komórki śródbłonka na szkiełkach nakrywkowych krótko współhodowano z komórkami mięśni gładkich, dzięki czemu czynnik uwalniany przez śródbłonek w warunkach podstawowych zwiększał poziom cyklicznego GMP w mięśniach gładkich od trzech do ośmiu razy. Wstępne poddanie któregokolwiek z tych przedziałów działaniu błękitu metylenowego osłabiało sygnał, a dysmutaza ponadtlenkowa częściowo odwracała efekt wstępnego działania na śródbłonek. Innymi słowy, błękit metylenowy wcale nie musi działać wewnątrz komórki mięśnia gładkiego pełniącej funkcję detektora. Może osłabiać sygnał, usuwając cząsteczkę sygnałową podczas jej przemieszczania się. Przewodnik po interpretacji badań nad błękitem metylenowym traktuje to jako zasadę ogólną: zanim wskażesz cel molekularny, określ przedział, w którym przeprowadzono interwencję.
Nazywanie tego hamowaniem NOS byłoby błędem. Działanie donorów nie wymagało etapu z udziałem syntazy, a mimo to sygnał słabł.
Ogniwo 4: sam detektor odpowiada słabiej
Bezpośrednie działanie na rozpuszczalną cyklazę guanylanową istnieje, ale znaczenie mają stężenia. W przywołanym wyżej porównaniu oczyszczonych enzymów połowiczne zahamowanie cyklazy stymulowanej tlenkiem azotu wymagało około 60 mikromoli błękitu metylenowego, podczas gdy połowiczne hamowanie NOS występowało przy stężeniu około 5 do 9 mikromoli. Nawet stężenie 1 milimola dawało jedynie częściową blokadę maksymalnej aktywności. Oznacza to mniej więcej sześciokrotną do jedenastokrotnej różnicę. Eksperymentu komórkowego przy niskich stężeniach mikromolowych, w którym spada poziom cyklicznego GMP, nie można zatem uznać za dowód selektywnego hamowania cyklazy wyłącznie na podstawie wartości cyklicznego GMP.
Późniejsze badanie redoks wskazało drugi powód do ostrożności: błękit metylenowy dezaktywował cyklazę aktywowaną tlenkiem azotu poprzez mechanizm odmienny od prostego utleniania żelaza hemowego przez tlen z powietrza. Detektor może więc działać gorzej, ale chemia tego procesu nie została rozstrzygnięta, a różnica stężeń oznacza, że przy niskich stężeniach mikromolowych najpierw należy wykluczyć efekty związane z anionem ponadtlenkowym i NOS. To także miejsce na kontrolę udziału fosfodiesteraz. Jeśli nie zmierzono ani nie zablokowano rozkładu, mniejsza akumulacja cyklicznego GMP może wynikać ze słabszej syntezy, szybszej degradacji lub obu tych procesów.
Dlaczego nie sprowadza się to do jednego twierdzenia o ciśnieniu krwi
Każde ogniwo wykazano w innym układzie. Transkrypcja w makrofagach nie jest aktywnością enzymu w podwzgórzu. Aktywność w podwzgórzu po podaniu lipopolisacharydu nie jest spoczynkowym działaniem śródbłonka na napięcie naczyń. Czynnik uwalniany przez śródbłonek w warunkach podstawowych we współhodowli nie jest rozszerzeniem naczyń stymulowanym przez agonistę. Hodowane komórki tętnicy płucnej poddane działaniu błękitu metylenowego w stężeniu 10 mikromoli nie są ludzkim układem krążenia. Sprowadzenie tego wszystkiego do stwierdzenia, że błękit metylenowy podnosi ciśnienie krwi, blokując tlenek azotu, pomija dokładnie te rozróżnienia, dla których zachowania zaprojektowano próby kontrolne.
Trzy kwestie pozwalają zachować rzetelność opisu. Po pierwsze, nazwij izoformę: eNOS w przypadku spoczynkowego napięcia naczyń, iNOS w przypadku indukowanego strumienia NO w stanie zapalnym, nNOS w kontekście neuronalnym i niektórych badań oczyszczonych enzymów. Po drugie, określ sposób dostarczenia sygnału tlenku azotu: syntezę endogenną, podstawowe uwalnianie przez śródbłonek albo konkretny donor, taki jak CYSNO, nitroprusydek czy MPANO, ponieważ stabilny donor był odporny na działanie błękitu metylenowego, a nietrwałe donory nie. Po trzecie, podaj stężenie i sposób odwrócenia efektu: odwrócenie efektu przez dysmutazę ponadtlenkową wskazuje na udział anionu ponadtlenkowego, brak działania katalazy przemawia przeciw udziałowi nadtlenku wodoru w danym układzie, odtworzenie efektu przez oksydazę ksantynową pokazuje, że ten mechanizm jest wystarczający, a testy oczyszczonych enzymów oddzielają bezpośredni wpływ na katalizę od utraty sygnału podczas jego przemieszczania się.
Zwięzłe podsumowanie jest następujące. Błękit metylenowy lepiej traktować jako czynnik zaburzający w wielu miejscach sygnalizację od tlenku azotu do cyklicznego GMP niż jako selektywny bloker cyklazy. Zależnie od układu doświadczalnego i stężenia może osłabiać wiązanie czynników transkrypcyjnych iNOS, bezpośrednio hamować enzymy NOS, zmniejszać dostępność tlenku azotu poprzez wytwarzanie anionu ponadtlenkowego i upośledzać działanie cyklazy aktywowanej tlenkiem azotu. Rola sygnalizacji cyklicznego GMP w badaniach naczyń oraz porównanie donorów tlenku azotu stosowanych w testach komórkowych omawiają bardziej szczegółowo po jednej z tych gałęzi, a metody oddzielania efektów redoks od wpływu na enzymy wyjaśniają, dlaczego w tej literaturze tak często pojawiają się razem dysmutaza ponadtlenkowa, katalaza i próba kontrolna ze stabilnym donorem.
Niska wartość cyklicznego GMP po zastosowaniu błękitu metylenowego wskazuje na przerwany łańcuch. Tylko próby kontrolne mówią, które ogniwo zostało przerwane.