
Artykuł
Gdy błękit metylenowy zakłóca eksperyment służący do jego pomiaru
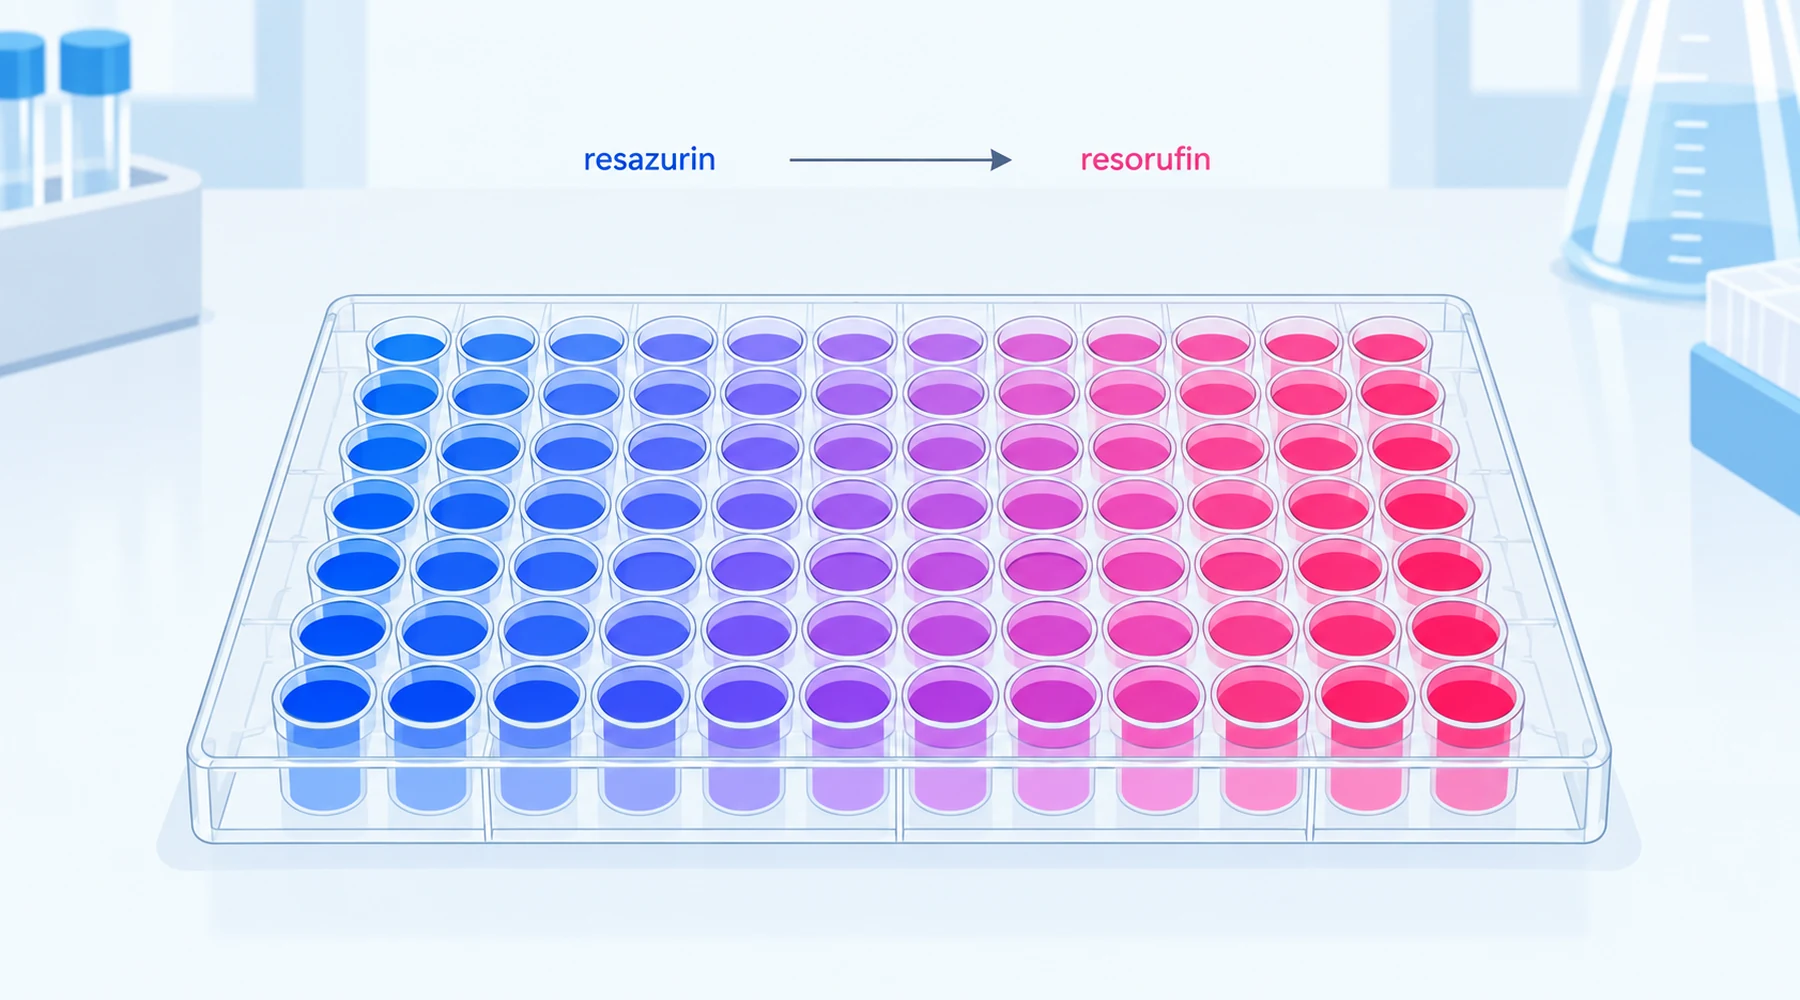
W pewnym laboratorium zarodki danio pręgowanego hoduje się w błękicie metylenowym o standardowym stężeniu stosowanym w hodowli, a następnie mierzy ich metabolizm na dwa sposoby. Pierwszego dnia analizator Seahorse wykazuje wzrost zużycia tlenu. Czwartego i piątego dnia test Alamar Blue na płytce wskazuje spadek wydatku energetycznego. Ten sam barwnik, ta sama linia ryb, przeciwne wnioski. Potem pojawia się niepozorna kontrola: dołki zawierające błękit metylenowy i odczynnik Alamar Blue, ale bez żadnych ryb, również dają słabszy sygnał niż sam odczynnik. Część wyniku odzwierciedlała biologię. Część była efektem tego, że barwnik oceniał własny egzamin. Ten podział, udokumentowany w badaniu błękitu metylenowego u rozwijającego się danio pręgowanego opublikowanym w Communications Biology w 2025 roku, jest typowym obrazem interferencji błękitu metylenowego w testach. Właśnie dlatego barwniki aktywne redoks wymagają kontroli, które nie są potrzebne przy zwykłych badanych związkach.
Co rzeczywiście pokazuje test z rezazuryną
Alamar Blue to nazwa handlowa roztworu rezazuryny, więc interferencje błękitu metylenowego w teście Alamar Blue i w teście z rezazuryną opisują to samo zjawisko. Utleniona rezazuryna jest niebieska i wykazuje znikomą fluorescencję. Komórki aktywne metabolicznie redukują ją do rezorufiny, która jest różowa i silnie fluorescuje przy wzbudzeniu w pobliżu 560 nm i emisji w pobliżu 590 nm. Zgodnie z protokołem producenta dla mikropłytek użyteczne zakresy wynoszą około 530 do 570 nm dla wzbudzenia i 580 do 610 nm dla emisji. Dalsza redukcja przekształca rezorufinę w dihydrorezorufinę, która słabo fluorescuje. Dlatego zbyt duża liczba komórek w dołku lub zbyt długi czas inkubacji powodują odchylenie górnego odcinka krzywej kalibracyjnej w dół.
Elektrony pochodzą głównie z NADH i NADPH i są przekazywane przez reduktazy komórkowe oraz diaforazy w cytozolu, mikrosomach i mitochondriach. Odczyt odzwierciedla więc łączną zdolność redukcyjną, a nie liczbę żywych komórek ani pomiar funkcji mitochondriów. Wyższy sygnał może oznaczać więcej komórek, większy strumień równoważników redukcyjnych na komórkę albo oba te zjawiska. Związek, który przekierowuje NADH, zmienia sygnał bez zabicia choćby jednej komórki. Warto zapamiętać to zdanie, ponieważ przekierowywanie NADH jest dla błękitu metylenowego codziennością.
Dwa mechanizmy interferencji, jeden obniżony sygnał
Błękit metylenowy zniekształca odczyt rezazuryny za pośrednictwem dwóch niezależnych mechanizmów, a każdy z nich z osobna obniża pozorną fluorescencję.
Mechanizm 1 jest optyczny. Błękit metylenowy silnie pochłania światło w czerwonej części widma. Jego pasmo monomerowe znajduje się w pobliżu 660 do 665 nm, a ramię pasma dimerowego w pobliżu 607 do 610 nm; ogon tego drugiego sięga w stronę emisji rezorufiny około 590 nm. Barwnik znajdujący się na drodze światła pochłania część światła wzbudzającego i ponownie pochłania część emitowanej fluorescencji. Ten efekt filtra wewnętrznego osłabia sygnał z dołka nawet wtedy, gdy produkcja rezorufiny pozostaje bez zmian. Widmo zmienia się również zależnie od postaci barwnika: analiza czynnikowa widm błękitu metylenowego w wodzie i roztworach cyklodekstryn rozróżnia monomer, dimer i kompleks gospodarz–gość jako trzy formy o odmiennych współczynnikach ekstynkcji w zakresie od 500 do 700 nm. Wielkość błędu optycznego zmienia się więc wraz ze stężeniem, agregacją i wiązaniem. W eksperymencie należy odróżnić zwykłe osłabienie optyczne od wygaszania molekularnego za pomocą opisanego poniżej testu odzysku dodatku wzorca, ponieważ wymagają one innych sposobów korekty.
Mechanizm 2 to konkurencja redoks. Utleniony błękit metylenowy przyjmuje elektrony z NAD(P)H, tworząc bezbarwny leukobłękit metylenowy. Tlen cząsteczkowy ponownie utlenia go do niebieskiej postaci, a przy tym powstają produkty redukcji tlenu, w tym nadtlenek wodoru. Każdy obrót tego cyklu zużywa równoważniki redukcyjne, które w przeciwnym razie redukowałyby rezazurynę, oraz zużywa tlen, wytwarzając przy okazji nadtlenek. Obniżony sygnał Alamar Blue może zatem oznaczać, że elektrony trafiły do cyklu błękitu metylenowego zamiast do rezorufiny. Na płytce wygląda to jak osłabiony metabolizm, niezależnie od tego, co rzeczywiście działo się w komórkach. Ta sama chemia wyjaśnia lustrzane odbicie tej pułapki w przyrządach mierzących tlen: ponowne utlenianie zredukowanego barwnika przez tlen powoduje chemiczne zużycie tlenu bez udziału układu biologicznego. Dlatego próby ślepe z barwnikiem są potrzebne również w respirometrii, jak wyjaśnia porównanie odczytów zużycia tlenu, ATP i potencjału błonowego w kontekście mitochondriów.
Zmieniony sygnał i zmieniona biologia mogą występować jednocześnie
Badanie na danio pręgowanym jest cenne właśnie dlatego, że nie sprowadza wniosków do łatwego wyboru „albo–albo”. Zmiany biologiczne były rzeczywiste: u 1-dniowych zarodków podstawowe zużycie tlenu wzrosło przy obu stężeniach stosowanych w hodowli, oddychanie związane z produkcją ATP wzrosło przy niższym stężeniu, potencjał błonowy mierzony sondą JC-10 wzrósł drugiego dnia, a poziomy transkryptów kompleksów mitochondrialnych spadły pierwszego i czwartego dnia. Artefakt także był rzeczywisty: ryby płukane trzykrotnie przed etapem Alamar Blue nadal miały widoczne niebieskie zabarwienie w obrębie głowy, jamy ustnej i okolicy węchowej, a dołki bez komórek, zawierające barwnik i odczynnik, same wykazywały niewielki, lecz istotny spadek fluorescencji. Spadki sygnału Alamar Blue mierzone w organizmach czwartego i piątego dnia były większe niż efekt bezkomórkowy. Autorzy uznali więc wynik za rzeczywistą zmianę metaboliczną oglądaną przez lekko zniekształcającą soczewkę. To właściwy model myślenia. Związek uczestniczący w cyklu redoks, który jednocześnie jest niebieskim absorberem, zwykle wpływa równocześnie na badany szlak i chemię układu reporterowego. Zadaniem kontroli jest określenie wielkości obu wkładów, a nie uznanie jednego z nich za pozorny. Podobna lekcja płynie z badań nad wiązaniem przez cyklodekstryny: gdy cząsteczka gospodarza wiązała barwnik, zabarwienie i aktywacja pobierania glukozy zanikały razem. Wskazywało to, że efekt metaboliczny wymagał bezpośredniej interakcji barwnika, a nie jedynie nieswoistych zaburzeń redoks. Powiązanie fizycznego odczytu barwnika z odczytem funkcjonalnym to właśnie krok, który oddziela mechanizm od artefaktu. Poradnik interpretowania twierdzeń o metabolizmie opartych na testach barwnikowych rozwija ten nawyk dalej.
Kontrole, które je rozdzielają
Wykonaj je, zanim zaczniesz interpretować jakikolwiek wynik błękitu metylenowego z płytki z rezazuryną. Stężenia, podłoże, czas inkubacji i oświetlenie muszą dokładnie odpowiadać eksperymentowi z komórkami, ponieważ każdy opisany wyżej mechanizm od nich zależy.
| # | Kontrola | Co wykrywa | Kryterium akceptacji | Jeśli kryterium nie jest spełnione |
|---|---|---|---|---|
| 1 | Podłoże z barwnikiem, bez odczynnika i komórek | Tło barwnika przy długościach fal używanych w teście | Tło małe względem sygnału komórkowego | Odejmij próby ślepe dla każdego stężenia, nigdy jedną wspólną próbę ślepą |
| 2 | Podłoże z odczynnikiem, bez barwnika i komórek | Samorzutną redukcję odczynnika | Niski, stabilny poziom bazowy podczas inkubacji | Skróć inkubację, zmień podłoże lub zaakceptuj wyższy dolny poziom sygnału |
| 3 | Podłoże z barwnikiem i odczynnikiem, bez komórek | Bezpośrednie reakcje chemiczne barwnika z odczynnikiem | Wynik taki sam jak w kontroli 2 w granicach szumu | Podaj różnicę sygnału, nie przypisuj jej komórkom |
| 4 | Dodatek wzorca rezorufiny do dołków z samym nośnikiem oraz do dołków z barwnikiem | Osłabienie optyczne lub wygaszanie | Jednakowy odzysk w obu matrycach | Określ stratę dla każdej dawki barwnika i skoryguj wynik lub zmień metodę odczytu |
| 5 | Pozostałość barwnika w układzie bezkomórkowym po płukaniu i bez płukania | Resztkowy barwnik po etapach płukania | Płukanie usuwa efekt bezkomórkowy | Barwnik wewnątrz komórek pozostaje, więc kontrole 3 i 4 nadal są potrzebne |
Kontrole 3 i 4 to para, którą pomija większość publikacji, a której potrzebuje większość badań nad błękitem metylenowym. Kontrola 3 wychwytuje chemię, kontrola 4 wychwytuje optykę, a razem wyznaczają granice artefaktu, zanim zostanie sformułowany jakikolwiek wniosek biologiczny.
Odczyty ortogonalne — każdy z własnymi zastrzeżeniami
Żaden pojedynczy drugi test nie potwierdza wiarygodności pierwszego. Każdy odczyt ortogonalny unika jednego mechanizmu, ale pozostaje narażony na inny. Wybierz więc zestaw, którego ograniczenia nie nakładają się na siebie. Macierz doboru testów dla związków aktywnych redoks wyjaśnia logikę łączenia metod, a poradnik dotyczący sond potencjału błonowego szczegółowo omawia zastrzeżenia związane z fluorescencją.
Pomiar zużycia tlenu metodą Seahorse śledzi przepływ elektronów do tlenu zamiast do rezorufiny, dzięki czemu całkowicie omija chemię układu reporterowego. Jednak barwnik również chemicznie zużywa tlen, więc próby ślepe z barwnikiem w pełnym podłożżu, bez mitochondriów, są obowiązkowe. Testy ATP z lucyferazą wykorzystują bioluminescencję zamiast fluorescencji rezorufiny, unikając zarówno nakładania się zakresów optycznych, jak i konkurencji o reduktazy. Ceną jest pomiar bilansu puli ATP, a nie szybkości jego syntezy. Sondy potencjału błonowego, takie jak TMRM czy JC-10, odpowiadają na pytanie, czy utrzymuje się gradient ładunku. Fluorescencja tych sond przypada jednak na ten sam zakres światła widzialnego, w którym barwnik pochłania światło, więc resztkowe niebieskie zabarwienie komplikuje również ich odczyt. Wymagają one prób ślepych z samym barwnikiem przy każdej jego dawce. Pomiary transkryptów podjednostek kompleksów oddechowych całkowicie omijają optykę i odzwierciedlają zmiany zachodzące w ciągu godzin, co uzupełnia odczyty płytkowe w skali minut.
Minimalny wiarygodny zestaw danych dla twierdzenia o wpływie błękitu metylenowego na metabolizm obejmuje zatem: wynik testu z rezazuryną wraz z kontrolami od 1 do 4, jeden punkt końcowy niewykorzystujący rezazuryny i oparty na innej zasadzie fizycznej oraz jasne określenie, czy zmiana odzwierciedla liczbę komórek, strumień równoważników redukcyjnych na komórkę, czy oba te czynniki. Mniejszy zestaw nie pozwala czytelnikowi odróżnić osłabionego metabolizmu od słabszego sygnału z dołka.
Arkusz kontroli interferencji
Skopiuj ten arkusz do dziennika laboratoryjnego dla każdego eksperymentu łączącego barwnik z reporterem redoks. To autorskie narzędzie przygotowane do tego artykułu: wypełnij jeden wiersz dla każdego stężenia barwnika.
A. Mechanizmy kształtujące sygnał. Dla każdego stężenia zanotuj: przewidywaną przewagę monomerów lub dimerów (niskie stężenia mikromolowe w porównaniu z dziesiątkami mikromoli i wyższymi stężeniami), absorbancję końcowej zawartości dołka przy 590 nm w dołku bez komórek oraz procentowy odzysk dodatku wzorca rezorufiny. Jeśli odzysk spada poniżej około 90 procent, traktuj wszystkie wartości fluorescencji przy tej dawce jako obniżone przez efekty optyczne, a nie jako dokładny obraz biologii.
B. Kontrola chemii. Dla każdego czasu odczytu zapisz fluorescencję układu bezkomórkowego zawierającego barwnik i odczynnik jako procent poziomu bazowego uzyskanego dla samego odczynnika. Jeśli różnica rośnie z czasem, barwnik reaguje z układem reporterowym podczas testu, a odczyty wykonywane wyłącznie w punkcie końcowym będą mylące. Rozważ odczyty kinetyczne lub inny reporter.
C. Niezależna weryfikacja biologii. Wskaż odczyt ortogonalny wybrany dla tego eksperymentu, odpowiadającą mu próbę ślepą z barwnikiem oraz przewidywany wynik, jeśli wynik testu z rezazuryną jest rzeczywisty. Rzeczywiste osłabienie metabolizmu powinno zmienić niezależny punkt końcowy w zgodnym kierunku. Jeśli ortogonalny punkt końcowy daje sprzeczny wynik, na razie nie ufaj żadnemu z nich i przeprojektuj eksperyment zamiast uśredniać oba wyniki.
D. Zdanie podsumowujące. Napisz jedno zdanie w następującej formie: przy podanej dawce i na podanym etapie sygnał rezazuryny zmienił się o określoną wartość, z czego określona część jest artefaktem bezkomórkowym, a ortogonalny punkt końcowy (jest lub nie jest zgodny z wynikiem). Jeśli którekolwiek pole pozostaje puste, eksperyment nie jest zakończony.
Błękit metylenowy pozostaje użyteczną sondą metaboliczną, a badania na danio pręgowanym pokazują rzeczywiste efekty mitochondrialne przy dawkach, które wiele placówek codziennie wylewa do odpływu. Barwnik po prostu wymaga pomiaru przy użyciu przyrządów, na które nie może wpływać. Zapewnij dołki z samym barwnikiem, test odzysku dodatku wzorca oraz jeden odczyt oparty na innej zasadzie fizycznej, a interferencja przestanie być pułapką i stanie się wielkością, którą można wyrazić liczbowo.