
Artikel
Reactieve zuurstofsoorten meten in experimenten met methyleenblauw
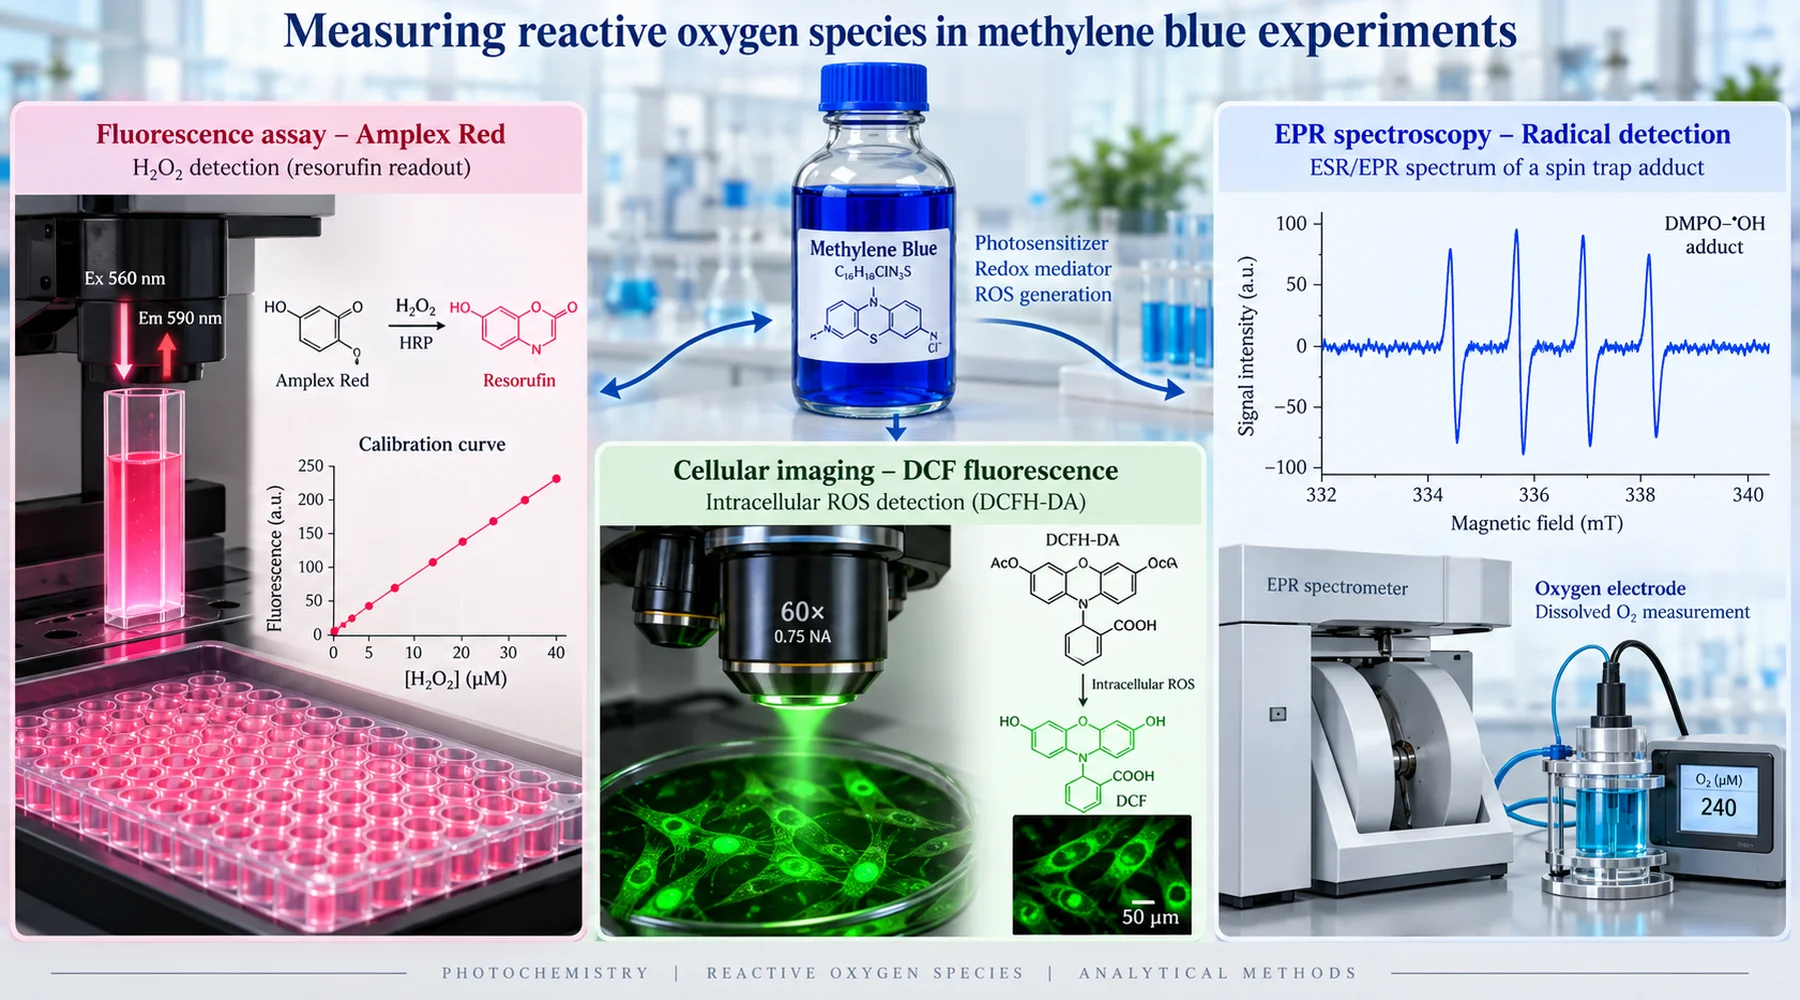
Twee laboratoria voeren uit wat ze allebei een experiment naar de antioxidatieve werking van methyleenblauw noemen. Het ene meldt dat de kleurstof reactieve zuurstofsoorten onderdrukt. Het andere meldt dat de kleurstof ze genereert. Beide laten duidelijke dosis-responscurven zien. Beide zijn oprecht. Het verschil zit niet in fraude of onkunde. De twee groepen hebben verschillende dingen gemeten onder verschillende lichtomstandigheden, met probes die verschillende vragen beantwoorden, en vervolgens beide antwoorden beschreven met hetzelfde woord: ROS.
Methyleenblauw is een moeilijk nauwkeurig te meten molecuul, omdat het deelneemt aan de chemie die het geacht wordt te observeren. In het donker transporteert het elektronen tussen donoren en acceptoren en keert het terug naar zijn uitgangsvorm, klaar voor een nieuwe cyclus. Onder licht wordt het een fotosensibilisator en bereikt het een aangeslagen triplettoestand. Vanuit die toestand kan het energie overdragen aan zuurstof om singletzuurstof te vormen, of elektronen overdragen om radicalen en waterstofperoxide te vormen. Elke probe die aan dat systeem wordt toegevoegd, kan door de kleurstof zelf worden geoxideerd, gereduceerd, gebleekt of optisch gemaskeerd. De eerste vraag bij elke ROS-meting is dus nooit wat de waarde is. De vraag is wat de assay daadwerkelijk detecteert en wat de kleurstof met de assay doet.
Amplex Red: een gekalibreerde waterstofperoxide-assay
De combinatie van methyleenblauw en Amplex Red is in deze literatuur het best te verantwoorden, mits de assay correct wordt opgezet. De chemie is specifiek: mierikswortelperoxidase gebruikt waterstofperoxide om het Amplex-substraat te oxideren tot een fluorescerend product, resorufine, in een stoichiometrische verhouding van ongeveer één op één. Peroxide uit het monster wordt fluorescentie in de detector. Geen enkele andere soort uit de klassieke ROS-familie drijft die reactie rechtstreeks aan.
Het doorslaggevende voordeel is kalibratie. Een zorgvuldige onderzoeker meet peroxidestandaarden met bekende concentraties in dezelfde buffer, met dezelfde peroxidase- en substraatconcentraties, dezelfde incubatietijd en dezelfde optische instellingen, en leest vervolgens de monsters af aan de hand van die curve. In de studie met geïsoleerde hersenmitochondriën waarop deze methode berust, deden de auteurs precies dat: ze voegden aan het einde van elke meetreeks bekende hoeveelheden peroxide toe. De waarden worden gerapporteerd als snelheden in picomol per minuut per milligram eiwit, in plaats van als willekeurige fluorescentie-eenheden. Dat maakt van een lichtsignaal een meting.
Drie details uit die studie verdienen navolging. Ten eerste verifieerden de auteurs het signaal met catalase, dat peroxide afbreekt. De door methyleenblauw veroorzaakte stijging van de fluorescentie stopte toen catalase werd toegevoegd. Daarmee werd bevestigd dat het signaal afkomstig was van peroxide en geen optisch artefact was. Ten tweede testten ze de invloed van belichting rechtstreeks door de excitatiebundel met een sluiter te onderbreken, zodat de monsters één achtste van de normale lichtdosis ontvingen. Het signaal daalde slechts met negen procent. Meer dan negentig procent van het gerapporteerde peroxide was onafhankelijk van het meetlicht. Ten derde maten ze de eliminatie van peroxide afzonderlijk met een elektrode en ontdekten ze dat de kleurstof zowel de productie verhoogde als de verwijdering vertraagde. Een probe die alleen nettofluorescentie rapporteert, zou die twee effecten hebben samengevoegd.
De assay kent nog steeds valkuilen, en methyleenblauw legt er meerdere bloot. De kleurstof absorbeert over een breed bereik in hetzelfde rode gebied waarin resorufine licht uitzendt. Bij hoge kleurstofconcentraties kan het monster daardoor zijn eigen signaal maskeren via binnenfiltereffecten. Standaarden moeten daarom dezelfde kleurstofconcentratie bevatten als de monsters. Amplex Red kan ook zelfstandig foto-oxideren, en het product resorufine kan deelnemen aan fotoredoxcycli die superoxide en peroxide genereren. Dat is bijzonder relevant wanneer het experiment ook een fotosensibilisator belicht. De praktische oplossing is om de methyleenblauwmonsters eerst te bestralen en daarna aliquots met Amplex-reagentia in het donker te analyseren, in plaats van kleurstof en probe samen te belichten. Tot slot onderdrukt superoxidedismutase niet simpelweg een Amplex-signaal: de omzetting van superoxide in peroxide kan het juist verhogen. Een SOD-controle waarbij de fluorescentie stijgt, is niet mislukt. Die heeft superoxide geïdentificeerd als een soort die eerder in de reactieketen optreedt.
DCFDA: een niet-specifieke oxidatie-indicator
De combinatie van methyleenblauw en DCFDA veroorzaakt de meeste verwarring. DCFH-DA is een precursor die in cellen wordt opgenomen. Esterasen in de cel verwijderen de acetaatgroepen, waardoor niet-fluorescerend DCFH overblijft. Oxidatie van DCFH levert fluorescerend DCF op. De lijst van stoffen die het oxideren is lang: hydroxylradicalen, peroxidase- en heemintermediairen, stikstofdioxide, hypochloorzuur en radicalen afkomstig van peroxynitriet. Waterstofperoxide alleen oxideert het niet rechtstreeks met een bruikbare snelheid; peroxideafhankelijke fluorescentie vereist doorgaans de betrokkenheid van ijzer, heemeiwitten of peroxidasechemie.
De kritische analyse die elke methodesectie zou moeten citeren, is die van DCFH als probe door Kalyanaraman en collega's, zoals samengevat in de studie met hersenmitochondriën die DCFDA om deze reden afwees. Zij toonden aan dat de kleurstof langzaam reageert, met een niet-gekarakteriseerde stoichiometrie, zonder geldige kalibratie en ook met verbindingen die geen ROS zijn. De probe versterkt bovendien wat hij meet: één-elektronoxidatie van DCFH produceert een DCF-radicaal dat met zuurstof reageert tot superoxide, dat vervolgens dismuteert tot extra peroxide. De meting veroorzaakt dus deels zelf de chemie die ze rapporteert.
Dit alles maakt DCFDA niet nutteloos. Het maakt het tot een screeningsinstrument, niet tot een identificatiemethode. Een stijging van de DCF-fluorescentie betekent dat de oxidantafhankelijke oxidatie van de probe is toegenomen. Het betekent niet dat peroxide is toegenomen, en zeker niet dat de totale hoeveelheid ROS is toegenomen: geen enkele afzonderlijke probe meet die grootheid. Eerder onderzoek met methyleenblauw dat steunde op DCF-oxidatie bij concentraties boven één micromolair, rapporteerde pro-oxidatieve effecten. Andere systemen uit dezelfde periode lieten daarentegen bescherming tegen door peroxide veroorzaakte celdood zien. Beide waarnemingen kunnen gelden voor dezelfde kleurstof in verschillende redoxcontexten, en het DCF-resultaat alleen kan niet aangeven welke oxidant verantwoordelijk was voor het signaal. Het belang van het eerdere onderzoek met hersenmitochondriën is dat deze screening werd vervangen door een gekalibreerde peroxidemeting, die de belasting rechtstreeks aantoonde: zelfs honderd nanomolair kleurstof verhoogde de peroxideafgifte meerdere malen, bij elk getest substraat en in elke geteste respiratietoestand.
DCFDA kent nog een valkuil die specifiek is voor methyleenblauw. De kleurstof is sterk gekleurd en redoxactief, waardoor hij fluorescentie kan bleken, emissie kan doven of de probe kan oxideren onafhankelijk van cellulaire ROS. Een celvrije controle met kleurstof en probe, maar zonder cellen, is geen vrijblijvend extraatje. Het is het experiment dat laat zien of de kleurstof met de probe reageert.
Spintrapping en zuurstofopname: identiteit en flux
Waar fluorescerende probes aangeven dat er iets oxideerbaars is ontstaan, geeft elektronspinresonantie met spintraps meer informatie over wat dat precies was. De klassieke studie naar de fotochemie van methyleenblauw gebruikte ESR om het ascorbaatradicaal te detecteren bij kleurstof, ascorbaat en licht. Vervolgens toonde de studie peroxidevorming aan in zuurstofopname-experimenten en ijzergekatalyseerde vorming van hydroxylradicalen in spintrappingexperimenten. Elke techniek beantwoordde de vraag die de andere niet konden beantwoorden: ESR gaf de identiteit van het radicaal, zuurstofopname gaf de reactieflux onafhankelijk van een fluorescerende probe, en de combinatie liet zien dat zowel singletzuurstofroutes als radicalenroutes actief waren in hetzelfde belichte systeem.
Dat resultaat uit 1984 leest nog steeds als een waarschuwing. Bij belichting en in aanwezigheid van een reductiemiddel genereerde de kleurstof peroxide. Als er ook ijzer aanwezig was, produceerde het systeem het hydroxylradicaal, de meest reactieve soort van deze groep. De auteurs legden een verband met ascorbaat in het oog en plaatsten vraagtekens bij ondoordacht oogheelkundig gebruik. Moderne lezers moeten letten op de omstandigheden: licht plus reductiemiddel plus ijzer. Haal één daarvan weg en de reactieroute verzwakt of verdwijnt.
Zuurstofelektroden verdienen hun plaats op een andere manier. Een Clark-elektrode meet het nettozuurstofverbruik. Daarmee wordt vastgesteld dat de door de kleurstof aangedreven redoxchemie moleculaire zuurstof verbruikt, en worden kinetische gegevens verkregen die geen fluorescentieartefact kan nabootsen. De elektrode identificeert het product niet. De vorming van peroxide, superoxide en water, evenals het verval van singletzuurstof, verbruiken allemaal zuurstof. Flux zonder identiteit is even onvolledig als identiteit zonder flux. Daarom combineren de sterke studies de elektrode met een gekalibreerde peroxide-assay of een spintrap.
Waarom antioxidatieve resultaten elkaar tegenspreken
Leg de drie meetmethoden naast elkaar en de schijnbare tegenstrijdigheden in de methyleenblauwliteratuur blijken voort te komen uit methodologische verschillen en drie biologische feiten.
Ten eerste is de kleurstof zowel een elektronentransporteur als een bron van peroxide. Door elektronen weg te leiden van de plaatsen in de ademhalingsketen waar zuurstof anders superoxide zou worden, kan hij de ene ROS verlagen. Tegelijk kan zijn gereduceerde vorm zuurstof rechtstreeks reduceren tot peroxide, waardoor een andere ROS toeneemt. Een laboratorium dat werkt met mitochondriale redoxchemie en de omleidingsfunctie van methyleenblauw moet daarom probeafhankelijke antwoorden verwachten: een superoxidegevoelig signaal daalt terwijl een peroxidesignaal stijgt in dezelfde cuvet.
Ten tweede is peroxide bij lage doses een signaal, niet alleen een bron van schade. De studie met mitochondriën uit muizenhersenen die op het eerdere werk volgde, vond peroxidevorming vanaf slechts vijftig nanomolair kleurstof, zonder mitochondriale DNA-schade bij therapeutische concentraties, met bescherming tegen door rotenon veroorzaakte schade na voorbehandeling. Pas bij honderd micromolair, ver boven het therapeutische bereik, beschadigde de kleurstof bepaalde DNA-fragmenten. Rood licht in combinatie met twintig micromolair kleurstof produceerde singletzuurstof die alle geteste fragmenten beschadigde. Het voorgestelde mechanisme is hormetisch: een geringe peroxideproductie activeert Nrf2-gerelateerde antioxidatieve afweer en mitochondriale biogenese, zodat een pro-oxidatieve meting op korte termijn voorafgaat aan een antioxidatief resultaat op langere termijn. Een assay die na één uur wordt afgelezen en een assay die na één dag wordt afgelezen, kunnen verschillende resultaten geven omdat de biologie in de tussentijd is veranderd.
Ten derde bepaalt licht welk molecuul überhaupt aanwezig is. Belichting demethyleert de kleurstof tot Azure B en verwante producten, en de microscooplamp boven een schaaltje is al voldoende om fotosensibilisatie te veroorzaken. Experimenten in het donker en onder belichting zijn verschillende experimenten, en de sectie over controles voor belichting en het hanteren van de kleurstof in elk protocol moet ze ook zo behandelen.
Een minimale set controles en hoe je elke claim beoordeelt
De onderstaande vergelijking is het oorspronkelijke referentieoverzicht voor dit artikel. Controleer voordat je een ROS-resultaat met methyleenblauw accepteert welke rijen de auteurs hebben ingevuld en welke ze hebben overgeslagen.
| Controle | Wat deze uitsluit | Hoe je deze uitvoert |
|---|---|---|
| Donker versus gedefinieerde belichting | Verwarring tussen redoxeffecten in de grondtoestand en fotochemie | Dezelfde kleurstof, dezelfde matrix, één conditie in het donker, één onder een gemeten lichtdosis |
| Probe plus licht, geen kleurstof | Fotochemie van de probe | Belicht alleen de probe; elk signaal is een artefact dat de achtergrondwaarde vormt |
| Kleurstof plus licht, geen cellen of substraat | Verwarring tussen cellulaire ROS en ROS afkomstig van de kleurstof zelf | Celvrije matrix; stelt vast wat de kleurstof zelf genereert |
| Catalase | Signaal dat niet van peroxide afkomstig is in een Amplex-meting | Het signaal moet dalen; houd er rekening mee dat belichte kleurstof catalase zelf kan beschadigen |
| SOD | Betrokkenheid van superoxide | Een stijging van het Amplex-signaal wijst op superoxide eerder in de reactieketen, niet op het falen van de assay |
| IJzerchelator zoals deferoxamine | Hydroxylradicaalchemie van het Fenton-type | Test of redoxactief ijzer verantwoordelijk is voor het DCFH- of spintrapsignaal |
| Peroxidestandaarden in de volledige matrix | Ongekalibreerde fluorescentie | Bekende toevoegingen van peroxide met een identieke kleurstofconcentratie en optische instellingen |
Hieruit volgt een praktische leesregel. Amplex met peroxidase, gekalibreerd en met een catalasecontrole, levert bewijs over peroxide. DCFDA levert bewijs over niet-specifieke oxidatie van de probe en niets meer. Spintrapping met controles met radicalenvangers levert bewijs over de identiteit van radicalen. Zuurstofopname levert bewijs over flux. Een zin die meer beweert dan de gebruikte assay kan onderbouwen, hoe stellig ook geschreven, is een zin over de probe, niet over de kleurstof. Gerelateerde besprekingen van dosisafhankelijkheid en het hormetische bereik, mitochondriale elektronenstroom, assay-interferentie in gekleurde monsters en artefacten door microscoopbelichting werken elk van deze punten verder uit. Elk punt blijft geldig zodra de bijbehorende voorlopige verwijzing is vervangen.