
Artikkel
Metylenblått og inflammatorisk signalering: inflammasomer, IL-6 og STAT3
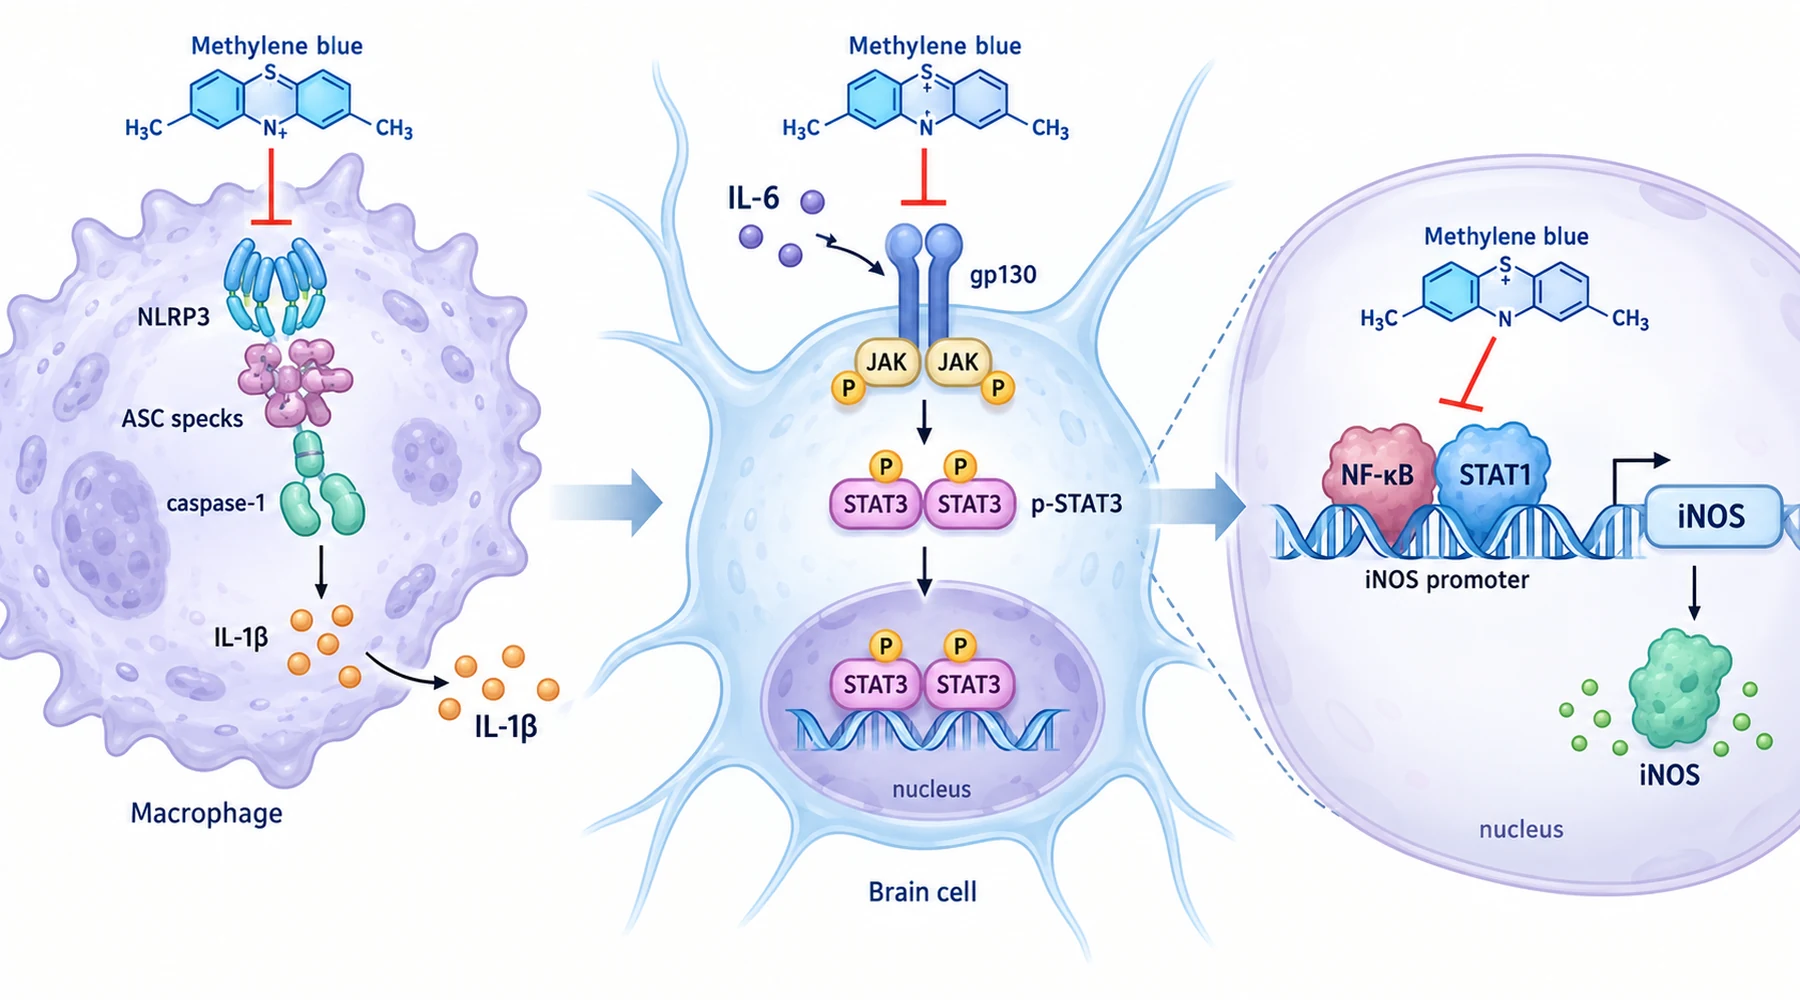
Anta at tre laboratorier rapporterer at den samme blå forbindelsen er betennelsesdempende. Ett viser mindre IL-1beta fra makrofager. Ett viser mindre iNOS-enzym i samme celletype. Ett viser mindre IL-6 i blodet og mindre STAT3-aktivitet i hjernen. Det er fristende å slå de tre sammen til én påstand. En slik sammenslåing tilslører funnene.
Hvert resultat hører til en ulik signaleringsmekanisme med sin egen utløsende faktor, sitt eget dannelsestrinn og sitt eget måleutfall. Metylenblått virker på hver mekanisme på ulike punkter. Om noe av dette forbedrer et helseutfall, er et eget spørsmål som behandles i vår oversikt over metylenblått og betennelse. Denne siden holder seg til signalveiene.
Signalvei 1: inflammasomdannelse og caspase-1
Et inflammasom er et proteinstillas som bygges ved behov inne i en myeloid celle. Delene er en sensor, et adaptorprotein kalt ASC og et effektorenzym kalt caspase-1. Når komplekset er dannet, spalter caspase-1 pro-IL-1beta og pro-IL-18 til formene som skilles ut, og kan utløse pyroptose, en inflammatorisk form for celledød. Sensoren bestemmer typen: NLRP3 reagerer på krystaller og poredannende toksiner som nigericin og ATP, NLRC4 reagerer på bakterielt flagellin, AIM2 reagerer på cytosolisk dobbelttrådet DNA, og den ikke-kanoniske signalveien reagerer på intracellulært lipopolysakkarid.
Aktivering krever to signaler. Signal én er klargjøring: en ligand for en Toll-lignende reseptor driver NF-kB-avhengig transkripsjon av NLRP3 og pro-IL-1beta, slik at delene er til stede. Signal to er kompleksdannelse: en ny utløsende faktor får ASC til å oligomerisere til aggregater, caspase-1 til å spaltes til p20-fragmentet og modent IL-1beta p17 til å frigjøres. Mitokondrielle reaktive oksygenforbindelser og krystallopptak er kjente bidragsytere til signal to for NLRP3.
Makrofagstudien fra 2017 om bred hemming av inflammasomer testet metylenblått ved begge signalene. I benmargsmakrofager fra mus som var klargjort med lipopolysakkarid, utløste nigericin, ATP og mononatriumuratkrystaller hver for seg frigjøring av IL-1beta og caspase-1 samt dannelse av ASC-aggregater. Metylenblått ved 20 til 200 mikromolar reduserte alle tre på en doseavhengig måte uten å drepe cellene. Flagellin og Salmonella for NLRC4, dobbelttrådet DNA og Listeria for AIM2, og transfektert lipopolysakkarid eller levende E. coli for den ikke-kanoniske signalveien viste samme mønster. Forbindelsen alene utløste ikke frigjøring, og kontrollplater viste ingen antibakteriell effekt, så resultatet gjelder vertsresponsen.
Oppstrøms ble tre påvirkninger målt. Mitokondrielt superoksid indusert av rotenon ble redusert med metylenblått, og rotenondrevet frigjøring av IL-1beta ble også redusert. Opptaket av fluorescerende kuler falt, i tråd med redusert fagocytose før registrering av krystaller. En reporter styrt av NLRP3-promotoren med to NF-kB-bindingssteder viste lavere aktivitet med metylenblått, mens en forkortet promotor uten disse stedene ikke reagerte. I et cellefritt reagensrør reduserte metylenblått også aktiviteten til rekombinant humant caspase-1 direkte. Tilsetning av forbindelsen bare under klargjøring eller bare under aktivering reduserte fortsatt frigjøringen av IL-1beta, IL-18 og caspase-1, så begge trinnene er involvert.
Museforsøkene viste tilsvarende selektivitet. En dødelig dose lipopolysakkarid drepte kontrollmusene i løpet av timer, mens metylenblått forbedret overlevelsen; IL-1beta i bukhinnevæsken ble redusert, men IL-6 i samme væske ble ikke det. I en modell for Listeria-peritonitt ble IL-1beta i bukhinnevæsken redusert, mens det totale celleantallet var uendret. Humane THP-1-monocytter oppførte seg som makrofager fra mus for alle fire inflammasomtypene. Et inflammasomresultat forklarer modning av IL-1beta og IL-18, ikke alle cytokiner. Derfor besvarer formen på hjernens immunceller i forsøk med mikroglia og astrocytter også et annet spørsmål enn dannelse av proteinstillaset.
Signalvei 2: iNOS-transkripsjon gjennom binding av NF-kB og STAT1
Induserbar nitrogenmonoksidsyntase, eller iNOS, er knapt til stede i hvile og transkriberes ved behov. Lipopolysakkarid driver dette hovedsakelig gjennom nedbrytning av IkB-alpha, etterfulgt av fosforylering av NF-kB og transport inn i cellekjernen. Interferon-gamma driver det hovedsakelig gjennom Janus-kinasens fosforylering av STAT1, etterfulgt av transport av STAT1 inn i cellekjernen. Hver faktor binder seg deretter til sitt bindingssted på iNOS-promotoren. Enzymaktivitet og geninduksjon er separate kontrollpunkter, og et legemiddel kan virke på ett av dem eller begge.
Studien fra 2015 om iNOS-induksjon i makrofager og mus med endotoksemi plasserte effekten på mRNA-nivå. I RAW 264.7-celler og primære makrofager fra mus reduserte 1 mikromolar metylenblått, gitt 30 minutter før lipopolysakkarid, interferon-gamma eller begge, iNOS-protein og mRNA over 8 til 24 timer, med mindre nitritt i mediet og uten redusert cellelevedyktighet. Hos mus som fikk 25 mg per kg lipopolysakkarid, reduserte en enkeltdose på 5 mg per kg én time tidligere iNOS-protein og mRNA i lunge, lever og hjerte.
Det særegne er hva som ikke endret seg. Nedbrytning av IkB-alpha, fosforylering av NF-kB, fosforylering av STAT1 og opphopning av begge faktorene i cellekjernen forble upåvirket. Avbruddet kom ett trinn senere: kjerneekstrakter viste mindre binding av NF-kB til sitt DNA-element etter lipopolysakkarid og mindre binding av STAT1 etter interferon-gamma. Kromatinimmunpresipitering bekreftet mindre binding av begge faktorene ved iNOS-promotoren inne i cellene. Tumornekrosefaktor alfa, som også bruker NF-kB i sin promotor, ble også redusert. Faktorene ble aktivert og nådde frem, men bandt seg dårlig til mål-DNA-et.
Merk kontrasten til signalvei 1. Dette gjelder faktorers binding til DNA, bruker STAT1 i stedet for STAT3 og måler mRNA, protein og nitritt i stedet for ASC-aggregater og caspase-1-fragmenter. Vår kartlegging av metylenblåtts mål i cellemodeller holder dette transkripsjonsnivået atskilt fra direkte enzymmålinger og mitokondrielle målinger.
Signalvei 3: IL-6 i serum og STAT3-aktivering i vev
IL-6 signaliserer gjennom gp130-reseptorfamilien til kaskaden fra Janus-kinase til STAT3. Fosforylert STAT3 dimeriserer, går inn i cellekjernen og driver inflammatoriske programmer, mens IL-6 selv er et mål for NF-kB. De to danner derfor en tilbakekoblingssløyfe som ofte kalles IL-6–STAT3-aksen. Standardmålingene er IL-6 i serum oppstrøms, forholdet mellom fosforylert og totalt STAT3, og effektorenzymer som iNOS og COX2 nedstrøms.
Musestudien fra 2023 om IL-6 og STAT3 etter lipopolysakkarid målte aksen i flere biologiske rom. Hannmus av stammen C57BL/6 fikk 1 mg per kg lipopolysakkarid daglig i tre dager, med 5 eller 10 mg per kg metylenblått 30 minutter etter hver dose. På dag tre var IL-6 i serum lavere i begge metylenblåttgruppene enn med lipopolysakkarid alene, mens de fleste andre cytokinene i panelet ikke endret seg med behandlingen. Forholdet mellom fosforylert og totalt STAT3 var lavere i hjernebarken, hippocampus og ørehuden, med mindre Iba-1-farging av mikroglia, lavere iNOS og COX2 og delvis redusert vekttap.
To forbehold hører hjemme her. Lavere IL-6 i serum sammen med mindre STAT3-fosforylering i vev er forenlig med modulering av aksen, men identifiserer ikke det primære angrepspunktet. Mindre cytokin oppstrøms, mindre reseptorsignalering eller endret fosfataseaktivitet kan alle gi samme forholdstall. Dessuten er vekt gjennom tre dager med akutt påvirkning en måling på hele dyret, ikke en symptom- eller remisjonsskår. Det gir kontekst utover en blottanalyse uten å gjøre et signaleringsresultat til en behandlingspåstand. Den separate kjemien knyttet til mitokondriell redoksregulering foregår parallelt med denne cytokinmekanismen og bør ikke slås sammen med den.
Sammenligning av signalveier: påvirkningspunkter og måleutfall

| Signalvei | Utløsende faktor i disse artiklene | Hvor metylenblått virker | Måleutfall som endret seg |
|---|---|---|---|
| Inflammasomdannelse | Nigericin, ATP, uratkrystaller, flagellin, DNA, cytosolisk lipopolysakkarid | Mindre transkripsjon under klargjøring, mindre mitokondrielle ROS, mindre fagocytose, mindre ASC-kompleksdannelse, direkte hemming av caspase-1 | Mindre caspase-1 p20, mindre modent IL-1beta og IL-18, færre ASC-aggregater |
| iNOS-transkripsjon | Lipopolysakkarid via NF-kB; interferon-gamma via STAT1 | Mindre binding av NF-kB og STAT1 til promotor-DNA til tross for normal aktivering og transport inn i cellekjernen | Mindre iNOS-mRNA og -protein, mindre nitritt |
| IL-6–STAT3-aksen | Lipopolysakkarid i tre dager hos mus | Lavere IL-6 i serum med mindre STAT3-fosforylering i vev | Lavere forhold mellom pSTAT3 og STAT3 i hjernebark, hippocampus og hud; lavere iNOS, COX2, Iba-1 |
Tabellen utelukker tre ugyldige overføringer. Et resultat for ASC-aggregater beviser ikke et resultat for STAT3. Et resultat for STAT1-binding til iNOS-promotoren beviser ikke et resultat for STAT3, selv om begge proteinene tilhører STAT-familien. Et resultat for IL-6 i serum beviser ikke redusert inflammasomdannelse: i bukhinneforsøket ble IL-1beta redusert, mens IL-6 ikke ble det. Hver rad krever sin egen utløsende faktor og sitt eget måleutfall. Derfor må hver påstand knyttes til nivået som faktisk ble målt, når man leser celle-, dyre- og kliniske studier av metylenblått.
Ingenting av dette fastslår dosering, sikkerhet eller nytte hos mennesker. Lipopolysakkaridmodeller er kontrollerte utløsere for å teste en mekanisme, ikke kopier av kronisk sykdom. Dosering i forbindelse med den utløsende påvirkningen tester forebygging av en indusert endring, ikke reversering av etablert sykdom. Hold denne mekanismebeskrivelsen atskilt fra pasientutfall, og vurder enhver helsepåstand ut fra pasientstudien som ligger bak.