
Член
Метиленското сино како антиоксиданс и прооксиданс: што го менува исходот?
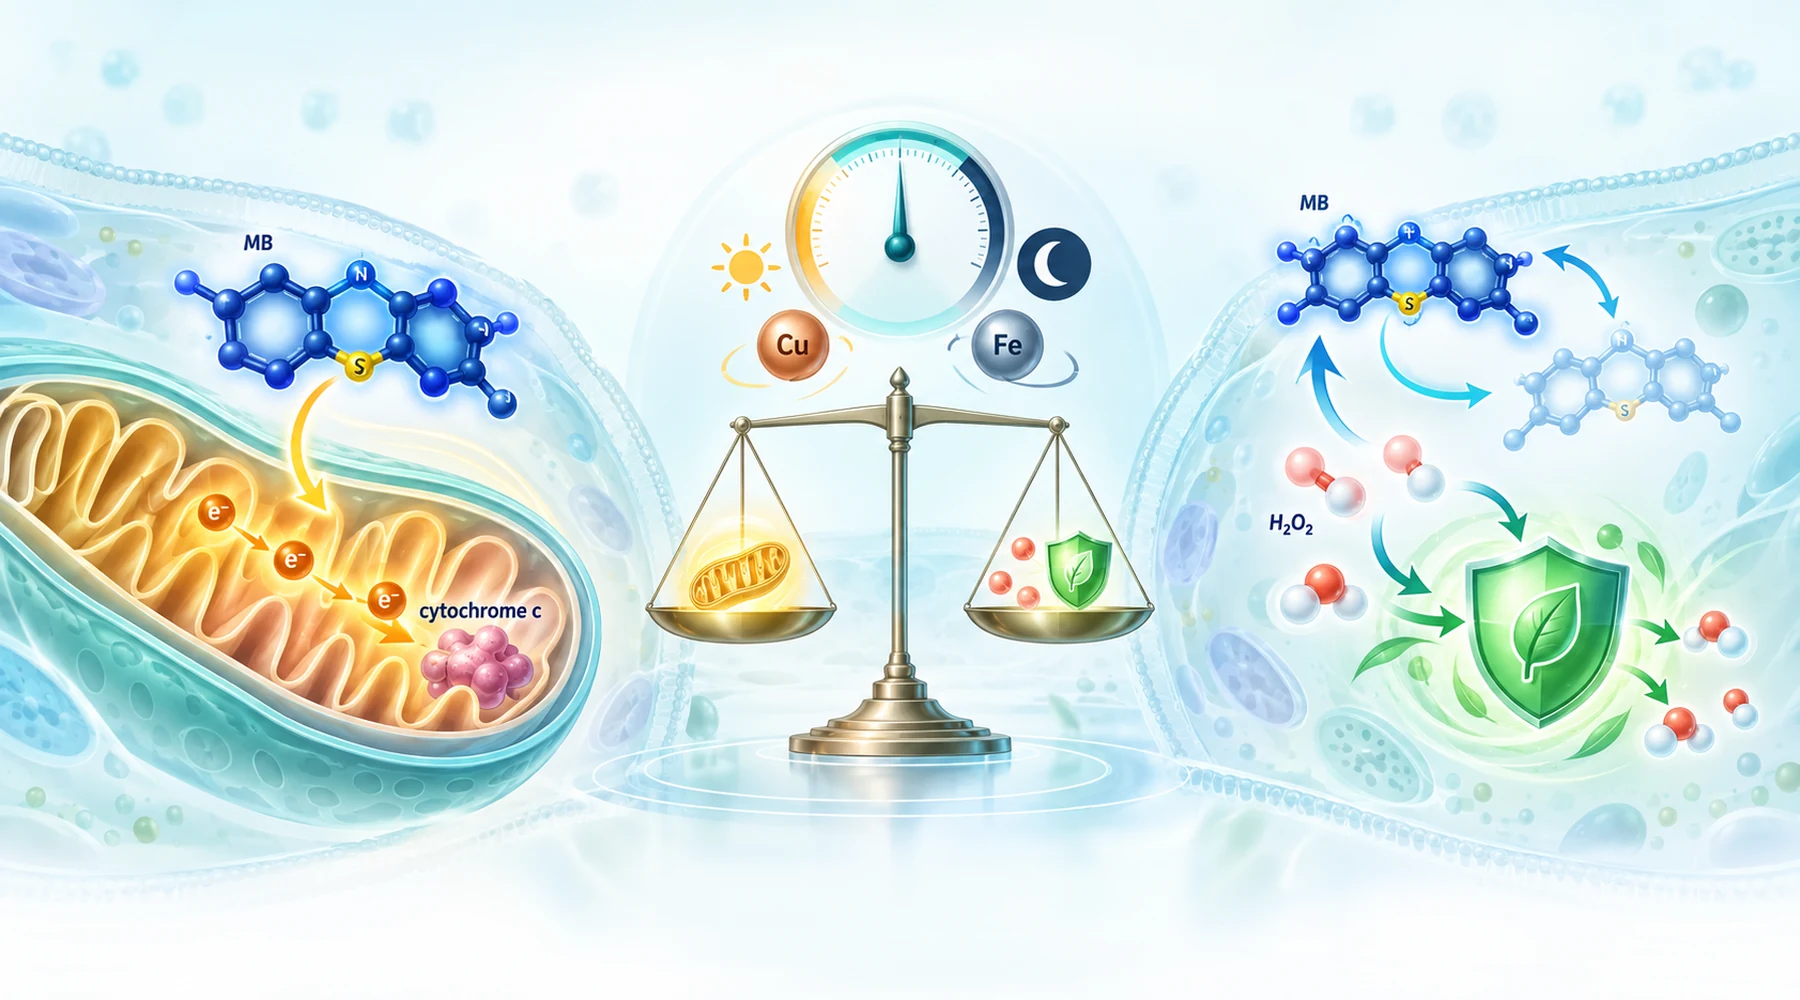
Замислете две лаборатории што ја испитуваат истата сина боја и пријавуваат спротивни резултати. Во првата, изолираните мозочни митохондрии имаат подобра респирација и создаваат повеќе ATP. Во втората, истиот препарат ослободува многу повеќе водороден пероксид. Двата извештаи се точни. Тие го опишуваат истиот циклус гледан од два краја, а забуната почнува кога читателите го сметаат едниот крај за целата приказна.
Грешката е во прашањето која ознака ѝ одговара на молекулата. Метиленското сино е посредник за пренос на електрони, како што во поширок контекст покажува мапата на неговите целни структури во клеточната биологија. Оксидираната боја прима електрони и станува безбојно leucoMB. LeucoMB ги предава тие електрони понатаму и повторно станува сино. Она што го набљудувате зависи од тоа кој ги донира електроните, кој ги прима и дали системот може да го отстрани водородниот пероксид создаден попатно. Прашањето што вреди да се постави никогаш не е дали бојата е антиоксиданс. Прашањето е што условите му дозволуваат на овој посредник да направи.
Циклусот што ги создава двете лица
Во темнина, основниот циклус е краток. NADH, NADPH или носачите во респираторниот синџир ја редуцираат бојата. Потоа редуцираната боја има конкурентни патишта. Може да му пренесе електрони на цитохром c и да го поддржи протокот заобиколувајќи оштетен комплекс, поради што респирацијата и мембранскиот потенцијал делумно се обновуваат при блокада на комплекс I или III. Или може да ги пренесе електроните директно на кислород, со што се регенерира сината форма и се создава водороден пероксид. Бидејќи бојата се регенерира, мала количина може да го повтори овој циклус многупати, постојано трошејќи редукциски еквиваленти и постојано создавајќи пероксид.
Две дополнителни гранки целосно ја менуваат хемијата. Слободниот бакар или железо го претвораат тој пероксид што може да дифундира во многу поразорни локални оксиданти преку реакции од Фентонов тип. Црвената светлина отвора посебна фотохемиска гранка, во која ексцитираната боја пренесува енергија на кислород и создава синглетен кислород, вид детално обработен во објаснувањето на фотохемијата од тип I и тип II. Редокс-циклирањето во темнина, оштетувањето засилено со метали и фотодинамичкото оштетување се три различни механизми што случајно ја делат истата почетна молекула.
Матрица на услови и исходи
Табелата подолу е материјалот што треба да го зачувате. Секој ред прикажува една променлива, насоката во која го поместува исходот и експериментот што стои зад тоа. Позитивно значи заштитен или подобрен измерен показател. Неповолно значи повеќе оксиданти, поголемо исцрпување или поголемо оштетување.
| Услов | Насока на исходот | Што покажал експериментот |
|---|---|---|
| Ниска концентрација, 0.1 до 1 uM, изолирани митохондрии | Позитивна биоенергетика, но и повеќе пероксид | 0.1 uM ја подобрила потрошувачката на кислород во срцевите митохондрии на здрави и дијабетични стаорци; 100 nM до 1 uM делумно ги обновиле ATP, мембранскиот потенцијал и внесувањето калциум во блокирани мозочни митохондрии, додека ослободувањето пероксид се зголемило во секој услов |
| Повисока концентрација, над 5 uM, клетки без гликоза | Неповолен сигнал за оксиданти | Ендотелните клетки оксидирале општа сонда за ROS и губеле редуциран глутатион над 5 uM кога немало гликоза; додавањето гликоза ги спречило двете појави |
| Супстрати за комплекс I (глутамат плус малат) | Повеќе пероксид | Истражувањата и на мозочни и на срцеви митохондрии утврдиле зголемено ослободување пероксид со супстрати поврзани со NADH |
| Сукцинат плус ротенон, срцеви митохондрии, 0.1 uM | Помалку пероксид во тој протокол | Единствениот јасно антиоксидативен резултат за пероксид во овој збир; имајте предвид дека протоколот вклучувал ротенон и друго ткиво, па самиот супстрат не го објаснува резултатот |
| Црвена светлина, 20 uM плус 630 nm | Неповолно оштетување на DNA | Нема значајни лезии на митохондриската DNA во темнина при 20 uM; истата концентрација со црвена светлина го оштетила секој испитан фрагмент |
| Многу висока концентрација во темнина, 100 uM | Неповолно селективно оштетување на DNA | Селективни лезии на митохондриската DNA на секвенци богати со пурини, нагла промена во однос на наномоларниот сигнал за пероксид |
| Бакар или железо плус NADH, DNA во бесклеточен систем | Неповолни оксидативни лезии | Бакарот го насочил оштетувањето кон секвенца на p53 подложна на мутации; железо EDTA предизвикало широко оштетување; каталазата и металните хелатори ги блокирале соодветните патишта; оксидираниот гванин се зголемил |
| Присутна гликоза, интактни клетки | Заштитно ублажување и покрај побрзото циклирање | Гликозата ја зголемила редукцијата на бојата, но го намалила нето-стресот, што е во согласност со снабдувањето со NADPH преку пентозофосфатниот пат за рециклирање на антиоксидансите |
| Клетки збогатени со аскорбат | Мешано: аскорбатот се троши, сигналот од сондата се ублажува | Бојата постепено го оксидирала внатреклеточниот аскорбат дури и во присуство на гликоза, а истовремено делумно ја потиснувала оксидацијата на сондата; заштитните резерви ја платиле цената |
| Животни претходно третирани со ротенон, бојата дадена прва | Позитивен исход во ткивото | Предтретманот со бојата ги намалил лезиите на митохондриската DNA предизвикани од ротенон во средниот мозок на глувци, и покрај зголемувањето на пероксидот во изолирани митохондрии |
Суштината е во образецот што се гледа низ редовите. Создавањето пероксид и биолошката заштита се одделни оски. Еден третман може истовремено да има неповолен резултат на првата и позитивен на втората.
Зошто истата доза дава различни одговори
Концентрацијата го одредува капацитетот за пренос, а не конечниот исход. Ослободувањето пероксид од мозочните митохондрии се зголемувало мерливо од 50 nM нагоре во истражување на интактни мозочни митохондрии, додека за јасно оштетување на митохондриската DNA биле потребни 100 uM во темнина. Тоа е приближно двеилјадикратна разлика меѓу првиот сигнал и генотоксичноста, но не е безбедносна маргина. Крајните показатели, компартментите и времињата на изложување се разликуваат, па бројките означуваат различни појави, а не точки на една крива. Дискусијата за односот доза–одговор го поставува ваквиот јаз меѓу слаб сигнал и големо оштетување во поширокиот контекст на хормезата.
Супстратот одредува каде влегуваат електроните. Изворите на енергија поврзани со NADH ѝ обезбедуваат на бојата изобилство редукциски еквиваленти и за корисниот заобиколен пат и за неекономичната реакција со кислород. Често цитираното резиме дека сукцинатот ја прави бојата антиоксиданс, а глутаматот прооксиданс, оди подалеку од податоците, бидејќи условот со сукцинат за мерење пероксид во срцевата студија содржел и ротенон и користел различно ткиво и доза од мозочното истражување што утврдило зголемен пероксид при секој супстрат и секоја респираторна состојба.
Светлината го менува механизмот, а не само големината на ефектот. Најјасниот контраст во овој збир е меѓу 20 uM во темнина, без мерливо дејство врз фрагментите на митохондриската DNA, и 20 uM под црвена светлина, што ги оштетува сите. Секој што споредува осветлен експеримент со експеримент во темнина споредува фотохемија со редокс-циклирање.
Металите го преобразуваат оксидантот. Без метали, циклусот на бојата во темнина создава пероксид, молекула што може да дифундира и која клетките ја користат и како сигнал. Со достапен бакар или железо, бојата редуцирана од NADH ја поттикнува редукцијата на металот, а редуцираниот метал го активира пероксидот во видови од хидроксилен тип или бакарно-пероксидни видови покрај DNA. Така истражувањето во бесклеточен систем со NADH и метални јони произвело и оштетување селективно за места подложни на мутации и широко оштетување на DNA од истата почетна боја. Начинот на кој компартментот ги регулира металите, а не само бојата, одредува дали оваа гранка е значајна.
Достапноста на изворите на енергија одредува дали клетката може да ја плати цената. Кај ендотелни клетки изложени на 2 до 20 uM боја, отстранувањето на гликозата ја открило оксидативната цена, додека снабдувањето со гликоза ја елиминирало, иако гликозата истовремено ја забрзала редукцијата на бојата. Побрзо циклирање со обезбедени одбранбени ресурси е подобро од побавно циклирање со исцрпена одбрана. Сметајте го за нецелосно секое тврдење за оксиданти што ја изоставува состојбата на гликозата или NADPH.
Ткивото ја одредува биолошката опрема. Ендотелните клетки го регенерираат NADPH преку метаболизмот на гликозата и располагаат со цитозолни резерви на антиоксиданси. Изолираните митохондрии немаат ништо од тоа. Прочистената DNA нема ни механизми за поправка. Резултатот во еден препарат кажува малку за другите, поради што планираната статија за одговорите специфични за ткивото ќе треба да ги разгледува овие системи одделно.
Директното мерење не е исто што и последователната одбрана
Многу текстови спојуваат две нивоа што експериментите ги разграничуваат. Едното прашува колку оксидант се појавил. Другото прашува како одговорила клетката.
Тестовите за пероксид од тип Amplex се најблиску до првото ниво, но дури и тие го прикажуваат нето-протокот, односно создавањето минус разградувањето минус изнесувањето. Студијата на мозочни митохондрии утврдила промени на двете страни: се создавало повеќе пероксид, а дополнително внесена количина пероксид се отстранувала побавно. Подалеку во низата се оксидацијата на глутатионот, потрошувачката на аскорбат, оксидираниот гванин и лезиите на DNA што ја блокираат полимеразата. Секој чекор додава биолошки процеси меѓу оксидантот и измерениот показател.
Антиоксидативните ензими регулирани од Nrf2 и митохондриската биогенеза припаѓаат на второто ниво. Тие се адаптивни програми што може да ги активира благ пероксиден импулс, а авторите на студијата за заштита на мозочните митохондрии го предлагаат токму тој благ стрес како активатор, притоа напоменувајќи дека причинско-последичниот синџир преку Nrf2 се потпира на претходни истражувања, а не на нивна целосна демонстрација. Заштитата што се јавува неколку часа подоцна преку нови протеини не значи дека почетната хемија била антиоксидативна. Тоа значи дека мал прооксидативен настан обезбедил поголема одбрана. Насоките за внимателно читање на ваквите тврдења, вклучувајќи ги ограничувањата на тестовите и разликите меѓу препаратите, се тема на водичот за читање истражувања за метиленско сино.
Зошто тестовите не се согласуваат меѓу себе
Општа сонда како дихидрофлуоресцеин ја прикажува вкупната оксидација на сондата, а не концентрацијата на пероксид. Таа зависи од хемијата на пероксидазите и хемот и може да пропушти зголемување на пероксидот што го регистрира калибриран тест Amplex. Студијата на мозочни митохондрии забележала нагло зголемен пероксид без соодветен сигнал за супероксид, што е предупредување против цитирање кое било единечно тврдење за антиоксидативно дејство засновано на тест со боја. Оптичкото преклопување е оправдано прашање за контролна проверка, бидејќи бојата апсорбира видлива светлина близу до вообичаените ексцитациски и емисиони опсези, но внимателно спроведената студија извршила калибрација со познати количини пероксид, ја намалила изложеноста на ексцитациска светлина со мала промена во сигналот и го потврдила побавното отстранување на пероксидот со посебна електрода. Интерференцијата треба да се провери со контрола, а не автоматски да послужи како причина за отфрлање.
Резултатот за калциумот ја илустрира истата потреба од прецизност. Акутното изложување на бојата не го променило вкупното оптоварување со калциум пред преминот на пропустливоста во срцевата студија, но ја подобрило брзината на внесување калциум во блокирани мозочни митохондрии во студијата на срцеви митохондрии фокусирана на дијабетес. Различни крајни показатели, различни системи, без противречност.
Список за проверка пред да му верувате на заклучокот
Третирајте го секој заклучок за антиоксидативно или прооксидативно дејство како извештај за еден систем и поставете пет прашања. При која концентрација и во кој компартмент. Со кој донор на електрони и кој конкурентен примател. На светлина или во темнина, и при која бранова должина и доза. Со кои достапни метали и со какви обезбедени извори на енергија и резерви на антиоксиданси. И со кој тест, што мери проток на оксиданти, оштетување или адаптивен одговор. Променете кој било одговор и истата молекула може да се премести низ матрицата од заштитна кон штетна, без никаков парадокс.