
Макала
Метилен көгү жана NAD+/NADH: клеткадагы редокс тең салмактуулугун чечмелөө
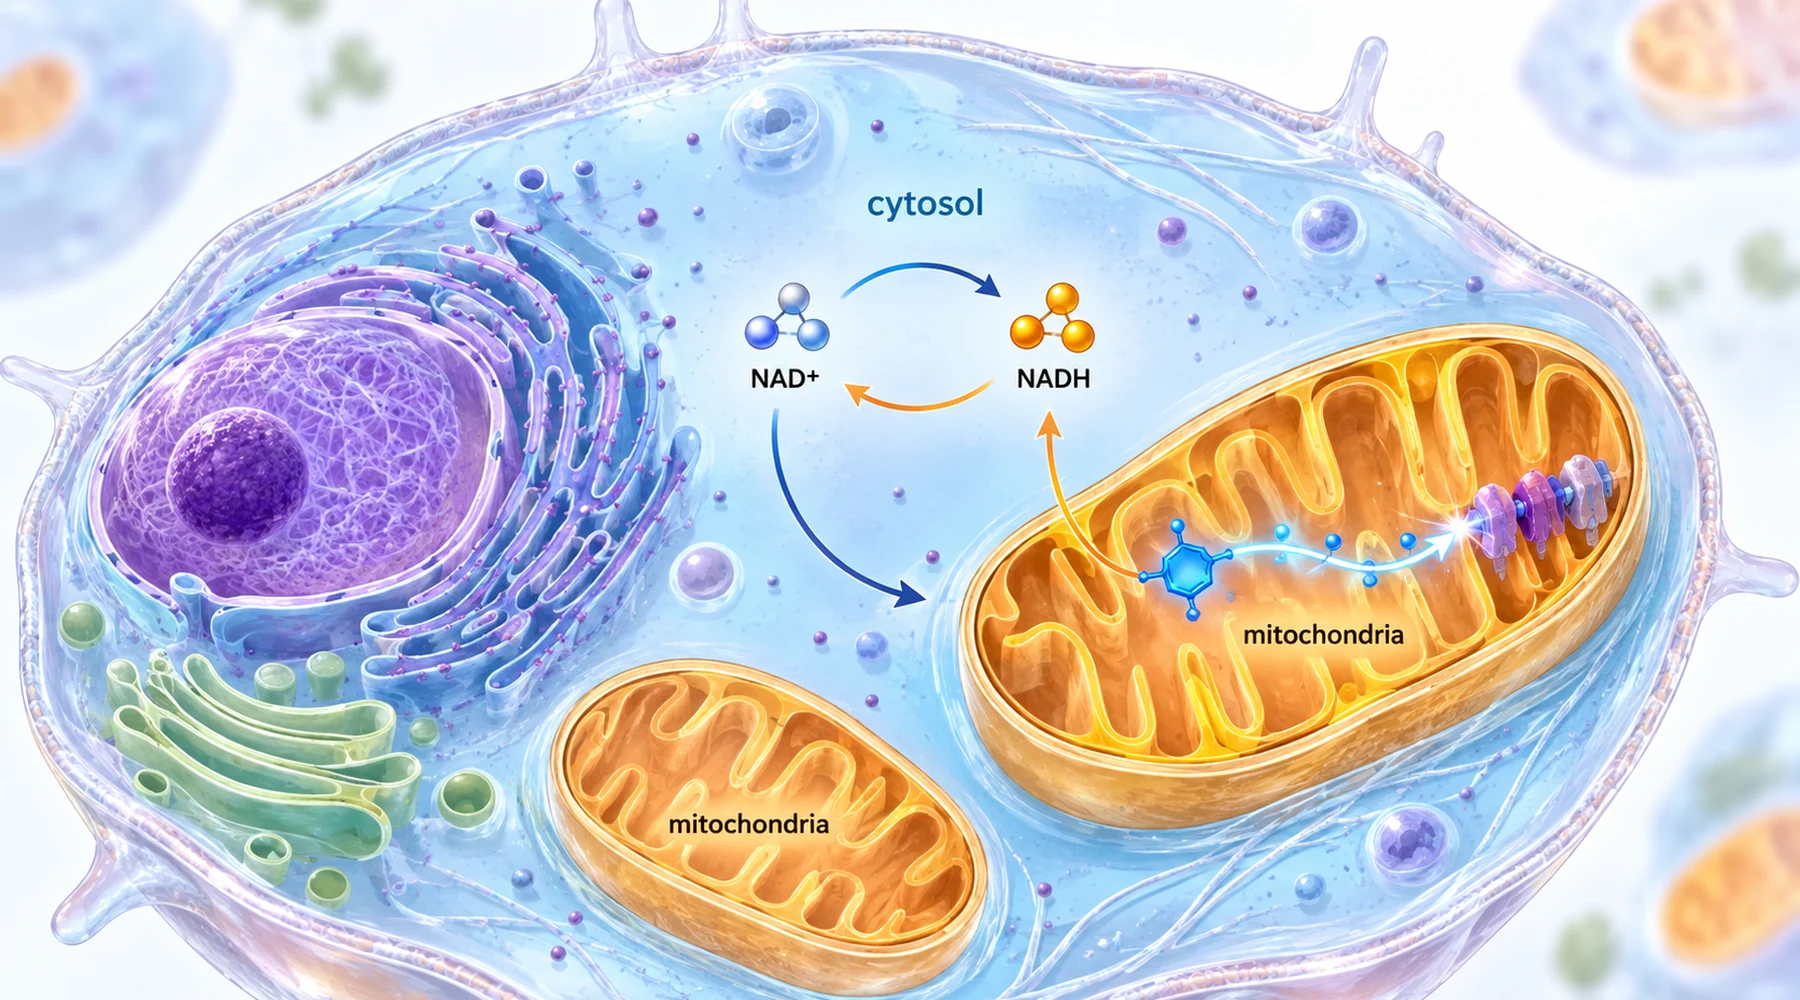
Метилен көгү жана NAD+ тууралуу баяндамалар көбүнчө үч башка ырастоону бир бүтүн катары көрсөтөт. Биринчи ырастоо — NAD+ менен NADH катышы кычкылданган абал тарапка өзгөргөнү. Экинчиси — клеткадагы жалпы NAD көлөмү көбөйгөнү. Үчүнчүсү — энергия өндүрүү калыбына келгени. Булар зат алмашууну калыбына келтирүү жөнүндөгү бир эле баяндын бөлүктөрүндөй угулат. Бирок тажрыйбаларда алар көп учурда бири-биринен ажырайт, ал эми эң кызыктуу жыйынтыктар дал ушул айырмачылыктар байкалган учурларда чыгат.
Бул чаташуу түшүнүктүү, анткени үч чоңдук тең бирдей терминдер менен сүрөттөлөт. NAD+ зат алмашуу реакцияларында электрондорду кабыл алып, NADHга айланат. Андан соң митохондриялар I комплексте NADHны кайра NAD+ка чейин кычкылдантып, бөлүнүп чыккан энергияны ATP синтезине жумшайт. Электрондордун бул жолунун кеңири түшүндүрмөсү митохондриялык электрон ташуу тууралуу макалада, ал эми энергияга байланышкан жагы ATP жана энергия алмашуусу тууралуу макалада берилген. Бирок катыш менен жалпы запас — эки башка нерсе. Катыш учурдагы ташуучу молекулалардын канчасы электрон жүктөлгөн, канчасы жүктөлбөгөн абалда экенин көрсөтөт. Жалпы запас болсо мындай молекулалардын жалпы санын билдирет. Запас өзгөрбөй туруп катыштын жакшырышы жаңы молекулалардын түзүлүшүн эмес, алардын абалдарынын кайра бөлүштүрүлүшүн билдирет.
Эки бөлүк, эки көрсөткүч
Байкалбай калган туура эмес чечмелөөлөргө алып келген дагы бир айырма бар. Цитозолдогу жана митохондриядагы NAD запастары негизинен митохондриянын ички мембранасы менен бөлүнгөн. Ошондуктан ар бир бөлүк өз алдынча салыштырмалуу кычкылданган же калыбына келген абалда боло алат. Бүтүндөй клетка үчүн берилген бир сан бул айырманы жашырат.

Боор боюнча изилдөөлөр бул бөлүктөрдүн айырмасын өлчөөгө мүмкүндүк берди. Лактат менен пируваттын ортосундагы тең салмактуулук цитозолдогу NAD+ менен NADH катышын көрсөтөт, анткени лактатдегидрогеназа бул эки жупту бири-бирине байланыштырат. 3-гидроксибутират менен ацетоацетаттын ортосундагы тең салмактуулук ушундай эле байланыш аркылуу митохондриядагы катышты көрсөтөт. Келемиштерге этанолду узак убакыт берүү боюнча изилдөөдөгүдөй эки жуп тең тез тоңдуруп бекитилген ткандан өлчөнгөндө, бир боордон эки редокс көрсөткүчү алынат. Бир кошулма алардын бирин экинчисине караганда көбүрөөк өзгөртүшү мүмкүн.
Метилен көгү бул системада отун катары эмес, электрон ташуучу катары иштейт. Ал I комплекстин жанында NADHдан электрондорду кабыл алып, калыбына келген абалга өтөт, андан соң аларды электрон ташуу жолунун кийинки бөлүгүндөгү цитохром c сыяктуу ташуучуларга берет. Жалпы натыйжа — NADHнын кадимки жолду толук басып өтпөстөн кычкылданышы. Бул механизм анын эмне үчүн кызыгуу туудурарын да, мүмкүнчүлүгүнүн чегин да түшүндүрөт: ал ашыкча калыбына келген абалдан жаралган тыгынды азайта алат, бирок бузулган комплексти кайра түзбөйт жана жаңы NAD молекулаларын синтездебейт.
Беш изилдөө, жыйынтыктардын ажырашынын бир үлгүсү
Төмөнкү таблица беш изилдөөнү ткань, редокс көрсөткүчү, энергия көрсөткүчү жана иш жүзүндө эмне калыбына келгени боюнча салыштырат. Акыркы эки мамычаны чогуу окуңуз. Макаланын маңызы дал ушул жупта.
| Ткань жана жабыркатуучу таасир | Метилен көгү менен алынган редокс көрсөткүчү | Энергия жана сигналдык көрсөткүч | Функциялык натыйжа |
|---|---|---|---|
| Келемиштин боору, этанол камтылган узак мөөнөттүү рацион | Цитозолдогу жана митохондриядагы NAD+/NADH катыштары негизинен калыбына келген; глицерол 3-фосфат нормалдашкан | ATP этанолдон да, дарылоодон да өзгөргөн эмес; кеч өлчөө учурунда боёк менен ATP бир аз төмөндөгөн | Май басуу өзгөргөн эмес; липиддер менен триацилглицерол жогору бойдон калган |
| Гепатоциттер жана майы көп рациондогу чычкандын боору | Клеткаларда жана боордо NAD+/NADH катышы жана NAD+ көлөмү жогорулаган | SIRT1 жогорулаган, PGC-1alpha деацетилденген, митохондриялык ДНК жана кычкылтекти пайдалануу көбөйгөн, AMPK активдешүүсү SIRT1ге көз каранды болгон | Боордо майдын топтолушу жана стеатогепатит азайган |
| Диабеттүү келемиштин жүрөгү | Бөлүнүп алынган митохондрияларда субстрат кычкылданганда NADH/NAD+ катышы төмөндөгөн | SIRT3 активдүүлүгү жогорулаган; 34 белоктун 83 участогунда лизиндин ацетилдениши азайган | Жүрөктүн көлөмдөрү жана чыгаруу фракциясы жакшырган; I комплекстин кемтигинин өзү оңдолгон эмес |
| AIF жетишсиз чычкандын торчосу жана ротенон менен иштетилген фоторецептор клеткалары | Клеткаларда NADH/NAD+ катышы нормалдашкан; кычкылдануу стресси азайган | Клеткалардагы ATP жетишсиздиги оңдолгон эмес; митохондриялык стресс жолдорунун активдүүлүгү басаңдаган | Торчонун калыңдыгы жана фоторецептор маркерлери сакталган; клеткалардын жашап калуусу жакшырган |
| Адамдын жана келемиштин Ахилл тарамышы, кычкылданткычтан жана коллагеназадан жабыркоо | NAD+ тең салмактуулугу жана жалпы NADдын химиялык абалы контролдук деңгээлге жакындаган | Калыбына келүү болгон учурларда ATP жогорулап, ROS азайган | I комплекс түз бөгөттөлгөн учурдан тышкары матрикс маркерлери жакшырган; бөгөттөлгөн учурда химиялык көрсөткүчтөр өзгөргөн, бирок ткань жакшырган эмес |
Редокс көрсөткүчтөрүнүн оңдолушу тканды калыбына келтирбеген учурлар
Бул топтогу эң эски изилдөө дагы эле эң олуттуу эскертүү болуп саналат. Этанол энергиянын 36 percent үлүшүн түзгөн рацион менен багылган келемиштерде цитозолдогу жана митохондриядагы NAD+/NADH катыштары төмөндөгөн. Бул эки көрсөткүч жуп аркылуу өлчөнгөн, ал эми рационго күнүнө ар бир kg үчүн болжол менен 42 mg метилен көгүн кошуу бул өзгөрүүлөрдүн көбүн алдын алган. Ошентсе да кеч өлчөө учурунда боордогу триацилглицерол боёк берилгенине же берилбегенине карабастан болжол менен үч эсе көбөйгөн, ал эми гистологияда боор бөлүкчөлөрүнүн борборунда бирдей май топтолушу байкалган. Авторлор ыңгайсыз тыянакты түз айтышкан: этанолдун кычкылданышы менен коштолгон редокс өзгөрүүсү өзүнөн өзү боордун май басышын пайда кылбайт. Оңдолгон катышты оңдолгон орган деп эсептеген окурман бул макаланын жыйынтыгын туура эмес берет. Бирдей көлөмдө азык алган контролдук топторду жана мас абалдын эң күчтүү учурунда, түн ортосунда үлгү алууну камтыган толук тажрыйба схемасы этанолдун боорго таасири боюнча изилдөөдө берилген.
Муну майы көп рациондогу боор боюнча иш менен салыштырыңыз: анда ушундай эле катыш өзгөрүүсү ткандын чыныгы жакшырышы менен коштолгон. Гепатоциттерде жана ооз аркылуу берилгенден кийин чычкандын боорунда метилен көгү NAD+/NADH катышын жогорулаткан. Сигналдык чынжыр кадам сайын изилденген: SIRT1 жогорулаган, PGC-1alpha деацетилденген, митохондриялык биогенез маркерлери жана кычкылтек керектөө көбөйгөн, андан соң AMPK, CPT-1 жана PPARalpha ишке кирген. AMPK активдешүүсү SIRT1ге көз каранды экени көрсөтүлгөн. Майы көп рациондогу чычкандардын боорунда май азыраак топтолгон. Сунушталган түшүндүрмө боюнча, бул жерде редокс өзгөрүүсү химиялык тең салмактуулукту жөн гана оңдобостон, гендерди жөнгө салуучу окту ишке киргизген. Бул боордогу SIRT1 жана AMPK боюнча изилдөөдө кеңири баяндалган. Өлчөөлөрдүн түрү этанол изилдөөсүндөгүдөй, бирок ткань боюнча жыйынтык карама-каршы. Айырма катыштын өзүндө гана эмес, андан кийинки жолдо.
Жүрөк жана торчо: сиртуиндер, ацетилденүү жана ATP калыбына келбестен сакталуу
Диабеттүү жүрөк боюнча изилдөө редокс өзгөрүүсүн башка сиртуин аркылуу белоктордун ацетилденишине байланыштырат. Диабеттүү митохондрияларда зат алмашуу ферменттериндеги лизин ашыкча ацетилденген болот. Бул субстраттарды алмаштырып пайдалануу ийкемдүүлүгүнүн төмөндөшү менен байланыштуу. Күнүнө ар бир kg үчүн 10 mg метилен көгү берилгенде, бөлүнүп алынган митохондрияларда 6дан 18 micromolar чейинки концентрацияларда NADHнын кычкылданышы дозага жараша жеңилдеген, SIRT3 активдүүлүгү жогорулаган жана ацетилденүү кеңири азайган. Ошол эле учурда I комплекстин негизги бузулушу сакталса да, жүрөктүн көлөмдөрү жана чыгаруу фракциясы жакшырган. Макалада башка адабияттардагы дозага байланышкан өзгөчөлүк ачык айтылат: төмөн концентрациялар электрон ташуучу ролду колдойт, ал эми жогорураак концентрациялар электрондорду натыйжасыз жолго бурушу мүмкүн. Демек, таасир бир багытта үзгүлтүксүз өзгөрбөстөн, гормезистик мүнөздө болот. Протеомдук талдоо жана жүрөктөгү өлчөөлөр диабеттүү жүрөктөгү ацетилденүү боюнча изилдөөдө берилген. Мунун артындагы кычкылдануу стрессине байланышкан түшүндүрмө кычкылдануу стресси жана ROS көзөмөлү темасында каралат.
Торчо боюнча изилдөө бул ажырымды эң ачык көрсөтөт. I комплекстин чогулушунда кемтикке алып келген AIF жетишсиздиги бар Harlequin чычкандарында метилен көгү торчонун калыңдыгын, фоторецепторлордун сырткы сегменттерин жана таякча, конусча, Мюллер жана ганглиоздук клеткалардын маркерлерин сактаган. Ротенон менен иштетилген 661W фоторецептор клеткаларында боёк 15 micromolar концентрациясында NADH менен NAD+ катышын нормалдаштырып, кычкылтектин реактивдүү түрлөрүн азайткан. Бирок жашап калууну жакшырткан концентрацияларда ATP төмөн бойдон калган. Түзүлүш жана жашап калуу энергия калыбына келбестен сакталган; муну менен бирге митохондриядагы туура бүктөлбөгөн белокторго жооп жана митофагия басаңдаган. Бул жыйынтык боёкту энергияны калыбына келтирүүчү зат катары эмес, ашыкча калыбына келген абалдан жаралган жана кычкылдануу стресстерин азайтуучу зат катары кароого түрткү берет. Бул торчонун фоторецепторлорун коргоо боюнча изилдөөдө документтештирилген.
Тарамыш: химиялык көрсөткүчтөр өзгөрүп, ткань өзгөрбөгөн тажрыйба
Ахилл тарамышы боюнча иште эки үлгү тең бир макаланын ичинде бар, ошондуктан аны шашпай окуу керек. Ар бир тажрыйба бутагынын толук талдоосу 2026-жылдагы Ахилл тендинопатиясы боюнча талдоодо берилген. Оорулуу тарамышта NAD+ азайганы, NAD+ менен NADH катышы төмөн болгону, I комплекстин маркерлери начар болгону, ATP азайганы жана коллагендин түзүлүшү бузулганы байкалган. Метилен көгү келемиштен, адамдын эксплантынан жана клеткалардан даярдалган үлгүлөрдө NADдын химиялык абалын жана ATPни калыбына келтирип, матрикс маркерлерин жакшырткан.
Андан кийин эки кийлигишүү жасалган. I комплекс ротенон менен бөгөттөлгөндө, боёк NAD+тын химиялык абалын жана ATPге байланышкан көрсөткүчтөрдү дагы эле сактаган, бирок кычкылданткыч жүктү азайта алган эмес, коллаген тең салмактуулугун калыбына келтирген эмес жана жашоого жөндөмдүүлүктү сактаган эмес. AIF экспрессиясы азайтылганда, I комплекстин түзүмдөрү дары менен бөгөттөлбөстөн, жетишсиз түзүлгөн шартта, боёк кеңири калыбына келтирүү таасирин көрсөткөн: NAD тең салмактуулугу, кычкылдануу стресси, мембрана потенциалы жана коллаген маркерлери жакшырган. Мындан чыккан сабак так. I комплекс бөгөттөлсө да, NAD көрсөткүчүнүн жакшырышын камсыз кылууга болот, бирок бул препаратта ткандын калыбына келиши иштей алган I комплекс жолуна көз каранды болгон. Бул учурда катыштын өзгөрүшү зарыл, бирок жетиштүү эмес. Бул ой тарамыштагы редокс боюнча изилдөөдө кеңири өнүктүрүлгөн.
Редокс тууралуу кийинки ырастоону кантип окуу керек
Үч текшерүү көпчүлүк туура эмес чечмелөөлөрдөн сактайт. Биринчиден, катыш кайсы бөлүккө тиешелүү экенин жана аны кайсы көрсөткүч жуп бергенин сураңыз. Цитозолдогу лактат менен пируваттын катышынын жыйынтыгы митохондриялык матрикс жөнүндө түз маалымат бербейт. Экинчиден, макалада катыштын өзгөрүшүбү, жалпы запастын көбөйүшүбү же ATPнин калыбына келиши баяндалганын тактап, ар бирин өзүнчө жыйынтык катары караңыз. Үчүнчүдөн, эмне бузулган бойдон калганын сураңыз: бул макалаларда майдын топтолушу, I комплекстин кемтиги же ATP жетишсиздиги оңдолбогон учурлар чыныгы редокс жакшырышы менен катар кездешет.
Мунун эч бири дозалоо боюнча колдонмо эмес. Беш изилдөөнүн баары жаныбарларда, клеткаларда же ткань препараттарында жүргүзүлгөн жана көзөмөлдөнгөн жабыркатуучу таасирлер колдонулган: этанол камтылган суюк рациондор, стрептозотоцин менен пайда кылынган диабет, I комплекстин генетикалык кемтиктери, ротенон, пероксид, коллагеназа. Лабораториялык идиштердеги концентрацияларды жөн гана карап туруп ооз аркылуу кабыл алынуучу дозаларга айландырууга болбойт, ал эми бул макалаларда бир да адам редокс тең салмактуулугу үчүн метилен көгүн кабыл алган эмес. Редокс фармакологиясы жана дозалоо үчүн жалпы тыянак ар кандай протоколго караганда тар, бирок пайдалуураак: метилен көгү NADHны кычкылдантып, өлчөнгөн катышты өзгөртөт; айрым ткандарда сиртуиндер бул өзгөрүүнү деацетилденүүгө жана зат алмашуунун кайра программаланышына айландырат; ал эми ткандын андан ары жакшырышы боёк алмаштыра албаган түзүмдөргө көз каранды.