
Макала
ДНК менен РНКны боёодо метилен көгүн колдонуу: гелдер жана мембраналар
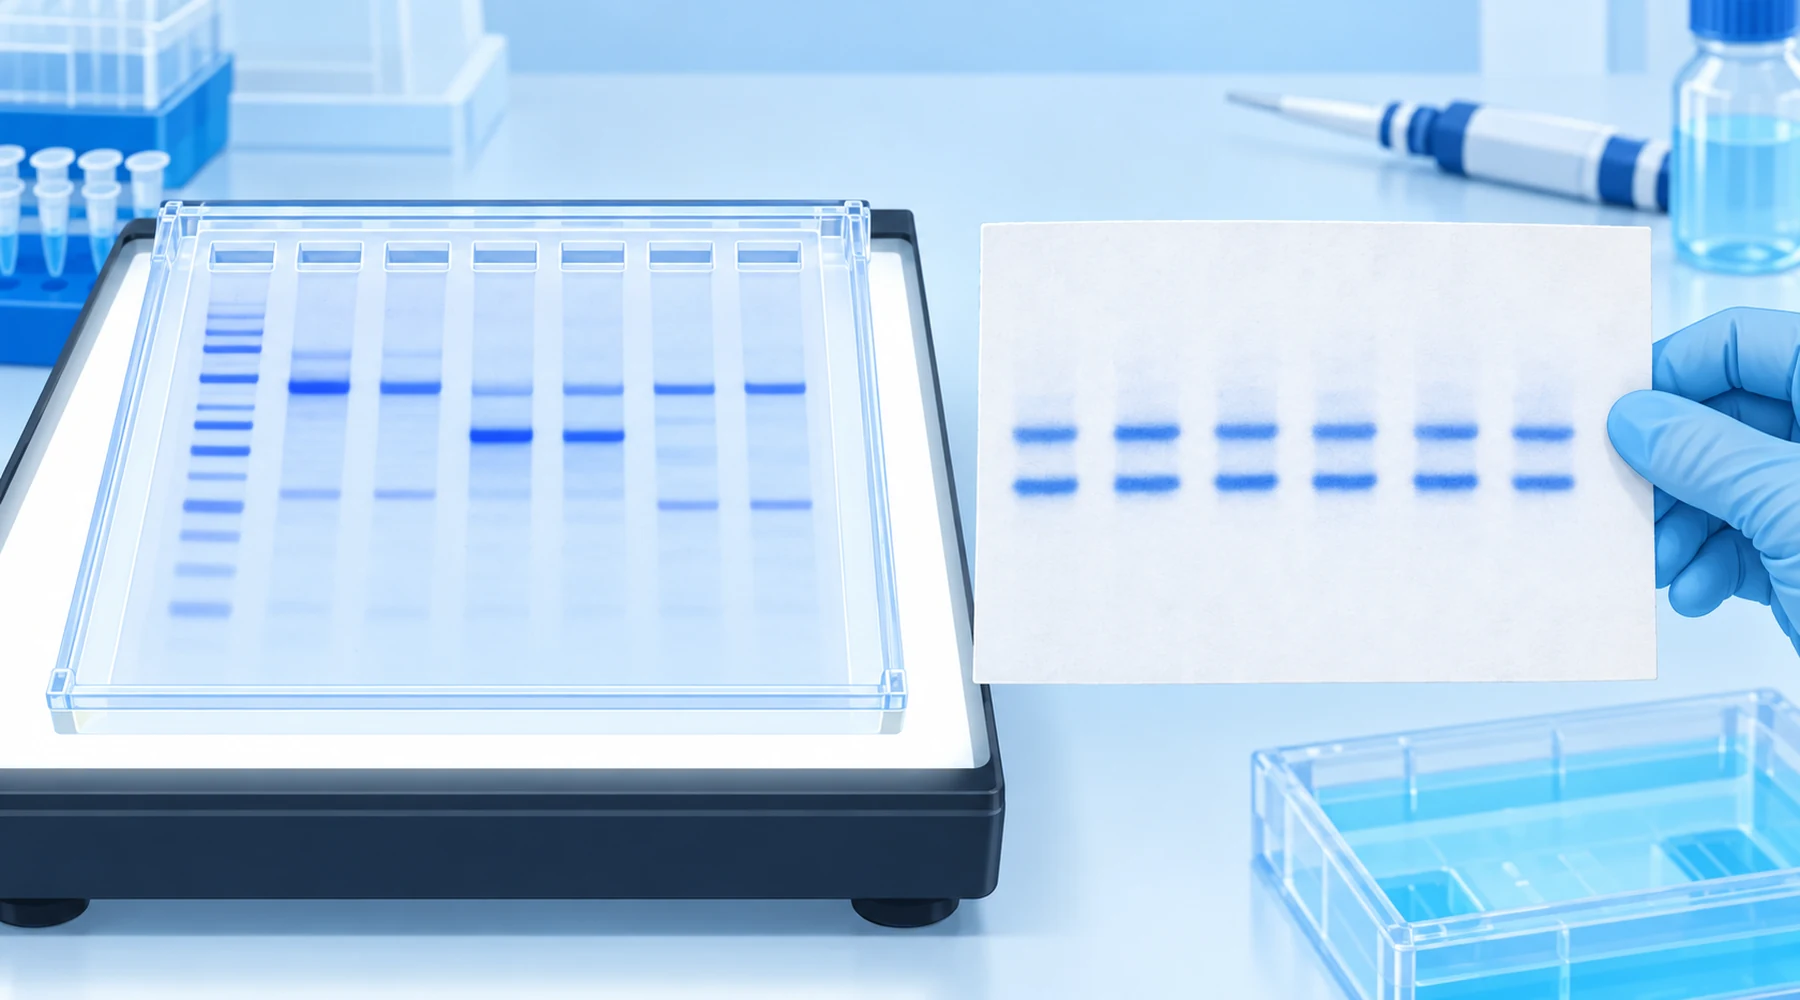
Студент агароза гелинде электрофорез жүргүзүп, аны метилен көгү менен боёйт, бирок ачык тилке күтүлгөн жерден эч нерсе көрбөйт. Коңшу жумуш ордунда постдок ошол эле көк боёк куюлган бөтөлкөнү колдонуп, Northern мембранасын боёйт да, үч мүнөттө так рибосомалык тилкелерди алат. Студент гель менен жүргүзүлгөн иш ийгиликсиз болду деген тыянак чыгарат. Бирок гель менен иштөөдө ката болгон эмес. Бул эки иштин максаты ар башка болгон, ошондуктан бир эле боёк аларда ар башка сезгичтик, ар башка фон жана кийинки этаптар үчүн ар башка эрежелер менен натыйжа берет.
ДНК менен РНКны метилен көгү менен боёонун химиясы бирдей, бирок максаты башка. Гелде боёк көзөнөктүү матрицанын ичинде канча нуклеин кислотасы бар экенин көрсөтөт. Мембранада болсо көчүрүү ийгиликтүү болгонун жана үлгүлөр жолчолорго бирдей өлчөмдө жүктөлгөнүн көрсөтөт. Бул айырма түшүнүктүү болгондо, протоколдор, аныктоо чектери жана шайкештик чектери да өз ордуна келет.
Кыска жооп
Метилен көгү — нуклеин кислоталары менен коваленттик эмес жана кайтарымдуу түрдө байланышкан жалпак катиондук боёк. Байланышуу фосфатка электростатикалык тартылуу, негиз жуптарынын арасына кирүү жана кичине оюк менен байланышуу аркылуу жүрөт. Мында кайтарымдуулук негизги мааниге ээ. Тилкелерди боёп, көрүнүүчү жарыкта көрүп, сүрөткө тартып, андан соң клондоо, гибриддештирүү же зонд менен кайра текшерүү үчүн боёкту кетирүүгө же үлгүнү тазалоого болот.
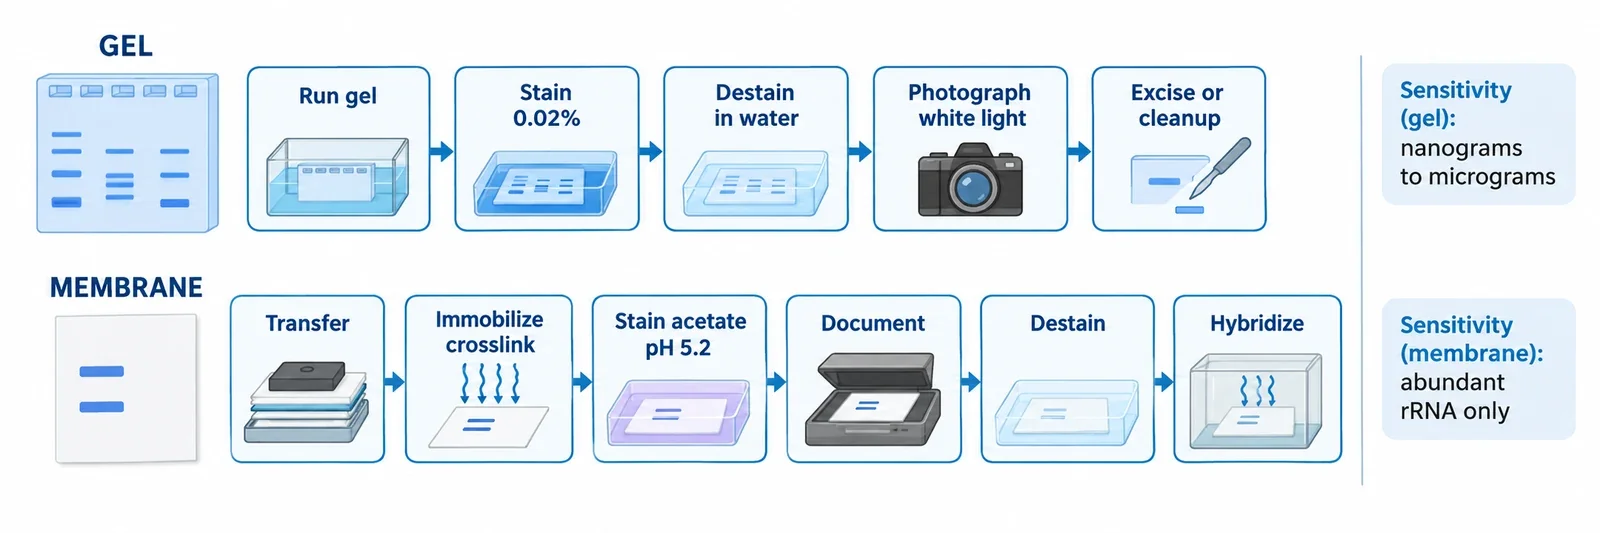
Кош чынжырлуу ДНКны агароза гелинде метилен көгү менен боёонун стандарттуу ыкчам рецепти — суудагы 0.02 пайыз w/v (ар бир mL үчүн 200 микрограмм), болжол менен 15 мүнөт боёо жана андан кийин болжол менен 15 мүнөт сууда боёкту кетирүү; көрүү үчүн ак жарыктуу жарыктандыргыч колдонулат. Мембраналар үчүн классикалык Northern блот рецепти — pH 5.2 чамасындагы натрий ацетатында 0.02–0.04 пайыз боёк, көчүрүү жана бекитүүдөн кийин бир нече мүнөт боёо, андан соң суу менен чайкоо жана гибриддештирүүгө чейин боёкту толук кетирүү. Сезгичтиги чектелүү: жакшы шарттарда гелдин ар бир тилкесинде ондогон же жүздөгөн нанограмм, ал эми этият баалаган колдонмолордо 0.5–1 микрограмм көрсөтүлөт. Бул этидий бромиди жана SYBR боёкторунун чектеринен бир нече чоңдук тартибине жогору. Мембраналарда өзүнчө бир транскрипт үчүн пайдалуу аныктоо чеги жок, анткени боёк негизинен көп өлчөмдө болгон рибосомалык РНКны жана жүктөлгөн жалпы материалды көрсөтөт. Бул рецепттердин эч биринде чекене сатылган кошумчанын эритмесин колдонбоңуз. Текшерилип ырасталган ыкмалар аналитикалык тазалыктагы боёкту, курамы так белгиленген буферлерди жана РНК менен иштегенде RNase жок шарттарды талап кылат.
Байланышуу кандай жүрөт жана кайсы жерде жаңылыш түшүнүк жаралат
Пайдалуу модель үч бөлүктөн турат. Биринчиден, оң заряддуу шакекче системасы терс заряддуу фосфаттык негизге тартылат. Спектроскопиялык изилдөөлөр туз аз болгондо ушул электростатикалык таасир үстөмдүк кыларын көрсөтөт. Ал эми моделдөө жана молекулалык динамика кош чынжырлуу ДНК үчүн негиздердин арасына кирүүнү жана кичине оюк менен байланышууну туруктуу байланышуу жолдору катары көрсөтөт. Бул метилен көгүнүн ДНК менен байланышуусун спектроскопиялык изилдөөдө жалпыланган. Экинчиден, GCге белгилүү бир артыкчылык бар: моделдөө CpG жана GpC кадамдарын артык көрөт, ал эми метилен көгүнүн негиздердин арасына кирүүдөгү артыкчылыктары жөнүндөгү изилдөөдө эксперименттер GCге бай дуплекстер менен көбүрөөк байланышуу бар экенин билдирген. Бирок AT дуплекстери да байланышат. Кадимки боёо белгилүү бир ырааттуулукка гана мүнөздүү эмес. Үчүнчүдөн, бир чынжырлуу ДНК жана РНК негизинен электростатикалык таасирлер жана жеткиликтүү негиздер менен дуплекстик аймактардагы катмарлануу аркылуу байланышат. Ошондуктан боёлуунун күчү узундукка, ырааттуулукка жана экинчилик түзүлүшкө жараша өзгөрөт.
Мындан эки натыйжа чыгат. Байланыш коваленттик эмес болгондуктан, боёк жуулуп кетет. Полиакриламиддеги тилкелер атайын бекитилбесе, тез өчөт. Кадимки боёо убактылуу болгондуктан, туруктуу бекитүүнүн өзүнчө варианты иштелип чыккан; аны Soto жана Draper PAGE гелдери үчүн сүрөттөгөн. Боёк фотосенсибилизатор болгондуктан, кычкылтек бар шартта боёлгон ДНКны узак убакыт күчтүү жарык менен жарыктандыруу гуанинди кычкылдантып, акыры чынжырларда бир чынжырлуу үзүлүүлөрдү жаратышы мүмкүн. Бул механизм метилен көгү менен сенсибилизацияланган гуаниндин кычкылдануусу жөнүндөгү эмгекте кеңири баяндалган. Ак жарыкта кыска убакыт көрүү этидий бромиди колдонулган классикалык ыкмалардагы белгилүү UV зыяндан сактайт. Бул үлгүнү андан ары колдонуу үчүн бөлүп алууда чыныгы артыкчылык болуп саналат. Көрүнүүчү жарык жумшагыраак, бирок зыянсыз эмес. ДНК клондоо үчүн колдонулса, жарыктандыруу убактысын кыска кармаңыз. Бул этияттыктын артындагы фотохимия жөнүндө кененирээк маалымат үчүн метилен көгүнүн фотохимиясындагы эки жолду караңыз. Кычкылданган форма эмне үчүн байланышарын, ал эми калыбына келтирилген форма эмне үчүн байланышпай турганын түшүндүргөн редокс жуп жана заряд абалдары тууралуу метилен көгүнүн түзүлүшү менен касиеттеринин химиясын караңыз.
Биринчи милдет: гелдердин ичин боёо
Гелди боёо бир суроого жооп берет: бул тилкеде көз менен көрүүгө жетиштүү нуклеин кислотасы барбы? Эң жакшы изилденген учур — агарозадагы кош чынжырлуу ДНК. Flores жана кесиптештеринин метилен көгү менен гелди боёо боюнча баштапкы ыкмасы 1 пайыз агарозада 0.02 пайыздык ыкчам протоколду ырастап, андан кийин ДНКны ийгиликтүү бөлүп алууга жана клондоого болорун көрсөткөн. Ушул эле жеткирүүчүнүн протоколу IBI Scientific компаниясынын метилен көгү боюнча өнүм барагында берилген; анда мембрана үчүн 0.04 пайыздык рецепт менен гель үчүн ыкчам вариант катар көрсөтүлгөн.
Практикалык иш тартиби:
- Гелде электрофорезди кадимкидей жүргүзүңүз. Өзгөртүлгөн ыкма үчүн көчүрүү же ажыратуу жөндөмү текшерилип ырасталбаса, боёону электрофорез учурунда эмес, андан кийин жүргүзүңүз.
- Дистилденген суудагы 0.02 пайыз w/v метилен көгүнө малып, акырын чайкап, болжол менен 15 мүнөт кармаңыз.
- Матрицанын фондук түсү басаңдап, тилкелер даана көрүнгөнгө чейин сууну бир нече жолу алмаштырып, жалпы болжол менен 15 мүнөт боёкту кетириңиз.
- Ак жарыктуу жарыктандыргычта дароо сүрөткө тартыңыз.
Агароза менен полиакриламиддин жүрүм-туруму айырмаланат. Агароза матрицада боёкту кармап калат, ошондуктан боёкту кетирүү жай этап болуп саналат. Жука полиакриламид гелдери тез боёлот, бирок боёкту да тез жоготот. Бул тилкени андан ары колдонуу үчүн кесип алууну жеңилдетет, бирок архивдик жазууларды сактоого тоскоол болот. Полиакриламиддеги синтетикалык олигонуклеотиддердин ордун ошол эле 0.02 пайыздык рецепт менен, суу менен кайра-кайра жууп, 20–30 мүнөттө аныктоого болот. Бул Current Protocols үлгүсүндөгү калыптанган PAGE ыкмаларына ылайык келет. Андан ары колдонуу үчүн бөлүнүп алынуучу олигонуклеотиддерди бир нече саат бою суюлтулган TBEде болжол менен 0.0002 пайыздык өтө суюк варианттар менен боёо жөнүндө билдирүүлөр бар, бирок далилдердин негизи алсызыраак.
ДНК менен РНКнын айырмасы маанилүү. Кош чынжырлуу ДНК эң күчтүү түзүмдүү байланышууну берет. РНК жана бир чынжырлуу ДНК да боёлот, бирок алсызыраак жана натыйжасы азыраак болжолдонот. Формальдегид камтыган агароза РНК гелдеринде көпчүлүк лабораториялар гелдин ичинде көк боёк менен боёону өткөрүп жиберип, адегенде РНКны мембранага көчүрүп, андан кийин ошол жерден боёйт. Мындай кадам гелдеги алсыз сигналдын ордуна мембранадагы даанараак сигналды жана жүктөөнүн жазуусун берет.
Экинчи милдет: мембраналарды боёо
Мембрананы боёо башка суроого жооп берет: көчүрүү ийгиликтүү болдубу жана жолчолорду салыштырууга болобу? Классикалык колдонуу — Herrin жана Schmidtтин кайтарымдуу Northern блот боёосу. Баштапкы вариантта pH 5.0 болгон 50 mM натрий ацетатындагы 0.04 пайыздык боёк менен 2–3 мүнөт боёп, суу менен чайкашкан; гибриддештирүүгө чейин боёк SSPEдеги суюлтулган SDS менен кетирилген.
Кеңири колдонулган заманбап вариант төмөнкүдөй жүргүзүлөт:
- РНКны же денатурацияланган ДНКны нейлонго же нитроцеллюлозага көчүрүңүз. Андан соң боёо учурунда үлгү жоголбошу үчүн UV аркылуу кайчылаш байланыш түзүп же ысытып бекитиңиз.
- Милдеттүү эмес, бирок кеңири колдонулат: мембрананы 5 пайыздык уксус кислотасында болжол менен 15 мүнөт нымдаңыз.
- pH 5.2 чамасындагы 0.3–0.5 M натрий ацетатындагы 0.02–0.04 пайыздык метилен көгү менен 5–10 мүнөт боёңуз.
- Суу менен чайкап, 5–15 мүнөт боёкту кетириңиз, натыйжаны каттаңыз, андан кийин гибриддештирүүгө чейин калган боёкту алып салыңыз.
Northern иштеринде оң заряддуу нейлон басымдуу колдонулат. Нитроцеллюлоза да уксус кислотасы жана ацетат колдонулган ушул эле иш тартиби менен жарайт. Сүрөт көчүрүүнү ырастоо, 28S жана 18S тилкелерин салыштыруу (же бактериялык РНК үчүн 23S жана 16S), өлчөм маркерлерин жана стандарттарды белгилөө, ошондой эле жалпы РНК боюнча болжолдуу нормалдаштыруу жазуусун сактоо үчүн колдонулат. Жарыяланган Northern ыкмаларында жүктөөнү текшерүү үчүн боёлгон рибосомалык тилкелер сандык бааланат. Мисалы, сүт тармагындагы илимий иште нормалдаштыруу үчүн метилен көгү менен боёлгон рибосомалык тилкелер колдонулган. Southern мембраналарын да ушул жол менен көрүүгө болот. Бирок бул боёк Northern ыкмасында жүктөөнү жана көчүрүүнү текшерүү үчүн алда канча кеңири калыптанган. Мындан тышкары, Southern үчүн ДНК көчүрүүгө чейин денатурацияланат, ошондуктан гелдин сезгичтик көрсөткүчтөрүн бул жерге түз колдонууга болбойт.
Аныктоо чектери жана фон: көк боёк кайсы жерде утулат
Төмөндөгү салыштыруу атайын болжолдуу берилген. Боёонун натыйжасы гелдин пайызына, тилкенин туурасына, оптикага жана боёкту кетирүүнүн так аткарылышына көз каранды. Ар бир санды так талап катары эмес, чоңдуктун тартиби катары кабыл алыңыз.
| Боёк жана формат | Ар бир тилке үчүн болжолдуу аныктоо чеги | Түшүндүрмө |
|---|---|---|
| Метилен көгү, агарозадагы dsDNA | Оптималдаштырылганда 40–250 ng; этият баалоодо 0.5–1 микрограмм | Андан ары колдонуу үчүн көп өлчөм жүктөлгөндө жана окуу гелдеринде жетиштүү. Өтө аз өлчөмдөгү тилкелер үчүн начар. |
| Метилен көгү, PAGEдеги кыска ssDNA, РНК же олигонуклеотиддер | Болжол менен 0.1–0.5 микрограмм | Узундукка жана түзүлүшкө көз каранды. Жалпыга бирдей чек жок. |
| Этидий бромиди, агарозадагы dsDNA | Болжол менен 1–10 ng | Flores салыштыруусунда оптималдаштырылган көк боёктон болжол менен төрт эсе сезгич. UV керек. |
| SYBR Green I, dsDNA | Болжол менен 60 pg | Флуоресценттик сүрөткө тартуу талап кылынат. |
| SYBR Gold, ДНК жана РНК | Болжол менен 25 pg | Бир нече форматта этидий бромидинен он эседен ашык сезгич. |
| Күмүш менен боёо, PAGEдеги нуклеин кислоталары | Болжол менен 0.3–0.9 ng; оптималдаштырылган көк боёодон кийин күмүш менен боёо ыраатында РНК үчүн 100 pg билдирилген | Өтө сезгич, бирок химиялык жактан татаал жана үлгүнү кайра бөлүп алуу үчүн начар. |
| Толуидин көгү, PAGEдеги РНК жана олигонуклеотиддер | Иштөө өлчөмдөрү жүздөгөн ng, болжол менен 250 ng документтелген | Метилен көгүндөй көрүнүүчү жарык колдонулат, бирок SYBR көрсөткүчтөрүнө салыштырууга боло турган стандартташтырылган чек жок. |
Чектелүү сигналды колдонууга болор-болбосун фонду көзөмөлдөө чечет. Эркин боёктун түсү өтө күчтүү болгондуктан, контраст байланышкан боёкту кетирбей туруп, байланышпаган боёкту алып салуудан пайда болот. Концентрациясы жогору боёк сезгичтикти сейрек арттырат. Ал негизинен боёкту кетирүүгө кеткен убакытты узартат. Дал ошол гель, мембрана жана камера менен суюлтуулардын катарын текшерип, интегралдык тыгыздык киргизилген өлчөмгө пропорционалдуу бойдон калган диапазонду гана колдонуңуз. Метилен көгү жүктөөнү жарым сандык нормалдаштырууга жарайт. Бирок бул кең динамикалык диапазону бар сандык талдоо эмес, анткени мембрананын сыйымдуулугу, көчүрүүнүн натыйжалуулугу, каныгуу жана боёктун кетиши жолчодон жолчого өзгөрөт.
Шайкештик чектери: боёодон кийин эмнени колдонууга болот
Көк боёк менен боёодон кийин клондоо мүмкүн экени көрсөтүлгөн. Flores жана кесиптештери боёлгон агароза тилкелерин кесип алып, ДНКны бөлүп, аны лигирлеп жана трансформация жүргүзүшкөн. Алар этидий бромиди жана UV колдонулган учурга салыштырмалуу клондоо жакшыраак болгонун билдиришкен. Ыктымал себеп — боёктун өзүнүн пайдасы эмес, жарыктан болгон зыяндын азыраак болушу. Ак жарыкта кармоону кыска кылып, бөлүп алынган ДНКны гелден бөлүп алуунун кадимки тазалоо этабынан өткөрүңүз.
PCR жана секвенирлөө боюнча далилдер азыраак. Калдык боёк нуклеин кислоталарына байланышат, ошондуктан ферменттик этаптарга чейин боёкту кетирип, үлгүнү тазалаңыз. Көк боёк менен боёлгон гелден талаптагыдай тазаланган ДНК иштеши күтүлөт. Бирок калган боёктун түз өтүшүнө ар кандай полимеразалардын жана секвенирлөө химияларынын чыдамдуулугу сандык жактан жакшы аныкталган эмес. Аны өзүнөн өзү жарайт деп эсептебеңиз.
Этаптардын тартиби так сакталганда блот-гибриддештирүү шайкеш келет: көчүрүү, бекитүү, боёо, натыйжаны каттоо, боёкту кетирүү, гибриддештирүү. Бул — Herrin жана Schmidtтин иш тартиби. Көчүрүүгө чейин боёо же боёкту кетирүүнү өткөрүп жиберүү башка ыкма болуп саналат жана өзүнчө текшерилип ырасталышы керек. Боёк алынып салынгандан кийин зондду кетирүү жана жаңы зонд менен кайра текшерүү кадимкидей жүргүзүлөт. Ушул эле боёктор тобу менен клетка деңгээлинде боёо жана бекитилген препараттардын логикасы эмне үчүн тирүү клеткалардын ыкмаларына түз колдонулбай турганы жөнүндө микроскопиялык боёо атласын караңыз.
Туруктуу бекитүү варианты колдонулбаса, тилкелерди кесип алуу андан ары колдонууга арналган агароза үчүн да, көк боёк менен орду аныкталган PAGE олигонуклеотиддери үчүн да жарайт. Боёкту кетиргенден кийинки электроэлюция кайтарымдуу байланышкан боёк үчүн химиялык жактан негиздүү. Бирок метилен көгүнө тиешелүү, көзөмөлдөнгөн шарттардагы бөлүп алуу түшүмү боюнча маалымат аз. Элюциядан кийин туздарды кетириңиз же үлгүнү чөктүрүңүз.
Кайталана берген көйгөйлөр
Гелдеги күңүрт тилкелер адатта колориметриялык боёо үчүн массанын өтө аз экенин билдирет, өзгөчө кыска бир чынжырлуу же РНК нысандары үчүн. Көбүрөөк жүктөңүз, жаңы даярдалган боёкту колдонуңуз, концентрацияны көбөйтүүдөн мурун боёо убактысын узартыңыз жана боёкту кетирүүнү эртерээк токтотуңуз. Контрастсыз, толугу менен көк гель адатта ашыкча боёону же суунун жетишсиз алмаштырылганын билдирет. PAGE тилкелеринин өчүшү — күтүлгөн химиялык көрүнүш, боёонун иштебей калганы эмес. Тез сүрөткө тартыңыз. Мембранадагы тегиз эмес фон бүктөмдөрдү, көбүкчөлөрдү, манжа издерин, тегиз эмес чайкоону же көчүрүүнүн ала-була болгонун көрсөтөт. Гибриддештирүү көзөмөлүсүз муну бирдей эмес жүктөө деп чечмелебеңиз. Жайылып кеткен алсыз рибосомалык көрүнүш бузулууну билдириши мүмкүн, бирок ага толук эмес көчүрүү, жалпы РНКнын өтө аздыгы (адаттагы жолчолорго бир нече микрограммдан ондогон микрограммга чейин жүктөлөт) же боёкту ашыкча кетирүү да себеп болушу мүмкүн. Боёк көп өлчөмдөгү рибосомалык РНКны көрсөтөт. Ал белгилүү бир транскриптти көрсөтпөйт. Бул милдет зондго тиешелүү.
Ашыкча тыянаксыз коопсуздук жана колдонуу
Метилен көгү менен иштөө этидий бромидине караганда жөнөкөй, бирок ал зыянсыз эмес. MilliporeSigmaнын учурдагы коопсуздук маалымат барагы боёкту ооз аркылуу кабыл алынганда курч уулуулуктун 4-категориясына киргизип, жутулса зыяндуу экенин белгилейт. Калдыктар Sigma-Aldrich метилен көгүнүн SDS барагына ылайык уруксат берилген жол менен жок кылынышы керек. Этидий бромиди боюнча геноуулуулук эскертүүлөрү күчтүүрөөк, анын ичинде Sigma-Aldrich этидий бромидинин SDS барагында жыныс клеткаларына таасир этиши мүмкүн деген шек көрсөтүлгөн. Анын гелдери менен эритмелери, Thermo Fisher нуклеин кислоталарын боёо колдонмосунда белгиленгендей, адатта кооптуу химиялык калдыктар катары өзүнчө чогултулат. Экөө үчүн тең SDS жана мекеменин эрежелерин аткарыңыз. Кургак боёкту бекем жабылган идиште, кургак кармаңыз; жумушчу боёк эритмесин протокол уруксат бергенде гана кайра колдонуңуз; боёлгон мембраналарды чыпка кагаздарынын ортосунда кургак сактаңыз; гелдерди тилкелер диффузияланып тараганга чейин сүрөткө тартыңыз.
Лабораториялык негизги ойду эстеңиз. Гелдер көп өлчөм жүктөлгөндө ак жарыкта көрүнөрүн текшерет. Мембраналар зонд сезгич ишти аткарганга чейин көчүрүүнү жана жүктөөнү текшерет. Бир боёк экөөнө тең кызмат кылат, бирок анын сезгичтиги чектелүү, байланышуусу кайтарымдуу жана иш этаптарынын тартиби так болушу керек.