記事
メチレンブルーと一酸化窒素:NOS、cGMP、血管シグナル伝達
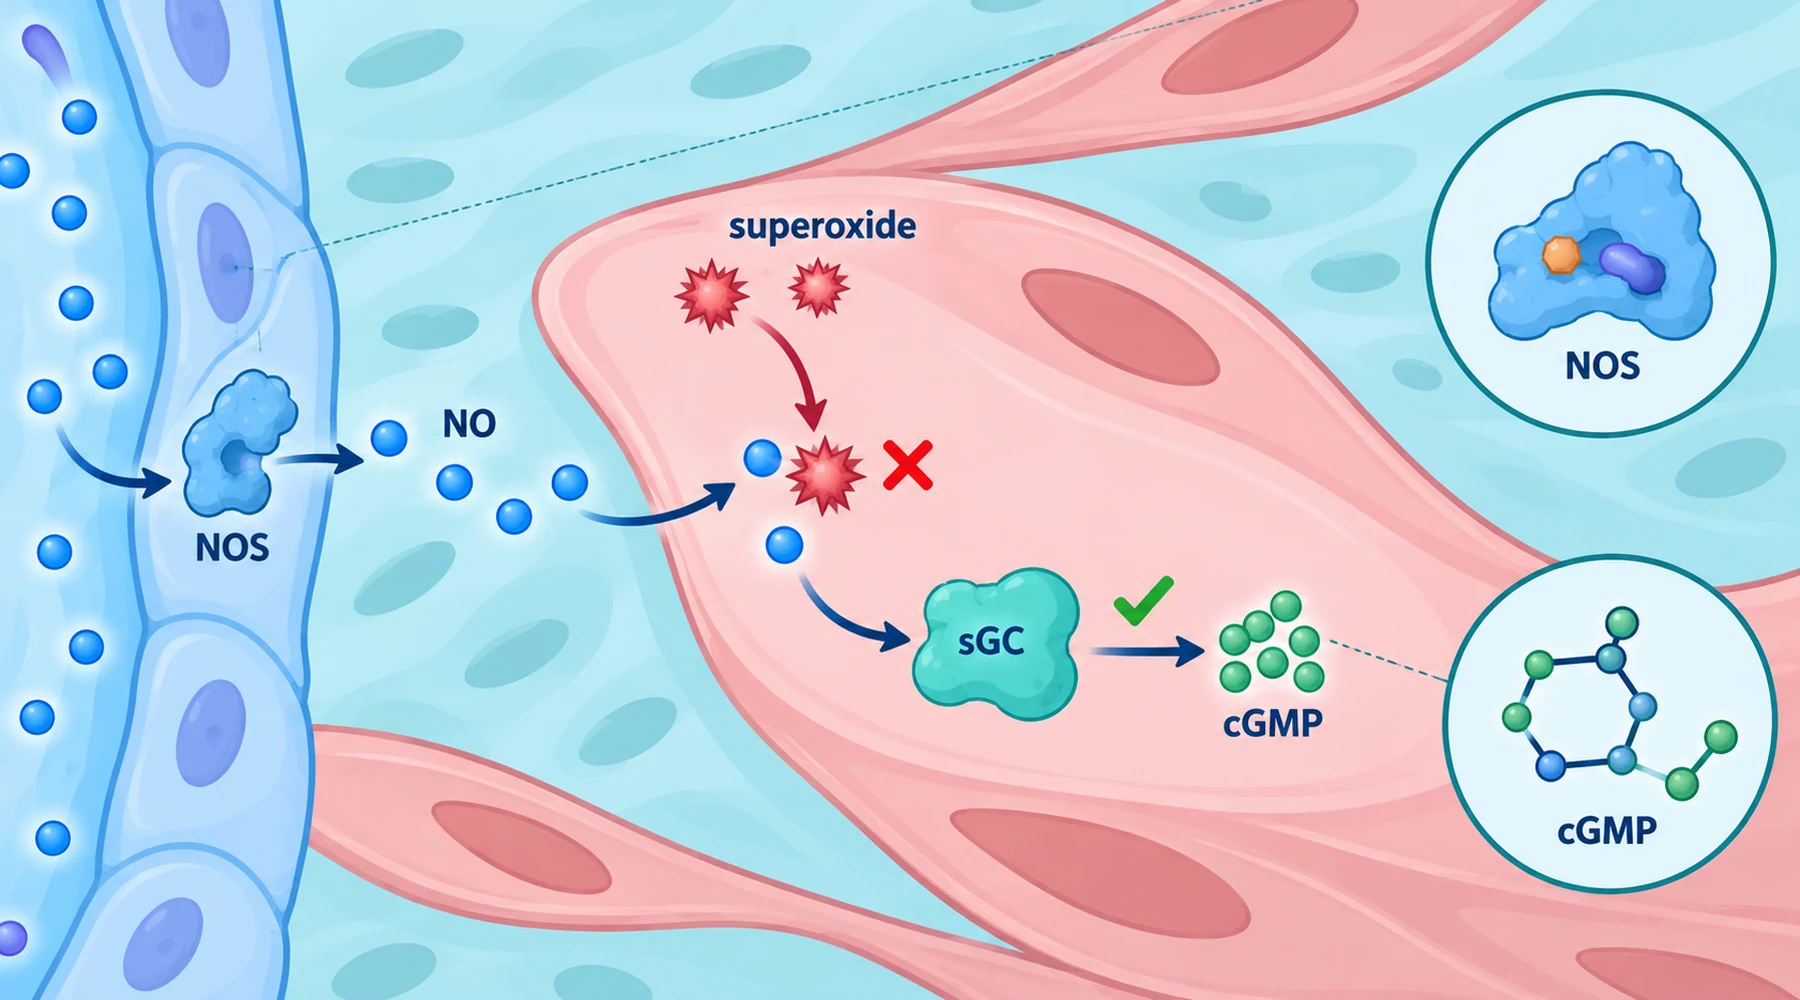
疑問自体は単純に聞こえます:メチレンブルーは一酸化窒素を阻害するのか?研究室では、この答えは4つの別々の問いに分かれ、それぞれ異なる実験的検証が必要です。これらを混同することが、メチレンブルーと一酸化窒素についての記述が、断定的でありながら曖昧に見える主な理由です。
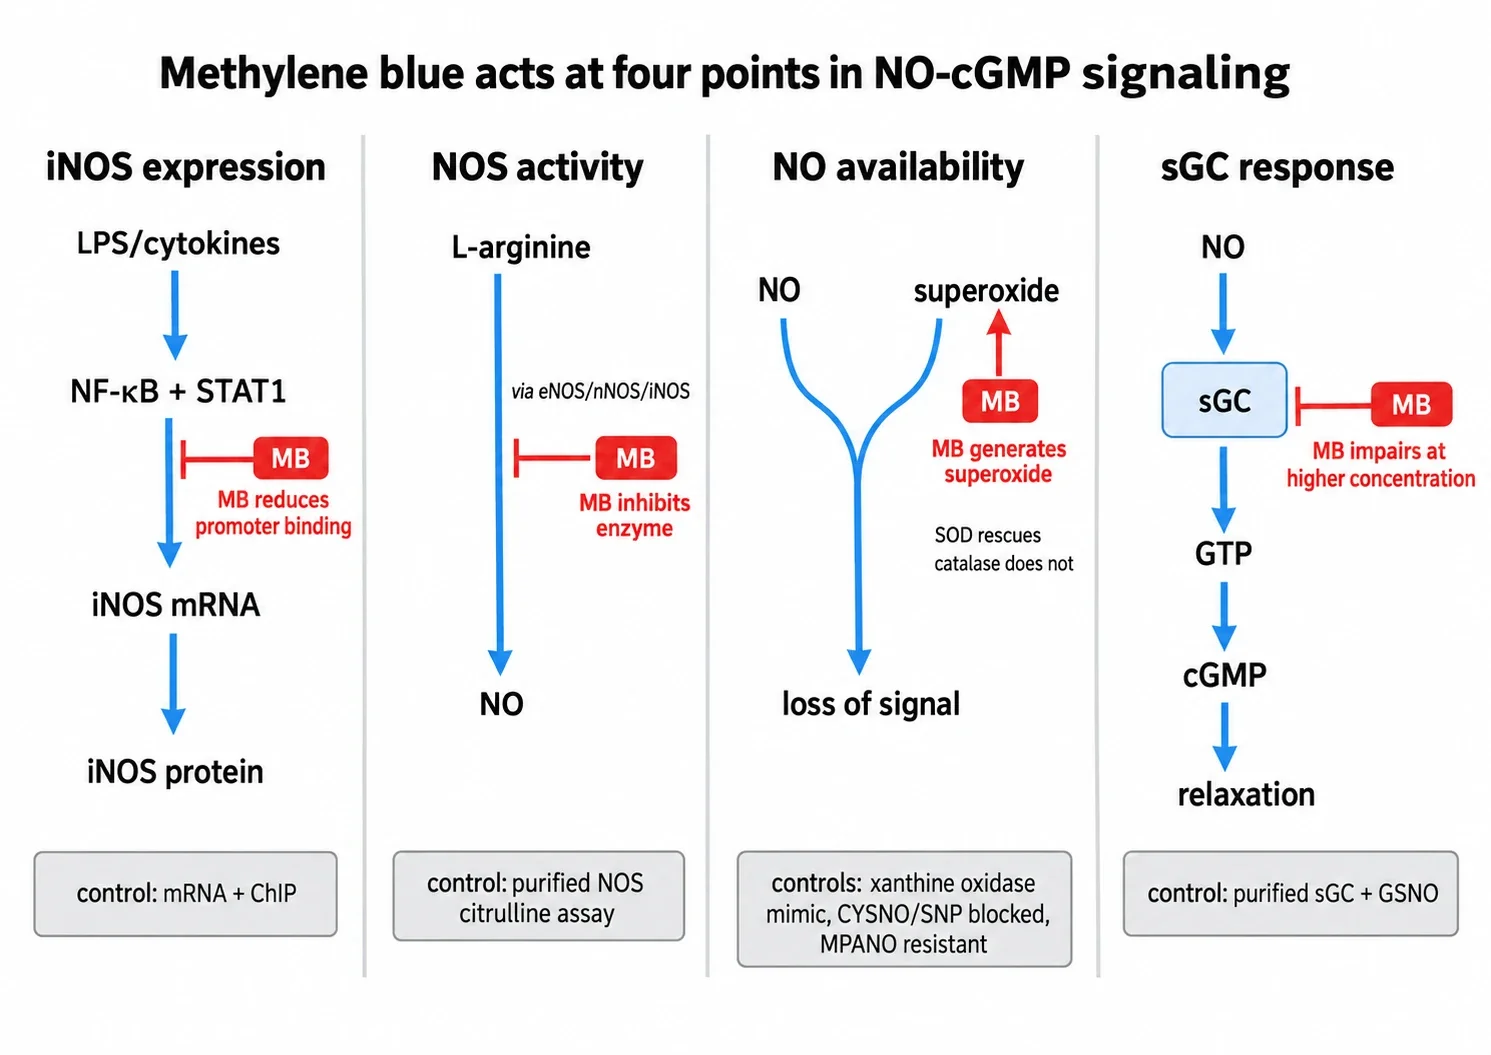
一酸化窒素シグナルを4つのリンクからなる鎖として考えてください。遺伝子が転写されて一酸化窒素合成酵素が作られます。その酵素がアルギニンを一酸化窒素へ変換します。ガスは別のものと反応する前に標的へ拡散します。可溶性グアニル酸シクラーゼがそれを検出し、環状GMPを生成します。メチレンブルーはすべてのリンクにおいて報告された作用を持ちますが、証拠は異なる実験系、異なる濃度、異なるアイソフォームから得られています。1つのリンクでの結果は、別のリンクでの作用を証明するものではありません。
標準的な連鎖を明確に説明する
血管壁では、標準的な流れは次のようになります。刺激が内皮細胞に作用します。内皮型一酸化窒素合成酵素は、eNOSまたはNOS3と呼ばれ、少量の一酸化窒素パルスを生成します。ガスは隣接する平滑筋細胞へ拡散し、可溶性グアニル酸シクラーゼの還元型鉄ヘムに結合し、GTPから環状GMPへの変換を促進します。環状GMPはプロテインキナーゼGを活性化し、カルシウム制御が変化し、筋肉が弛緩します。
分けて考えるべき別の連鎖もあります。感染やサイトカイン曝露の際、細胞は別の酵素である誘導型一酸化窒素合成酵素、すなわちiNOS(NOS2とも呼ばれる)を転写します。これはeNOSより大きく、より長く持続する一酸化窒素フラックスを生成します。3番目のアイソフォームである神経型NOS(nNOS)は、さらに異なる状況に属します。論文がアイソフォームを指定せずに一酸化窒素合成酵素と言っている場合は、どの種類が測定されたのか確認してください。メチレンブルーが電子を移動させる仕組みの概要でも、一般的なレドックス標的について同じ点が示されています:リレー自体は単独では機能せず、両端の相手が結果を決定します。
測定された環状GMPも、直接的な酵素アッセイではなく統合的な読み出しです。そのレベルは、シクラーゼによる合成からホスホジエステラーゼによる分解を差し引いた結果を反映します。特に血管平滑筋ではPDE5が重要です。したがって、環状GMPの低下は、シグナルが検出器に到達した量が少ないことを意味します。それだけでは、どのリンクが失敗したのかは示しません。
リンク1:生成されるiNOS酵素量が減る
細菌性リポ多糖、インターフェロンγ、またはその両方で刺激したマウスマクロファージでは、メチレンブルーは予想されるiNOSタンパク質増加を防ぎ、マクロファージ転写実験で示されたようにiNOSメッセンジャーRNAを強く抑制しました。重要なのは、変化しなかったものです。阻害因子IκBαの分解、NFκBおよびSTAT1のリン酸化、そしてそれら因子の核内への移動はほぼ維持されました。低下したのはDNAへの結合であり、クロマチン免疫沈降によってiNOSプロモーターでの占有率低下が確認されました。
これは既存酵素の急性阻害ではなく、酵素量より上流にある遺伝子制御作用です。転写因子がプロモーターに結合してからタンパク質が現れる必要がある炎症シグナルに属します。これは安静状態の血管における構成的eNOSについて直接何も示しておらず、そのような用語で説明されるべきです。
リンク2:既存のNOS酵素の反応速度が低下する
ラット研究では、異なる段階が調べられました。意識のある雄ラットにリポ多糖を静脈投与し、その3時間後に生理食塩水または3 mg/kgのメチレンブルーを静脈投与しました。そして視床下部内側基底部における一酸化窒素合成酵素活性を、視床下部NOS活性研究で報告されたように、標識アルギニンからシトルリンへの変換によって測定しました。ストレスと生理食塩水のみではカルシウム非依存性活性が一部誘導され、リポ多糖では対照値の約10倍まで上昇しました。メチレンブルーは両方の誘導成分を消失させました。その組織、その投与量、その時点では、カルシウム依存性の構成的活性は変化しませんでした。
この結果は正確に次のように読み取るべきです:その条件下で測定されたiNOS型活性が抑制された。これは遺伝子発現の測定ではなく、またeNOSやnNOSを含むすべての構成的NOSを恒久的に温存することの証明でもありません。精製酵素研究はこの注意点を強めます。精製一酸化窒素合成酵素の直接アッセイでは、精製NOSとグアニル酸シクラーゼ比較研究で報告されたように、メチレンブルーは30マイクロモル濃度でシトルリン生成を完全に阻害し、半最大阻害濃度はスーパーオキシドジスムターゼなしで約5.3マイクロモル濃度、ありで9.2マイクロモル濃度でした。別の精製nNOS研究では、酵素結合ヘムの酸化が関与すると示唆されました。実用的な教訓は、直接的なNOS阻害は単離系では実在するが、視床下部の結果を、メチレンブルーがあらゆる場所で全構成的NOSを温存するという一般的主張へ拡張することはできないということです。
リンク3:一酸化窒素が到達前に失われる
酵素阻害以外の機序でも環状GMP低下を説明できることを最も明確に示すのは、培養ウサギ肺動脈平滑筋細胞での研究です。この実験設計では内因性NOSを完全に迂回し、一酸化窒素ドナーを直接添加して、メチレンブルーが血管平滑筋スーパーオキシド研究で環状GMP応答を抑制するかを調べました。
1〜100マイクロモル濃度の範囲で3種類のドナーを試験しました:SニトロソLシステイン、ニトロプルシドナトリウム、そしてMPANOと呼ばれる安定した脱アミノ化アナログです。すべてが約1.5倍から12倍の範囲で環状GMPを増加させました。10マイクロモル濃度のメチレンブルーは最初の2つを51〜100%阻害し、MPANO応答は変化しませんでした。もしメチレンブルーが単純にシクラーゼ触媒部位を遮断していたなら、3つすべてが同じ下流酵素へ収束するため、このドナー選択性を説明することは困難です。
3つの対照実験によって、機序はスーパーオキシドへ絞り込まれました。第一に、キサンチンとキサンチンオキシダーゼを用いて細胞外スーパーオキシドを生成すると、同じパターンが再現されました:CYSNOとニトロプルシドは阻害され、MPANOは保護されました。第二に、メチレンブルーは平滑筋細胞からのスーパーオキシド生成を濃度依存的および時間依存的に増加させ、シトクロムc還元によって測定されました。第三に、スーパーオキシドジスムターゼは阻害を完全に防ぎましたが、カタラーゼは防ぎませんでした。このことは、その実験系で直接関与する種が過酸化水素ではなくスーパーオキシドであることを示します。
この実験の共培養版は、作用場所を特定するために重要です。カバースリップ上の内皮細胞を短時間平滑筋細胞と共培養し、基礎的に放出された内皮因子によって平滑筋の環状GMPが3〜8倍上昇しました。どちらの区画もメチレンブルーで前処理すると、そのシグナルは低下し、スーパーオキシドジスムターゼによって内皮前処理効果が部分的に回復しました。つまり、メチレンブルーは必ずしも平滑筋の検出細胞内部で作用する必要はありません。移動中のメッセンジャーを除去することでシグナルを低下させることができます。メチレンブルー研究を読むためのガイドでも一般則として扱われています:分子標的を指定する前に、介入が起こった区画を特定してください。
これをNOS阻害と呼ぶのは誤りです。ドナーが作用するために合成酵素段階は必要ありませんでしたが、それでもシグナルは低下しました。
リンク4:検出器自体の応答が低下する
可溶性グアニル酸シクラーゼへの直接作用は存在しますが、濃度が重要です。上記の精製酵素比較では、一酸化窒素によるシクラーゼ刺激は半阻害に約60マイクロモル濃度のメチレンブルーを必要としました。一方、NOSの半阻害は約5〜9マイクロモル濃度であり、1ミリモル濃度でも最大阻害は部分的でした。これは約6〜11倍の差です。したがって、低マイクロモル濃度の細胞実験で環状GMPが低下した場合、その環状GMP値だけを根拠に選択的シクラーゼ阻害と呼ぶことはできません。
後のレドックス研究では、別の注意点が追加されました:メチレンブルーは、一酸化窒素活性化シクラーゼを単純な空気酸化によるヘム鉄の酸化とは異なる機序で不活性化しました。したがって、検出器が損なわれる可能性はありますが、化学的詳細は確定しておらず、低マイクロモル濃度曝露ではまずスーパーオキシド作用とNOS作用を除外する必要があります。ここにはホスホジエステラーゼ制御も含まれます。分解が測定または阻害されない限り、環状GMP蓄積の低下は、合成低下、分解促進、またはその両方と一致します。
これが単一の血圧主張に還元できない理由
各リンクは異なる系で確立されています。マクロファージの転写は視床下部の酵素活性とは異なります。リポ多糖後の視床下部活性は安静時の内皮緊張とは異なります。共培養で基礎的に放出された内皮因子は、作動薬刺激による血管拡張とは異なります。培養肺動脈細胞における10マイクロモル濃度のメチレンブルーは、人の循環系とは異なります。これらを「メチレンブルーは一酸化窒素を遮断することで血圧を上昇させる」のような一文にまとめると、対照実験が維持しようとしたまさにその区別を失います。
3つの確認事項がこの説明を正確に保ちます。第一に、アイソフォームを指定すること:安静時血管緊張ではeNOS、誘導性炎症フラックスではiNOS、神経および一部の精製酵素状況ではnNOSです。第二に、一酸化窒素シグナルの供給源を指定すること:内因性合成、基礎的内皮放出、またはCYSNO、ニトロプルシド、MPANOなど特定のドナーです。安定したドナーはメチレンブルーに抵抗し、不安定なドナーは抵抗しませんでした。第三に、濃度と救済実験を指定すること:スーパーオキシドジスムターゼによる救済はスーパーオキシドを示唆し、カタラーゼの失敗はその実験系で過酸化水素が関与しないことを示し、キサンチンオキシダーゼによる再現は十分性を示し、精製酵素アッセイは直接触媒作用と移動中の損失を分離します。
簡潔なまとめは次の通りです。メチレンブルーは、選択的シクラーゼ阻害剤としてではなく、一酸化窒素から環状GMPへのシグナル伝達を複数の部位で変化させる物質として扱う方が適切です。実験系と濃度によって、iNOS転写因子の結合を減少させ、NOS酵素を直接阻害し、スーパーオキシド生成を通じて一酸化窒素の利用可能性を低下させ、一酸化窒素で活性化されたシクラーゼを損なう可能性があります。血管研究における環状GMPシグナル伝達の役割と細胞アッセイで用いられる一酸化窒素ドナーの比較は、それぞれその分岐の1つを詳しく扱い、酸化還元作用と酵素作用を分離する方法は、この文献でスーパーオキシドジスムターゼ、カタラーゼ、安定したドナー対照の組み合わせが頻繁に登場する理由を説明します。
メチレンブルー投与後の低い環状GMP値は、鎖が切れたことを示します。どのリンクが切れたかを示すのは、対照実験だけです。