
記事
メチレンブルーのミトコンドリア作用の測定:酸素、ATP、膜電位
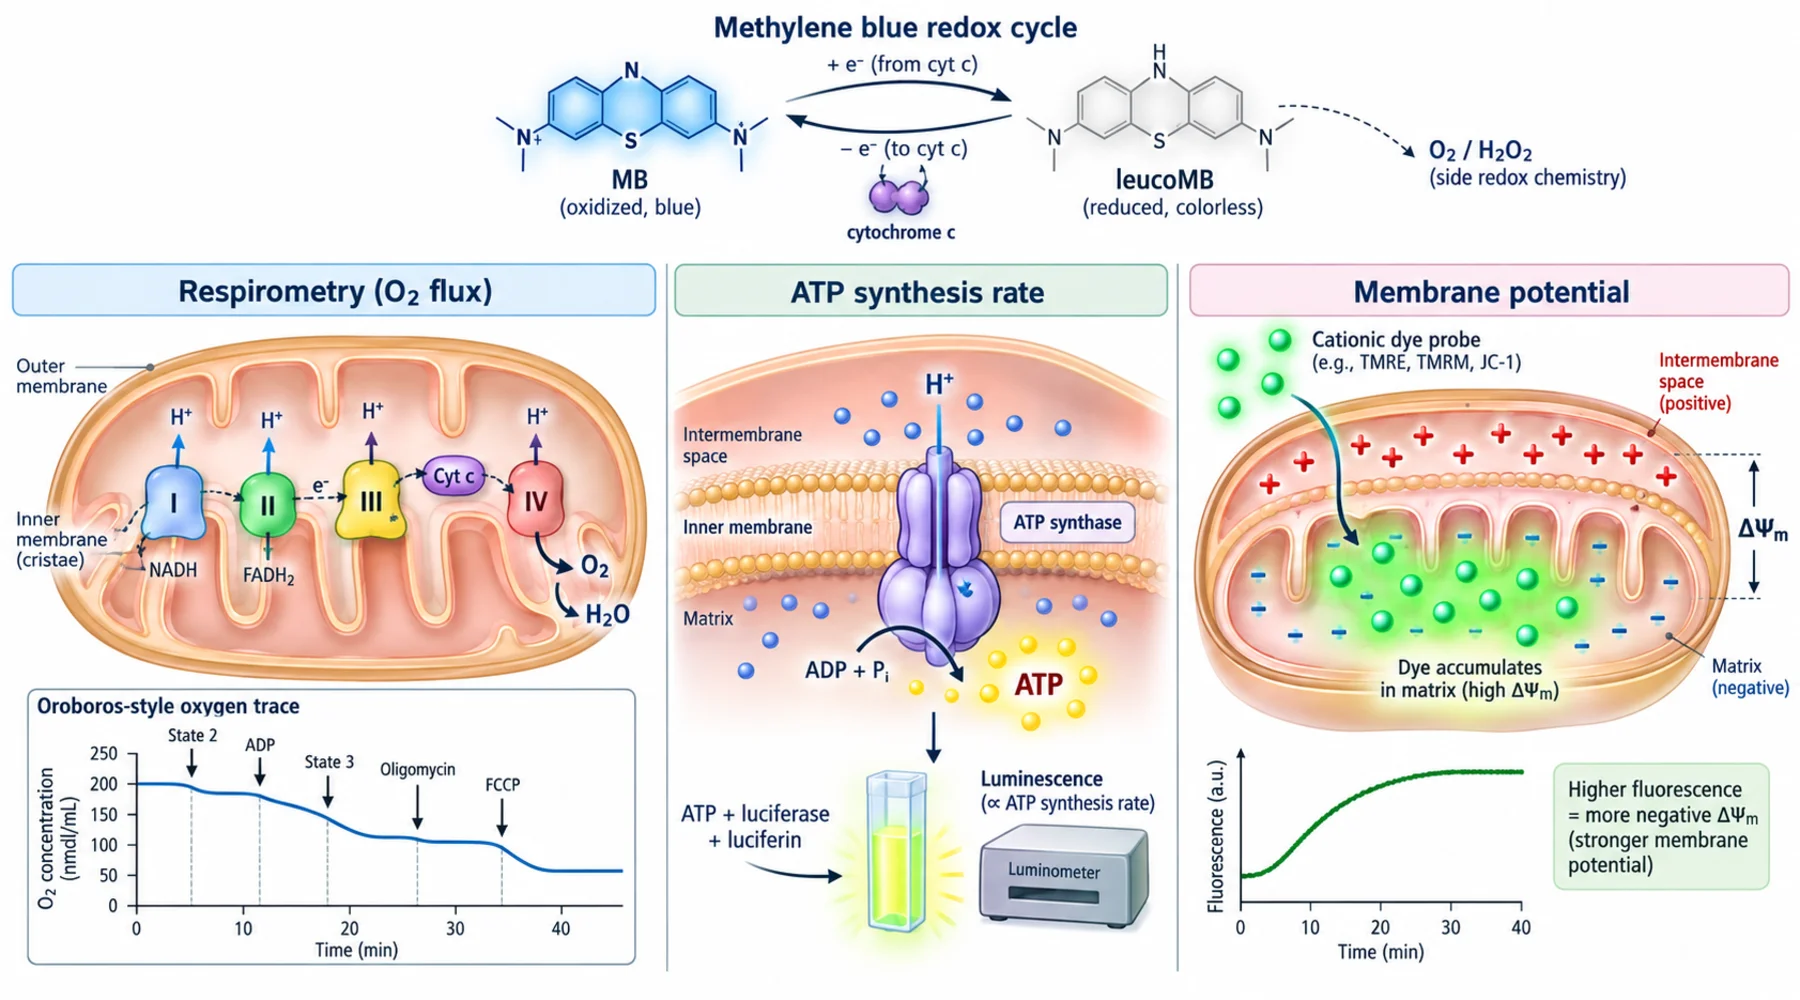
ある研究室が呼吸機能が低下したミトコンドリアにメチレンブルーを添加し、酸素消費量の増加を観察したとします。自然に書きたくなる文章は「色素がミトコンドリア機能を回復させた」です。しかし、その文章は誤っている可能性があります。酸素フラックス、ATP合成、膜電位は3つの異なる概念です。これらは、バックアップ、同期、共有が同じクラウドフォルダーを共有するように、同じオルガネラを共有していますが、それぞれ異なる規則によって制御されています。一方を別のものと混同すると、すべての測定が技術的に正確であっても解釈は失敗します。
メチレンブルーが混乱を招きやすい理由は、測定対象のシステム自体に関与するためです。メチレンブルーは、上流で電子を受け取り下流で電子を供与する酸化還元サイクラーであり、エネルギー化されたミトコンドリアに蓄積する親油性カチオンであり、一般的なプローブと同じ波長帯で吸収・発光する強い青色化合物です。単一の測定値では、そのすべての要素を担うことはできません。ブダペストのミトコンドリア研究で示された信頼できるパターンは、酸素フラックス、ATP合成速度、膜電位、過酸化水素放出を測定し、それぞれの段階で色素固有のコントロールを使用することです。
呼吸測定は酸素フラックスを測定するものであり、エネルギー出力ではない
Oroboros OxygraphやSeahorse細胞外フラックスアナライザーによる高解像度呼吸測定は、1つのことを報告します。それは酸素が還元される速度です。これは、電子1個あたりに何個のプロトンが汲み出されたか、どれだけの勾配が保存されたか、またATP合成酵素がそれを利用したかを報告するものではありません。
用語は重要です。単離ミトコンドリアでは、ADPなしの基質はリーク呼吸を示し、飽和量のADPを含む基質は酸化的リン酸化能力を示し、脱共役剤滴定は最大電子伝達能力を示します。インタクト細胞では、Seahorseに対応する指標は基礎呼吸、オリゴマイシン感受性ATP関連呼吸、プロトンリーク、FCCPで定義される最大呼吸、ロテノン+アンチマイシン耐性の非ミトコンドリア酸素消費です。Seahorseの出力をState 3やState 4と呼ぶことは、調製系が支持しない精度を借用することになり、Agilent Mito Stress Test frameworkが明確に示している通りです。
メチレンブルーは、酸素増加とエネルギー増加の直感的な結び付きを崩します。単離したモルモット脳ミトコンドリアでは、100 nMから1 uMの色素がグルタミン酸+リンゴ酸、コハク酸、α-グリセロリン酸基質による安静時酸素消費を増加させ、α-グリセロリン酸では約64%の増加を示しました。しかし、健康なミトコンドリアでADP刺激呼吸はほぼ変化しませんでした。単離脳ミトコンドリア研究によれば、リークが増加する一方でADP刺激フラックスが一定だったため、計算された呼吸調節比は低下します。この低下は、色素がミトコンドリアを損傷したことを意味しません。色素が正常な呼吸に加えて酸素を消費する酸化還元サイクルを追加したことを意味します。上昇のみを報告するメチレンブルー酸素消費アッセイは、実際の化学反応を測定していますが、エネルギー保存については何も述べていません。
レスキュー実験でも同じ差がより大きなスケールで示されています。Complex Iを阻害した場合、酸素フラックスは約3倍回復しましたが、ATP合成は約1.5倍しか回復しませんでした。電極に到達する酸素量は増えました。しかし、そのうちATP産生に使われる割合は低くなりました。酸化的リン酸化の改善を主張するには、ATP側の収支も必要であり、理想的には分母の定義を明示したATP/酸素比として表現します。
ATPアッセイは合成速度を測定し、含有量では代替できない
ATPアッセイは別の問いに答えます。それは単位時間あたりにどれだけATPが生成されるかです。ホタルルシフェラーゼ発光を数分間追跡する方法、または340 nmで測定するヘキソキナーゼ+グルコース-6-リン酸デヒドロゲナーゼ連結アッセイによる速度測定は、速度を示します。一方、単一時点での総ATP測定は含有量を示し、合成量から消費量を差し引いた結果を反映するため、それ自体では酸化的リン酸化についてほとんど情報を与えません。
ブダペストのグループは、アデニル酸キナーゼを抑制した連結酵素法を使用し、1〜2 uMのメチレンブルーがロテノン処理およびアンチマイシン処理ミトコンドリアでATP産生を控えめながら有意に増加させることを見出しました。これは真のレスキューですが、部分的なものです。TEGDMA毒性研究でも、異なるモデルで同様の形の結果が得られました。5 mMの歯科用モノマーTEGDMAはComplex I関連呼吸を約286から28フラックス単位まで低下させ、2 uMの色素は約86まで回復させました。
色のある酸化還元化合物では、2つのコントロールが必須です。まず、測定されたATP合成のどれだけがATP合成酵素に依存するかを確認するためにオリゴマイシンを使用します。次に、既知量のATP+完全な試薬+使用する正確な色素濃度による、少なくとも0、100 nM、300 nM、1 uM、2 uMでの無細胞スパイク回収試験を実施します。色素は発光を吸収したり、レポーター酵素を阻害したり、試薬の酸化還元化学を変化させたりする可能性があり、一般的なルシフェラーゼアッセイガイダンスでは、この種類の干渉に対する生化学的カウンタースクリーニングを推奨しています。1 uMがアーティファクトを含まないと仮定してはいけません。通常、消光は高濃度ほど悪化します。
膜電位プローブはフラックスではなく色素分布を測定する
サフラニンO、TMRMおよびTMRE、ローダミン123、JC-1はいずれも膜透過性カチオンです。これらは電気化学的平衡に従って負に帯電したマトリックスへ蓄積するため、バルク蛍光はプローブがどこに存在するかを通じて電位を間接的に報告します。どれもATPや電子フラックスを測定するものではありません。
各プローブには適した調製条件があります。サフラニンOは単離ミトコンドリアや透過化細胞に適しており、通常約2 uM、励起約495 nm、発光約585 nmで使用され、取り込みによるバルク蛍光変化を見る消光領域で動作します。TMRMとTMREは、非消光モードで低ナノモル濃度ロードしたインタクト細胞に適しており、脱分極時には色素が放出されミトコンドリア蛍光が低下します。高濃度ロードでは自己消光によりシグナル方向が逆転することがあります。JC-1は緑から赤への比率を提供しますが、ロード量とミトコンドリア量に依存するため、定量用途では慎重に制御したTMRMより弱い場合があります。これらのトレードオフは、広く利用されているミトコンドリア膜電位プローブのレビューでまとめられています。
メチレンブルーは、まさに使用濃度域で光学的干渉を起こします。600〜665 nm付近の吸収帯は赤色プローブの発光と重なるため、内フィルター効果、消光、励起光の吸収はいずれも起こり得ます。また、この色素自体も別の親油性カチオンであり、その分布は測定対象の電位によって変化します。対策は冗長性とブランクです。プローブ単独、色素単独、プローブ+各色素濃度、FCCPによる完全脱分極をゼロ基準として使用し、可能であれば2種類目の光学的に異なるプローブを使用します。Complex IIIバイパス研究では、アンチマイシンおよびミキソチアゾール阻害後の膜電位回復をサフラニンOとTMRMの両方で再測定し、同じ定性的回復を得ることで、この前例を示しました。1つの光学レポーターは手掛かりです。2つの独立したレポーターは証拠です。
3種類の調製系、3種類の異なる問い
単離ミトコンドリア、透過化細胞、インタクト細胞は、1つのアッセイの感度設定を変えただけのものではありません。それぞれ異なる概念と操作原理を持っています。
単離ミトコンドリアは、電子伝達系、内膜、マトリックス機構を保持しながら、細胞膜、細胞質、ネットワーク構造を除去します。この除去こそが目的です。基質、ADP、阻害剤、色素濃度を正確に定義できるため、経路を割り当てることができます。代償として、天然の基質供給、シグナル伝達、需要が失われます。
透過化細胞では、開放された細胞膜を通じて外因性基質やADPを導入できる一方、ミトコンドリアは細胞構造の多くの内部に保持されます。これは、細胞環境内で基質経路の欠陥を割り当てるための適切な手法です。過剰な透過化は外膜を損傷し、細胞質制御因子が失われます。
インタクト細胞はすべてを保持します。細胞膜バリア、細胞質還元剤、内因性基質輸送、ミトコンドリアネットワーク、ATP需要です。生理状態に最も近い一方で、機構解析からは最も遠くなります。これは、色素取り込み、還元、隔離がすべて実効的なミトコンドリア曝露量を形成するためです。
TEGDMA研究では、3つのレベルすべてを意図的に使用しました。単離脳ミトコンドリアでは酸化と電位に対する色素レスキューを、透過化歯髄幹細胞では主にComplex I関連基質酸化への損傷部位の特定を、インタクト幹細胞では抑制された酸素消費に対する2 uM色素の生理的な総効果を評価しました。調製系間でミトコンドリア測定値を比較する読者向けに、関連する解説ではメチレンブルーが呼吸鎖を通じて電子を移動させる仕組みを説明し、メチレンブルー呼吸研究の読み方ガイドでは用量と阻害剤の論理を扱っています。
酸化還元活性を持つ色素に必要なコントロール
酸化還元サイクラーは、通常の阻害剤よりも長いコントロールリストを必要とします。色素のみの化学反応が生物学的効果を模倣する可能性があるためです。
呼吸測定では、ドリフト確認用のバッファーのみのチャンバー、生物試料なしのバッファー+色素チャンバー、アッセイ中に存在する細胞外還元剤を含む色素、インタクト細胞で非ミトコンドリア酸素消費を定義するための終端ロテノン+アンチマイシンを実施します。還元型色素は電子を酸素へ移して過酸化水素を形成することで再酸化されるため、NADHまたはNADPHが利用可能になった時に現れる無細胞酸素消費源を、電子供与体なしの色素ブランクでは過小評価することに注意してください。
過酸化水素測定では、非選択的なDCFDA色素よりも、キャリブレーション済みAmplex UltraRed+西洋ワサビペルオキシダーゼを優先し、カタラーゼで検証し、色素が光増感剤であるため照射依存性も試験します。脳ミトコンドリア研究では、わずか100 nMの色素で過酸化物負荷が4倍以上増加し、除去速度が低下しました。過酸化物はスーパーオキシド中間体なしに還元型色素から直接形成されました。プローブ選択と光制御の詳細は、色素実験での活性酸素種測定に関する関連資料にあり、過酸化物がシグナルか負荷かという幅広い問題は、細胞の酸化還元バランスと抗酸化主張