
Cikk
Metilénkék és NAD+/NADH: a sejtek redoxegyensúlyának értelmezése
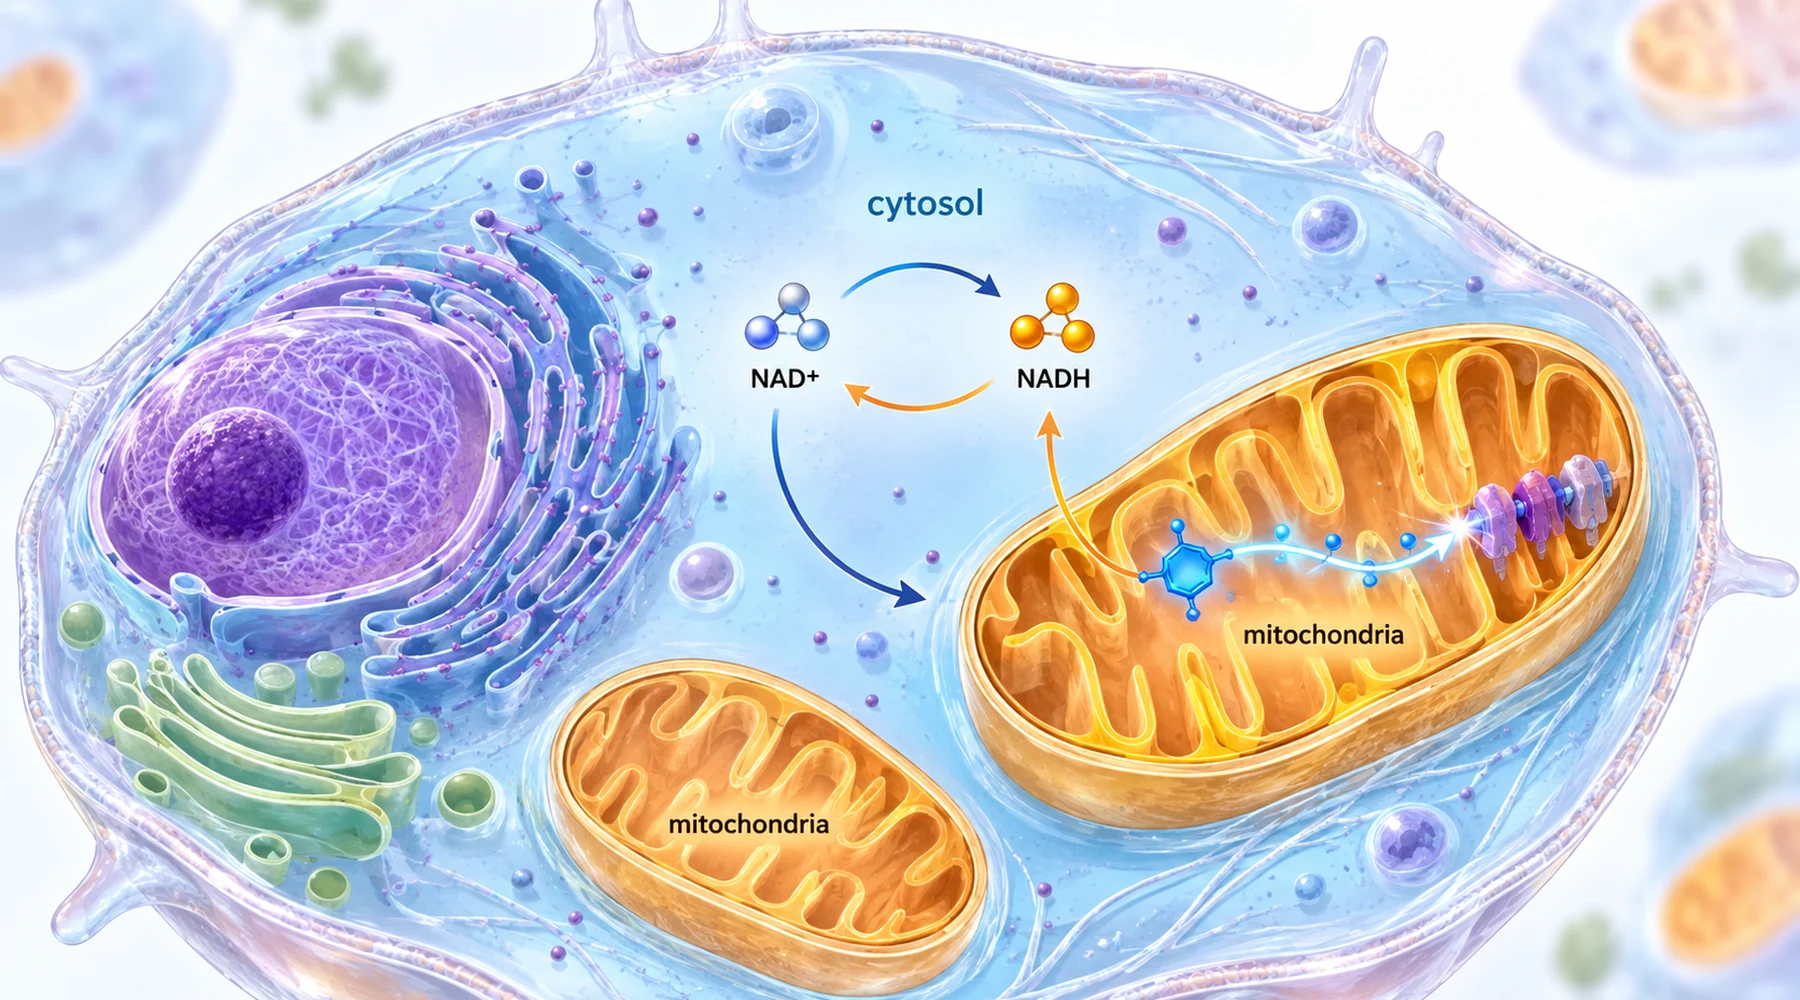
A metilénkékről és a NAD+-ról szóló beszámolók hajlamosak három különböző állítást összemosni. Az első szerint a NAD+ és a NADH aránya az oxidált állapot felé tolódott. A második szerint a sejtben több az összes NAD. A harmadik szerint helyreállt az energiatermelés. Ezek együtt úgy hangzanak, mintha egyetlen történetet mesélnének az anyagcsere helyreállításáról. A kísérletekben azonban rendszeresen elválnak egymástól, és éppen azok az esetek adják az érdekes eredményeket, amelyekben eltérnek.
A félreértés érthető, mert a három mennyiséget ugyanazzal a szókészlettel írjuk le. A NAD+ az anyagcsere-reakciókban elektronokat vesz fel, és NADH-vá alakul, majd a mitokondriumok az I-es komplexnél visszaoxidálják a NADH-t NAD+-szá, és a felszabaduló energiával hajtják az ATP-szintézist. Ennek az elektronútvonalnak a részletesebb leírása a mitokondriális elektrontranszport magyarázatában, az energetikai oldal pedig az ATP-ről és az energia-anyagcseréről szóló cikkben található. Az arány és a készlet azonban különböző dolgok. Az arány azt mutatja meg, hogyan oszlik meg a meglévő szállítómolekula-állomány a feltöltött és az üres állapot között. A készlet azt mutatja meg, összesen hány ilyen molekula létezik. Azonos készlet mellett a kedvezőbb arány átrendeződést jelent, nem új molekulák előállítását.
Két kompartment, két jelzőrendszer
Van egy második különbség is, amely könnyen észrevétlen félreolvasásokhoz vezet. A citoszolikus és a mitokondriális NAD-készleteket a belső mitokondriális membrán nagyrészt elválasztja egymástól, így mindkét kompartment önállóan is lehet viszonylag oxidált vagy redukált állapotban. Egyetlen, az egész sejtre vonatkozó szám ezt elfedi.

A májkutatások mérhetővé tették a kompartmentek közötti különbséget. A laktát és a piruvát közötti egyensúly a citoszolikus NAD+ és NADH arányát jelzi, mert a laktát-dehidrogenáz összekapcsolja ezt a két párt. A 3-hidroxibutirát és az acetoacetát közötti egyensúly hasonló kapcsolaton keresztül jelzi a mitokondriális arányt. Ha mindkét párt gyorsfagyasztással rögzített szövetből mérik, ahogyan a patkányokon végzett krónikus etanoletetési vizsgálatban, akkor ugyanabból a májból két redoxértéket kapnak, és egy vegyület az egyiket jobban eltolhatja, mint a másikat.
A metilénkék ebben a rendszerben elektronszállítóként, nem pedig üzemanyagként működik. Az I-es komplex közelében elektronokat vesz át a NADH-tól, ezáltal redukálódik, majd továbbadja őket az útvonal későbbi szakaszán lévő hordozóknak, például a citokróm c-nek. A nettó hatás a NADH oxidációja anélkül, hogy az elektronok végighaladnának a teljes szokásos útvonalon. Ez a mechanizmus egyszerre magyarázza az ígéretességét és a korlátait: enyhítheti a redukált állapotból eredő torlódást, de nem épít újjá egy sérült komplexet, és nem szintetizál új NAD-molekulákat.
Öt vizsgálat, az eltérő eredmények közös mintázata
Az alábbi táblázat szövet, redoxvégpont, energetikai végpont és a ténylegesen helyreállt jellemzők szerint rendezi az öt vizsgálatot. Az utolsó két oszlopot együtt érdemes olvasni. Ez a párosítás adja a cikk lényegét.
| Szövet és károsító hatás | Redoxvégpont metilénkék mellett | Energetikai és jelátviteli végpont | Funkcionális eredmény |
|---|---|---|---|
| Patkánymáj, krónikus etanoltartalmú étrend | A citoszolikus és mitokondriális NAD+/NADH-arány nagyrészt helyreállt; a glicerin-3-foszfát normalizálódott | Az ATP-t sem az etanol, sem a kezelés nem változtatta meg; a késői időpontban a festék mellett enyhe ATP-csökkenés jelentkezett | A zsíros beszűrődés nem változott; a lipid- és triacilglicerol-szint magas maradt |
| Májsejtek és magas zsírtartalmú étrenden tartott egerek mája | A NAD+/NADH-arány és a NAD+-tartalom nőtt a sejtekben és a májban | A SIRT1 nőtt, a PGC-1alpha dezacetilálódott, a mitokondriális DNS mennyisége és az oxigénfelhasználás nőtt, SIRT1-függő AMPK-aktiváció jelentkezett | A májban a zsírfelhalmozódás és a steatohepatitis csökkent |
| Diabéteszes patkány szíve | Izolált mitokondriumokban a szubsztrátoxidáció során csökkent a NADH/NAD+-arány | A SIRT3 aktivitása nőtt; 34 fehérje 83 helyén csökkent a lizinacetiláció | A szívüregi térfogatok és az ejekciós frakció javultak; maga az I-es komplex hibája nem korrigálódott |
| AIF-hiányos egér retinája és rotenonnal kezelt fotoreceptorsejtek | A sejtekben a NADH/NAD+-arány normalizálódott; az oxidatív stressz csökkent | A sejtek ATP-hiánya nem korrigálódott; a mitokondriális stresszútvonalak aktivitása mérséklődött | A retina vastagsága és a fotoreceptor-markerek megőrződtek; a sejttúlélés javult |
| Emberi és patkány-Achilles-ín, oxidáns és kollagenáz okozta károsodás | A NAD+-egyensúly és az összes NAD kémiai állapota a kontrollértékek felé állt helyre | Ahol helyreállás történt, az ATP nőtt, a ROS csökkent | A mátrixmarkerek javultak, kivéve az I-es komplex közvetlen blokádja esetén, amikor a kémiai állapot változott, de a szövet nem javult |
Ahol a redoxállapot korrekciója nem állította helyre a szövetet
A vizsgálatok közül a legrégebbi máig a legélesebb figyelmeztetés. Az energiabevitelük 36 százalékát etanolból fedező patkányokban csökkent a citoszolikus és a mitokondriális NAD+/NADH-arány, mindkét jelzőpárral mérve, és az étrendbe kevert, napi körülbelül 42 mg/kg metilénkék nagyrészt megelőzte ezeket az eltolódásokat. A késői időpontban azonban a máj triacilglicerol-tartalma nagyjából megháromszorozódott, függetlenül attól, hogy jelen volt-e a festék, és a szövettani vizsgálat ugyanazt a centrilobuláris zsírfelhalmozódást mutatta. A szerzők közvetlenül levonták a kényelmetlen következtetést: az etanol oxidációját kísérő redoxeltolódás önmagában nem az, ami a zsírmájat létrehozza. Aki a korrigált arányt a szerv helyreállásaként értelmezi, tévesen ismertetné ezt a tanulmányt. A teljes kísérleti elrendezést, beleértve az azonos mennyiségű táplálékot kapó kontrollokat és az alkoholos befolyásoltság csúcsán végzett éjféli mintavételt, az etanol májra gyakorolt hatását vizsgáló tanulmány ismerteti.
Ezzel érdemes szembeállítani a magas zsírtartalmú étrend melletti májvizsgálatot, amelyben az arány hasonló eltolódása valódi szöveti javulással járt együtt. Májsejtekben és szájon át történő adagolást követően az egérmájban a metilénkék növelte a NAD+/NADH-arányt, és a jelátviteli láncot lépésről lépésre követték: a SIRT1 nőtt, a PGC-1alpha dezacetilálódott, a mitokondriális biogenezis markerei és az oxigénfogyasztás emelkedtek, majd az AMPK, a CPT-1 és a PPARalpha is bekapcsolódott; az AMPK aktivációjáról pedig kimutatták, hogy SIRT1-függő. A magas zsírtartalmú étrenden tartott egerek májában kevesebb zsír halmozódott fel. A felvetett magyarázat szerint a redoxeltolódás itt egy génszabályozási tengelyt aktivált, nem csupán a kémiai egyensúlyt rendezte át, amint azt a SIRT1-et és az AMPK-t vizsgáló májtanulmány részletezi. Ugyanaz a mérési megközelítés, mint az etanolos vizsgálatban, mégis ellentétes szöveti eredmény. A különbség a további jelátviteli útvonalban van, nem pusztán az arányban.
Szív és retina: sirtuinok, acetiláció és helyreállás az ATP helyreállása nélkül
A diabéteszes szíven végzett vizsgálat egy másik sirtuinon keresztül kapcsolja össze a redoxeltolódást a fehérjeacetilációval. A diabéteszes mitokondriumok anyagcsere-enzimein fokozott lizinacetiláció figyelhető meg, amely együtt jár a szubsztrátfelhasználás rugalmatlanságával. A napi 10 mg/kg metilénkék mellett javultak a szívüregi térfogatok és az ejekciós frakció, miközben az I-es komplex alapvető működészavara megmaradt. Izolált mitokondriumokban a metilénkék a 6–18 mikromoláris tartományban dózisfüggően segítette a NADH oxidációját, növelte a SIRT3 aktivitását, és széles körben csökkentette az acetilációt. A tanulmány kifejezetten kitér a szakirodalom más részeiben leírt dózisfüggő viselkedésre: az alacsony koncentrációk a reduktív elektronszállító szerepnek kedveznek, míg a magasabbak nem produktív módon terelhetik el az elektronokat, így a hatás hormetikus, nem pedig monoton. A proteomikai felmérést és a szívméréseket a diabéteszes szív acetilációs vizsgálata ismerteti. Az ezt megalapozó oxidatívstressz-szemléletet az oxidatív stressz és a ROS szabályozásának témaköre tárgyalja.
A retinavizsgálat mutatja a legélesebb szétválást. Az AIF-hiányos Harlequin egerekben, amelyeknél az I-es komplex összeépülési hibája áll fenn, a metilénkék megőrizte a retina vastagságát, a fotoreceptorok külső szegmentumait, valamint a pálcikák, csapok, Müller-sejtek és ganglionsejtek markereit. A rotenonnal kezelt 661W fotoreceptorsejtekben a festék 15 mikromoláris koncentrációnál normalizálta a NADH és a NAD+ arányát, és csökkentette a reaktív oxigénformák mennyiségét, az ATP azonban alacsony maradt a túlélést elősegítő koncentrációknál. A szerkezet és a túlélés az energiaellátás helyreállása nélkül maradt meg, miközben mérséklődött a mitokondriális, nem megfelelően hajtogatott fehérjékre adott válasz és a mitofágia. Ez az eredmény a festéket inkább a reduktív és oxidatív stressz enyhítőjeként, nem pedig az energiaellátás helyreállítójaként helyezi új megvilágításba, amint azt a retina fotoreceptorainak védelmét vizsgáló tanulmány dokumentálja.
Ín: a kísérlet, amelyben a kémiai állapot változott, de a szövet nem javult
Az Achilles-ínon végzett munka egyetlen tanulmányon belül mindkét mintázatot tartalmazza, ezért érdemes alaposan elolvasni. A teljes, kísérleti ágankénti bontás a 2026-os Achilles-tendinopátia-vizsgálat elemzésében található. A beteg ínben NAD+-kimerülést, alacsony NAD+/NADH-arányt, az I-es komplex markereinek alacsony szintjét, alacsony ATP-szintet és rendezetlen kollagénszerkezetet találtak. A metilénkék helyreállította a NAD kémiai állapotát és az ATP-szintet, valamint javította a mátrixmarkereket patkányokon, emberi szövetexplantátumokon és sejtkészítményeken is.
Ezután következett a két beavatkozás. Az I-es komplex rotenonnal történő blokádja mellett a festék továbbra is védte a NAD+ kémiai állapotát és az ATP-hez kapcsolódó mérési mutatókat, de nem enyhítette az oxidáns terhelést, nem állította helyre a kollagénegyensúlyt, és nem őrizte meg az életképességet. Az AIF expressziójának csökkentésekor, amikor az I-es komplex gépezete hiányosan épült fel, nem pedig farmakológiailag volt blokkolva, a festék széles körű helyreállást eredményezett: a NAD-egyensúly, az oxidatív stressz, a membránpotenciál és a kollagénmarkerek terén is. A tanulság pontos. Kedvezőbb NAD-érték akkor is fenntartható, ha az I-es komplex blokkolt, de ebben a kísérleti rendszerben a szövet helyreállása működőképes I-es komplexhez kapcsolódó útvonaltól függött. Ebben a történetben az arány elmozdulása szükséges, de nem elégséges feltétel; ezt a szempontot az ín redoxállapotát vizsgáló tanulmány fejti ki részletesebben.
Hogyan értelmezzük a következő redoxállítást?
Három ellenőrzési szemponttal a legtöbb félreolvasás elkerülhető. Először kérdezzük meg, melyik kompartmenthez tartozik az arány, és melyik jelzőpárral határozták meg. A citoszolikus laktát–piruvát eredmény semmit sem mond közvetlenül a mitokondriális mátrixról. Másodszor kérdezzük meg, hogy a tanulmány arányeltolódásról, nagyobb összkészletről vagy az ATP helyreállásáról számol-e be, és mindegyiket kezeljük külön eredményként. Harmadszor kérdezzük meg, mi maradt hibás: a fennmaradó zsírfelhalmozódás, az I-es komplex nem korrigált hibája és a fennmaradó ATP-hiány egyaránt megjelenik ezekben a tanulmányokban a valódi redoxjavulás mellett.
Mindez nem adagolási útmutató. Mind az öt vizsgálat állatokon, sejteken vagy szövetkészítményeken végzett munka, ellenőrzött károsító hatásokkal: folyékony etanoltartalmú étrendek, streptozotocin okozta diabétesz, az I-es komplex genetikai hibái, rotenon, peroxid, kollagenáz. A tenyésztőedényekben alkalmazott koncentrációk nem válthatók át egyszerű ránézéssel szájon át bevitt dózisokra, és ezekben a tanulmányokban egyetlen ember sem szedett metilénkéket a redoxegyensúly érdekében. A redoxfarmakológia és az adagolás közös tanulsága szűkebb, ugyanakkor hasznosabb bármely protokollnál: a metilénkék oxidálja a NADH-t és eltolja a mért arányt, a sirtuinok egyes szövetekben ezt az eltolódást dezacetilációvá és az anyagcsere átprogramozásává alakítják, az pedig, hogy a szövet is követi-e ezt, olyan működési apparátustól függ, amelyet a festék nem tud pótolni.