
Članak
Metilensko modrilo za bojenje DNA i RNA: primjene na gelovima i membranama
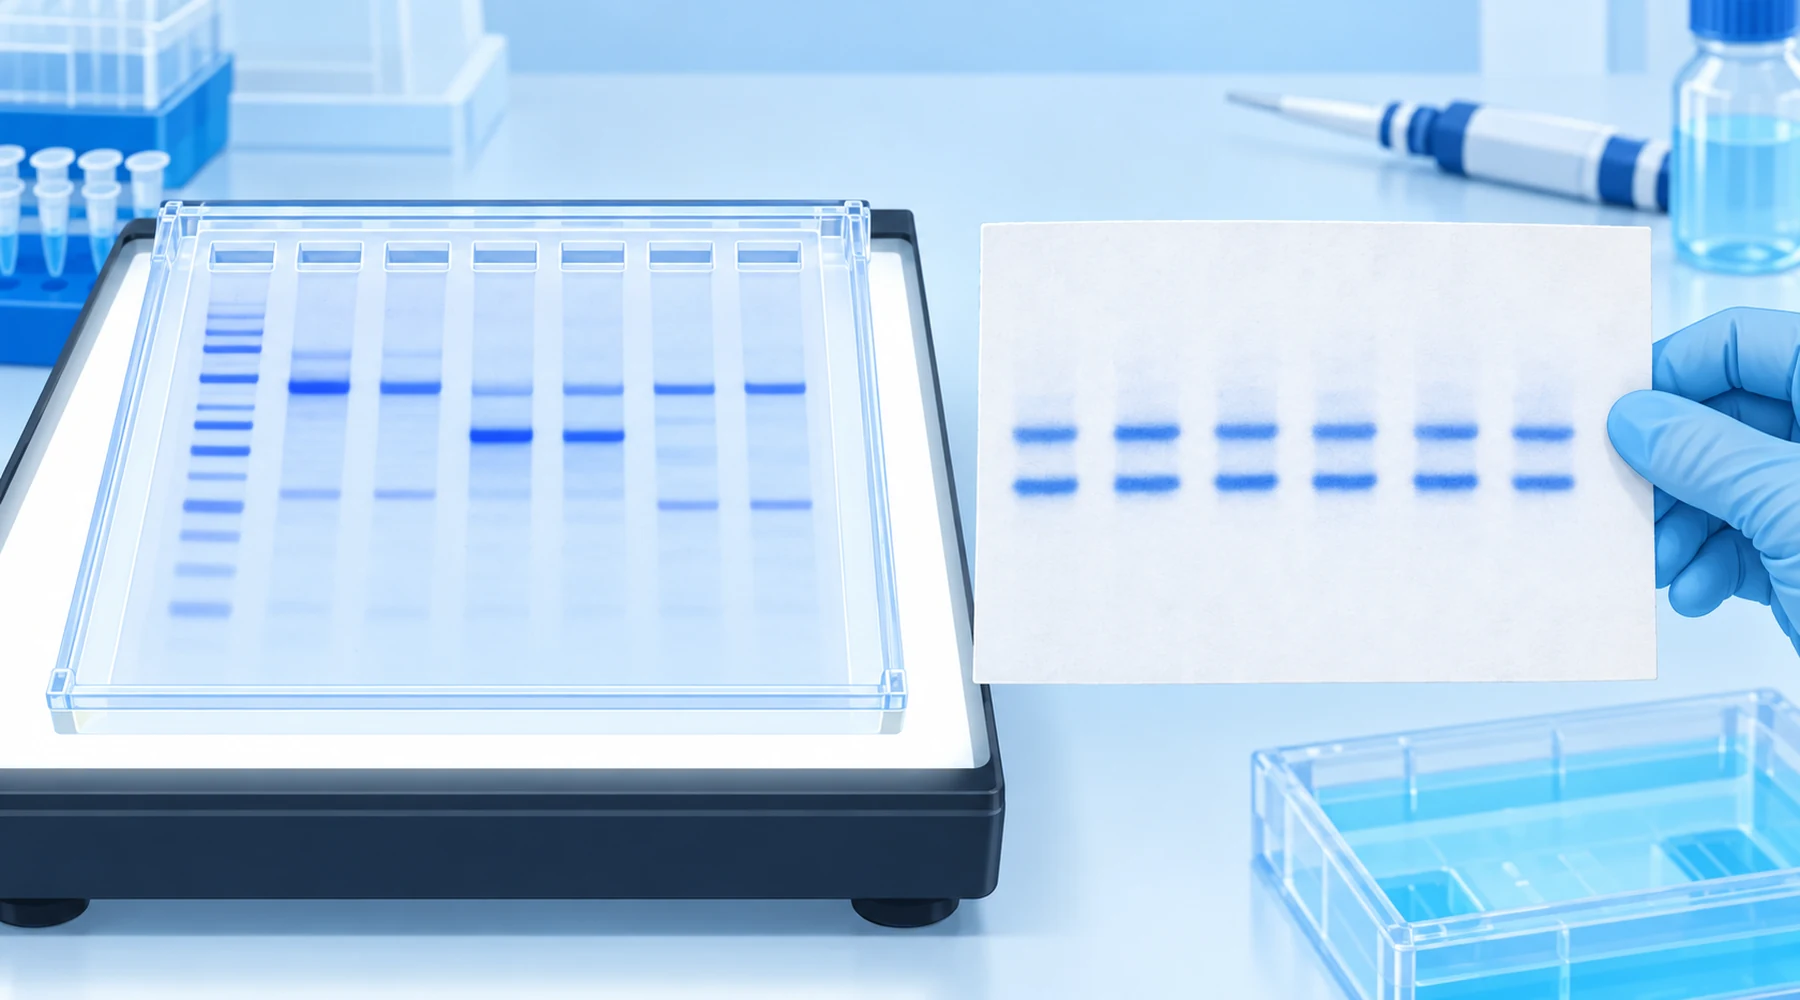
Student provodi elektroforezu u agaroznom gelu, boji ga metilenskim modrilom i ne vidi ništa ondje gdje je očekivao jasno vidljivu vrpcu. Za susjednim radnim mjestom poslijedoktorand istim plavim bojilom boji membranu za Northern blot i za tri minute dobiva oštre ribosomske vrpce. Student zaključuje da postupak s gelom nije uspio. No postupak nije zakazao. Ta su dva zadatka različita, a isto bojilo u njima daje različitu osjetljivost, različitu pozadinu i različita pravila za daljnje korake.
Bojenje DNA i bojenje RNA metilenskim modrilom temelje se na istoj kemiji, ali nemaju istu svrhu. U gelu bojilo pokazuje koliko se nukleinske kiseline nalazi unutar porozne matrice. Na membrani pokazuje je li prijenos uspio i jesu li u staze nanesene jednake količine uzorka. Kad je ta razlika jasna, protokoli, granice detekcije i ograničenja kompatibilnosti dobivaju smisao.
Kratak odgovor
Metilensko modrilo planarno je kationsko bojilo koje se na nukleinske kiseline veže nekovalentno i reverzibilno, kombinacijom elektrostatskog privlačenja prema fosfatima, interkalacije između parova baza i vezanja u mali žlijeb. Upravo je ta reverzibilnost ključna. Vrpce se mogu obojiti, promatrati uz vidljivu svjetlost i dokumentirati, a zatim se bojilo može ukloniti ili se uzorak može pročistiti za kloniranje, hibridizaciju ili ponovno ispitivanje sondom.
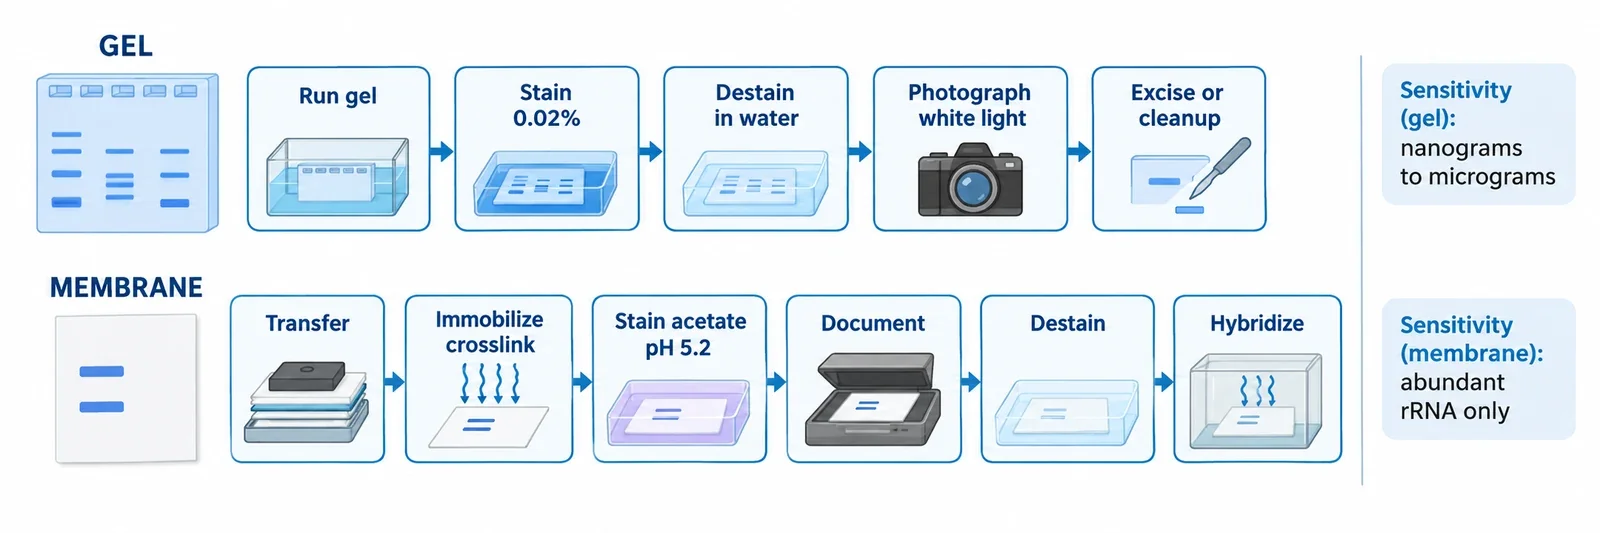
Za bojenje dvolančane DNA metilenskim modrilom u agaroznom gelu standardna brza receptura jest 0.02 posto w/v (200 mikrograma po mL) u vodi, uz približno 15 minuta bojenja i približno 15 minuta ispiranja bojila vodom te promatranje na svjetlosnoj kutiji s bijelom svjetlošću. Za membrane klasična receptura za Northern blot koristi 0.02 do 0.04 posto bojila u natrijevu acetatu pri pH oko 5.2, nekoliko minuta bojenja nakon prijenosa i imobilizacije, a zatim ispiranje vodom i potpuno uklanjanje bojila prije hibridizacije. Osjetljivost je skromna: deseci do stotine nanograma po vrpci u gelu u dobrim uvjetima, dok konzervativne smjernice navode 0.5 do 1 mikrogram. To je više redova veličine iznad granica detekcije etidijeva bromida i bojila SYBR. Na membranama ne postoji korisna jedinstvena granica detekcije pojedinačnog transkripta jer bojilo uglavnom prikazuje obilnu ribosomsku RNA i ukupnu količinu nanesenog materijala. Ni u jednoj recepturi nemojte umjesto predviđenog bojila upotrebljavati maloprodajnu otopinu dodatka prehrani. Validirane metode podrazumijevaju bojilo analitičke čistoće, definirane pufere i rukovanje bez RNaza kada se radi s RNA.
Kako vezanje funkcionira i kada navodi na pogrešan zaključak
Koristan model ima tri dijela. Prvo, pozitivno nabijen prstenasti sustav privlači negativno nabijena fosfatna okosnica. Spektroskopska istraživanja pokazuju da taj elektrostatski doprinos prevladava pri niskoj koncentraciji soli, dok modeliranje i molekulska dinamika potvrđuju interkalaciju i vezanje u mali žlijeb kao stabilne načine vezanja za dvolančanu DNA, kako je sažeto u spektroskopskom istraživanju vezanja metilenskog modrila na DNA. Drugo, postoji određena sklonost prema GC-u: modeliranje daje prednost koracima CpG i GpC, a pokusi pokazuju preferencijalno vezanje za duplekse bogate GC-om u radu o preferencijama interkalacije metilenskog modrila, no vežu se i dupleksi AT. Rutinsko bojenje nije specifično za sekvenciju. Treće, jednolančana DNA i RNA vežu se uglavnom elektrostatskim interakcijama i slaganjem s dostupnim bazama i dupleksnim regijama, zbog čega intenzitet bojenja ovisi o duljini, sekvenciji i sekundarnoj strukturi.
Iz toga proizlaze dvije posljedice. Budući da je vezanje nekovalentno, bojilo se ispire. Vrpce u poliakrilamidu brzo blijede ako se namjerno ne fiksiraju, a posebna inačica s trajnom fiksacijom postoji upravo zato što je uobičajeno bojenje privremeno, kako opisuju Soto i Draper za gelove PAGE. Budući da je bojilo fotosenzibilizator, dugotrajno jako osvjetljavanje obojene DNA u prisutnosti kisika može oksidirati gvanin i naposljetku uzrokovati jednolančane lomove, što je mehanizam detaljno opisan u radu o oksidaciji gvanina fotosenzibiliziranoj metilenskim modrilom. Kratko promatranje pod bijelom svjetlošću izbjegava dobro poznato UV oštećenje povezano s klasičnim postupcima s etidijevim bromidom, a ta je prednost stvarna pri preparativnom izdvajanju. Vidljiva svjetlost blaža je, ali nije bezopasna. Osvjetljavanje neka bude kratko ako će se DNA klonirati. Za širu fotokemijsku podlogu tog upozorenja pogledajte dva puta u fotokemiji metilenskog modrila. Za redoks-par i stanja naboja koja objašnjavaju zašto se oksidirani oblik veže, a reducirani ne, pogledajte kemiju strukture i svojstava metilenskog modrila.
Prvi zadatak: bojenje u gelovima
Bojenje gela odgovara na jedno pitanje: ima li u ovoj vrpci dovoljno nukleinske kiseline da se vidi golim okom. Dvolančana DNA u agarozi najbolje je istražen slučaj. Izvorna metoda bojenja gelova metilenskim modrilom koju su razvili Flores i suradnici potvrdila je brzi protokol s 0.02 posto bojila na 1-postotnoj agarozi i pokazala uspješno izdvajanje i naknadno kloniranje. Isti protokol dobavljača nalazi se na stranici proizvoda metilenskog modrila tvrtke IBI Scientific, na kojoj su usporedno navedene receptura s 0.04 posto za membrane i brza inačica za gelove.
Praktični postupak:
- Provedite elektroforezu u gelu na uobičajen način. Bojite nakon elektroforeze, a ne tijekom nje, osim ako su prijenos ili razlučivanje validirani za izmijenjenu metodu.
- Uronite gel u 0.02 posto w/v metilenskog modrila u destiliranoj vodi uz blago protresanje, približno 15 minuta.
- Ispirite bojilo uz nekoliko izmjena vode, ukupno približno 15 minuta, dok se pozadinsko obojenje matrice ne smanji i vrpce ne postanu jasne.
- Odmah fotografirajte na iluminatoru s bijelom svjetlošću.
Agaroza i poliakrilamid ponašaju se različito. Agaroza zadržava bojilo u matrici, pa je uklanjanje bojila sporiji korak. Tanki poliakrilamidni gelovi brzo se oboje, ali i brzo gube bojilo, što olakšava preparativno izrezivanje vrpci, ali otežava arhiviranje rezultata. Sintetski oligonukleotidi u poliakrilamidu mogu se locirati istom recepturom s 0.02 posto u 20 do 30 minuta uz ponovljena ispiranja vodom, prema ustaljenim metodama PAGE kakve se opisuju u Current Protocols. Za preparativne oligonukleotide opisane su vrlo razrijeđene inačice s oko 0.0002 posto u razrijeđenom TBE-u tijekom nekoliko sati, ali podloga dokaza slabija je.
Važna je razlika između DNA i RNA. Dvolančana DNA omogućuje najjače strukturirano vezanje. RNA i jednolančana DNA također se boje, ali slabije i manje predvidljivo. Kod formaldehidnih agaroznih gelova za RNA većina laboratorija preskače bojenje modrilom u gelu te najprije prenosi RNA na membranu i boji je ondje. Time se slab signal u gelu zamjenjuje oštrijim signalom na membrani, uz dokumentaciju nanesenih količina.
Drugi zadatak: bojenje na membranama
Bojenje membrane odgovara na drugo pitanje: je li prijenos uspio i jesu li staze usporedive. Klasična je primjena reverzibilno bojenje za Northern blot prema Herrinu i Schmidtu, izvorno s 0.04 posto bojila u 50 mM natrijevu acetatu pri pH 5.0 tijekom 2 do 3 minute uz ispiranje vodom, pri čemu se bojilo prije hibridizacije može ukloniti razrijeđenim SDS-om u SSPE-u.
Široko primjenjivana suvremena inačica provodi se ovako:
- Prenesite RNA ili denaturiranu DNA na najlon ili nitrocelulozu, a zatim je imobilizirajte UV umrežavanjem ili zagrijavanjem kako se uzorak ne bi izgubio tijekom bojenja.
- Neobavezno, ali uobičajeno: namočite membranu u 5-postotnoj octenoj kiselini približno 15 minuta.
- Bojite 5 do 10 minuta u 0.02 do 0.04 posto metilenskog modrila u 0.3 do 0.5 M natrijevu acetatu pri pH oko 5.2.
- Isperite i uklanjajte bojilo vodom 5 do 15 minuta, dokumentirajte rezultat, a zatim uklonite preostalo bojilo prije hibridizacije.
Pozitivno nabijen najlon prevladava u postupcima Northern blot. Nitroceluloza također funkcionira uz isti postupak s octenom kiselinom i acetatom. Snimka služi za potvrdu prijenosa, usporedbu vrpci 28S i 18S (ili 23S i 16S za bakterijsku RNA), označavanje ljestvica i standarda te vođenje okvirne evidencije za normalizaciju prema ukupnoj RNA. Objavljene metode Northern blot kvantificiraju obojene ribosomske vrpce radi provjere nanesenih količina, uključujući istraživanje iz područja mljekarstva u kojem su korištene ribosomske vrpce obojene metilenskim modrilom za normalizaciju. Membrane za Southern blot mogu se vizualizirati na isti način, ali bojilo je mnogo ustaljenije kao provjera nanesenih količina i prijenosa kod Northern blota, a DNA za Southern blot denaturira se prije prijenosa, pa se vrijednosti osjetljivosti za gelove ne mogu izravno primijeniti.
Granice detekcije i pozadina: gdje modrilo zaostaje
Usporedba u nastavku namjerno je približna. Učinak bojila ovisi o postotku gela, širini vrpce, optici i dosljednosti uklanjanja bojila. Svaku brojku smatrajte procjenom reda veličine, a ne specifikacijom.
| Bojilo i format | Približna detekcija po vrpci | Tumačenje |
|---|---|---|
| Metilensko modrilo, dsDNA u agarozi | 40 do 250 ng u optimiziranim uvjetima; 0.5 do 1 mikrogram prema konzervativnoj procjeni | Dovoljno za preparativne količine i nastavne gelove. Slabo za vrpce s količinama u tragovima. |
| Metilensko modrilo, kratka ssDNA ili RNA ili oligonukleotidi u PAGE-u | Otprilike 0.1 do 0.5 mikrograma | Ovisi o duljini i strukturi. Nema univerzalne granice. |
| Etidijev bromid, dsDNA u agarozi | Oko 1 do 10 ng | Otprilike četiri puta osjetljiviji od optimiziranog modrila u usporedbi Floresa i suradnika. Zahtijeva UV. |
| SYBR Green I, dsDNA | Oko 60 pg | Potrebno je snimanje fluorescencije. |
| SYBR Gold, DNA i RNA | Oko 25 pg | Više od deset puta osjetljiviji od etidijeva bromida u nekoliko formata. |
| Bojenje srebrom, nukleinske kiseline u PAGE-u | Oko 0.3 do 0.9 ng; zabilježeno je 100 pg RNA u optimiziranom slijedu bojenja modrilom pa srebrom | Vrlo osjetljivo, ali kemijski zahtjevno i nepovoljno za izdvajanje uzorka. |
| Toluidinsko modrilo, RNA i oligonukleotidi u PAGE-u | Radne količine od nekoliko stotina ng, dokumentirano oko 250 ng | Vidljiva svjetlost kao kod metilenskog modrila, ali bez standardizirane granice usporedive sa specifikacijama za SYBR. |
Kontrola pozadine određuje je li skroman signal upotrebljiv. Slobodno bojilo intenzivno je obojeno, pa se kontrast postiže uklanjanjem nevezanog bojila bez uklanjanja vezanog. Koncentriranije bojilo rijetko povećava osjetljivost. Uglavnom produljuje vrijeme uklanjanja bojila. Provedite seriju razrjeđenja na upravo onom gelu, membrani i kameri koje upotrebljavate te koristite samo raspon u kojem integrirana gustoća ostaje proporcionalna unesenoj količini. Metilensko modrilo omogućuje semikvantitativnu normalizaciju nanesenih količina. Ono nije kvantitativna metoda širokog dinamičkog raspona jer se kapacitet membrane, učinkovitost prijenosa, zasićenje i uklanjanje bojila razlikuju od staze do staze.
Ograničenja kompatibilnosti: što ostaje upotrebljivo nakon bojenja
Kloniranje nakon bojenja modrilom dokazano je. Flores i suradnici izrezali su obojene agarozne vrpce, izdvojili DNA te proveli ligaciju i transformaciju, pri čemu su zabilježili bolje rezultate kloniranja nego nakon primjene etidijeva bromida uz UV. Vjerojatan je razlog manje fotooštećenje, a ne korist od samog bojila. Izlaganje bijeloj svjetlosti neka bude kratko, a izdvojenu DNA pročistite uobičajenim postupkom ekstrakcije iz gela.
Za PCR i sekvenciranje dokazi su oskudniji. Preostalo bojilo veže se za nukleinske kiseline, stoga ga uklonite i pročistite uzorak prije enzimskih koraka. Očekuje se da će pravilno pročišćena DNA iz gela obojenog modrilom biti upotrebljiva, ali podnošljivost izravnog prijenosa ostataka bojila za različite polimeraze i kemijske sustave za sekvenciranje nije dobro kvantificirana. Nemojte je pretpostavljati.
Hibridizacija na blotu kompatibilna je kada se strogo poštuje redoslijed: prijenos, imobilizacija, bojenje, dokumentiranje, uklanjanje bojila, hibridizacija. Taj je slijed osnova metode Herrina i Schmidta. Bojenje prije prijenosa ili preskakanje uklanjanja bojila druga je metoda i zahtijeva vlastitu validaciju. Nakon uklanjanja bojila standardno uklanjanje sondi i ponovno ispitivanje sondom odvijaju se uobičajeno. Za bojenje stanica istom skupinom bojila i objašnjenje zašto se pristup za fiksirane razmaze ne može prenijeti na metode za žive stanice pogledajte atlas bojenja za mikroskopiju.
Izrezivanje vrpci funkcionira za preparativnu agarozu i za oligonukleotide u PAGE-u locirane modrilom, pod uvjetom da se izbjegne inačica s trajnom fiksacijom. Elektroelucija nakon uklanjanja bojila kemijski je moguća kod reverzibilnog vezanja, ali kontrolirani podaci o prinosu specifični za metilensko modrilo oskudni su. Nakon elucije uklonite soli ili provedite precipitaciju.
Problemi koji se ponavljaju
Slabo vidljive vrpce u gelu obično znače da je masa premala za kolorimetrijsko bojilo, osobito kod kratkih jednolančanih ciljeva ili ciljnih RNA. Nanesite više uzorka, upotrijebite svježe bojilo, produljite bojenje prije povećanja koncentracije i ranije zaustavite uklanjanje bojila. Jednolično plav gel bez kontrasta obično znači prekomjerno bojenje ili premalo izmjena vode. Blijeđenje vrpci u PAGE-u očekivano je kemijsko ponašanje, a ne neuspjelo bojenje. Fotografirajte brzo. Neujednačena pozadina membrane upućuje na nabore, mjehuriće, otiske prstiju, neujednačeno protresanje ili mjestimično neuspješan prijenos. Nemojte to tumačiti kao nejednake nanesene količine bez kontrole hibridizacijom. Razmazan i slab ribosomski obrazac može značiti razgradnju, ali i nepotpun prijenos, premalu količinu ukupne RNA (uobičajene staze sadrže od nekoliko do nekoliko desetaka mikrograma) ili prekomjerno uklanjanje bojila. Bojilo prikazuje obilnu ribosomsku RNA. Ne prikazuje specifičan transkript. To je zadatak sonde.
Sigurnost i rukovanje bez pretjeranih tvrdnji
Metilenskim modrilom jednostavnije je rukovati nego etidijevim bromidom, ali nije bezopasno. Aktualni sigurnosno-tehnički list tvrtke MilliporeSigma svrstava bojilo u kategoriju 4 akutne oralne toksičnosti, štetno ako se proguta, uz zbrinjavanje odobrenim putem za otpad prema sigurnosno-tehničkom listu tvrtke Sigma-Aldrich za metilensko modrilo. Etidijev bromid nosi stroža upozorenja o genotoksičnosti, uključujući sumnju na učinke na zametne stanice u njegovu sigurnosno-tehničkom listu tvrtke Sigma-Aldrich za etidijev bromid, a njegovi se gelovi i otopine uobičajeno odvajaju kao opasan kemijski otpad, kako je navedeno u vodiču tvrtke Thermo Fisher za bojila za nukleinske kiseline. Za oba bojila slijedite sigurnosno-tehničke listove i pravila ustanove. Suho bojilo čuvajte dobro zatvoreno i na suhom, radnu otopinu bojila ponovno upotrebljavajte samo kako protokol dopušta, obojene membrane čuvajte suhe između listova filtarskog papira i fotografirajte gelove prije nego što vrpce nestanu difuzijom.
Zapamtite praktičnu razliku. Gelovi provjeravaju vidljivost pri velikoj nanesenoj količini pod bijelom svjetlošću. Membrane provjeravaju prijenos i nanesene količine prije nego što sonda obavi osjetljivu detekciju. Jedno bojilo služi objema svrhama, uz skromnu osjetljivost, reverzibilno vezanje i strog redoslijed koraka.