
Artikkeli
Kun metyleenisininen häiritsee koetta, jolla sitä mitataan
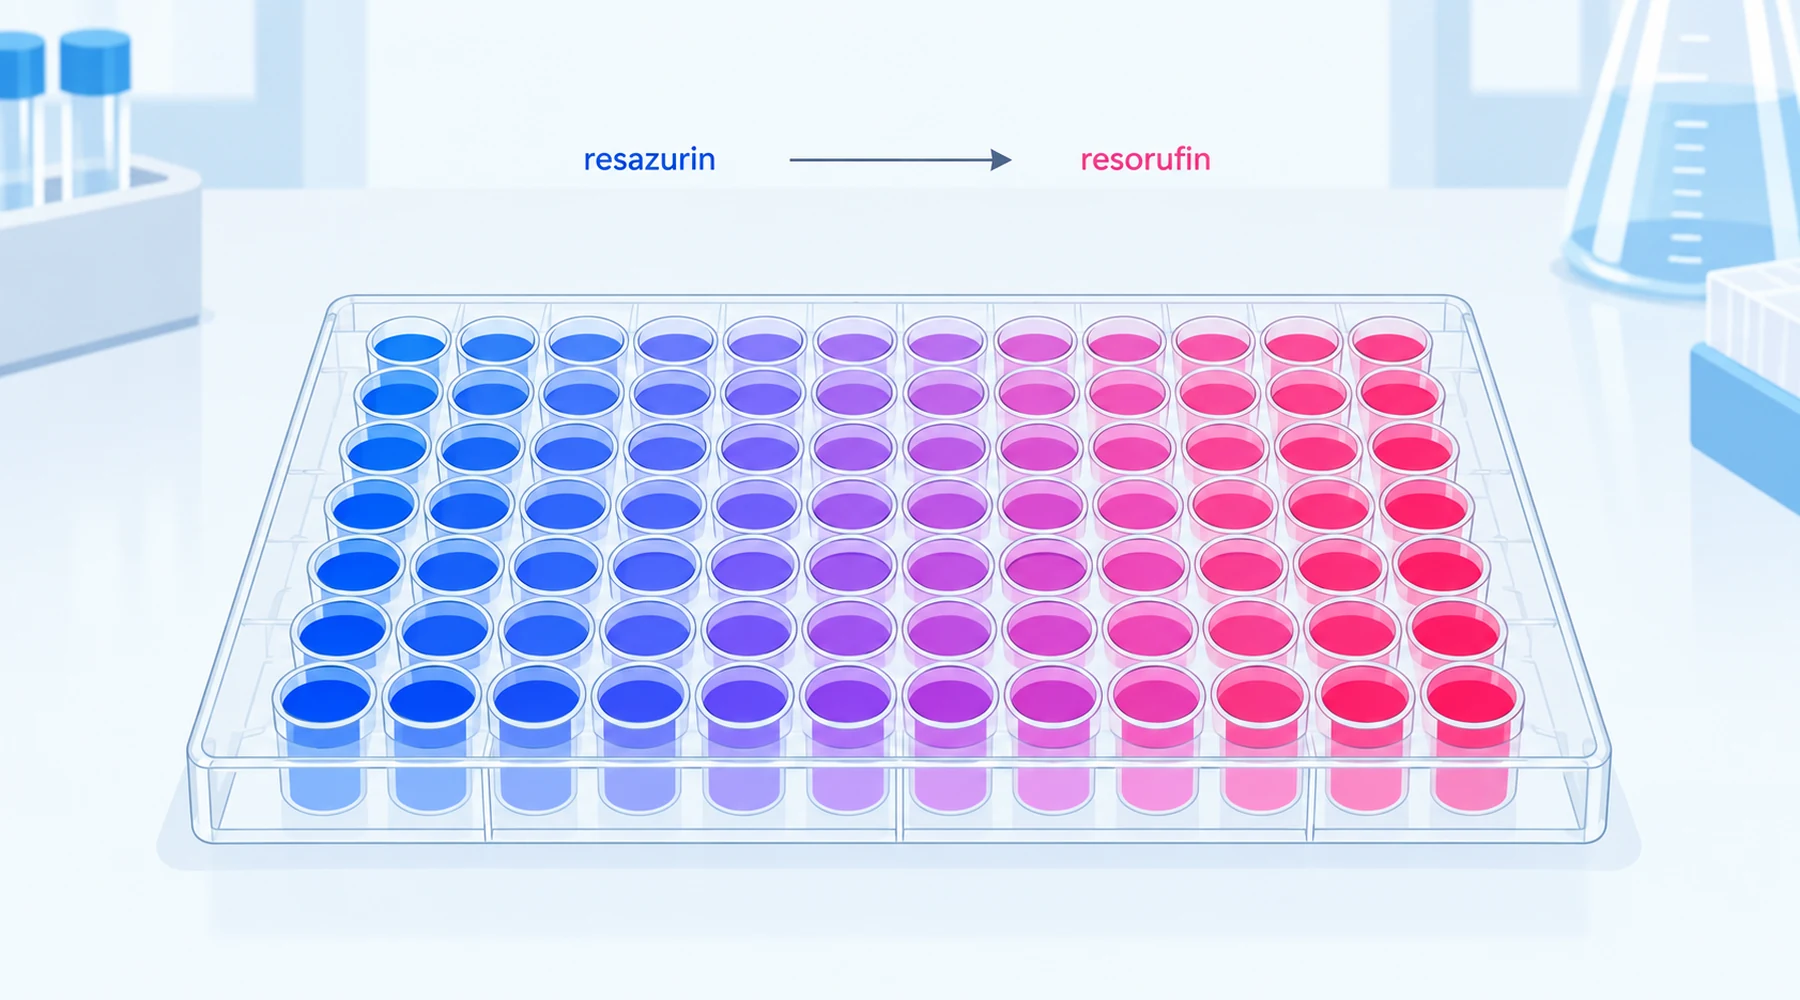
Eräs laboratorio kasvattaa seeprakalan alkioita metyleenisinisessä tavanomaisessa kasvatuspitoisuudessa ja mittaa sitten aineenvaihduntaa kahdella tavalla. Ensimmäisenä päivänä Seahorse-analysaattori näyttää hapenkulutuksen kasvavan. Neljäntenä ja viidentenä päivänä Alamar Blue -levymittaus näyttää energiankulutuksen vähenevän. Sama väriaine, sama kalalinja, vastakkaiset päätelmät. Sitten tarkastellaan huomaamatonta kontrollia: kuopat, joissa on metyleenisinistä ja Alamar Blue -reagenssia mutta ei lainkaan kaloja, antavat nekin heikomman signaalin kuin pelkkä reagenssi. Osa tuloksesta oli biologiaa. Osassa väriaine arvioi omaa suoritustaan. Tämä jako, joka dokumentoitiin vuonna 2025 Communications Biology -lehdessä julkaistussa tutkimuksessa metyleenisinisen vaikutuksista kehittyviin seeprakaloihin, on metyleenisinisen aiheuttamien määrityshäiriöiden tavallinen ilmenemismuoto. Siksi redox-aktiiviset väriaineet vaativat kontrolleja, joita tavalliset testiyhdisteet eivät tarvitse.
Mitä resatsuriinimääritys oikeastaan kertoo
Alamar Blue on resatsuriiniliuoksen tuotenimi, joten metyleenisinisen aiheuttama Alamar Blue -häiriö ja sen aiheuttama resatsuriinimäärityksen häiriö tarkoittavat samaa yhteentörmäystä. Hapettunut resatsuriini on sinistä ja fluoresoi hyvin heikosti. Aineenvaihdunnallisesti aktiiviset solut pelkistävät sen resorufiiniksi, joka on vaaleanpunaista ja fluoresoi voimakkaasti eksitaation ollessa noin 560 nm ja emission noin 590 nm. Valmistajan mikrolevyprotokollan mukaan käyttökelpoiset alueet ovat eksitaatiolle noin 530–570 nm ja emissiolle 580–610 nm. Pelkistymisen jatkuessa resorufiini muuttuu heikosti fluoresoivaksi dihydroresorufiiniksi. Siksi liian suuri solumäärä tai liian pitkä inkubointi saa kalibrointikäyrän taipumaan alaspäin sen yläpäässä.
Elektronit tulevat pääosin NADH:sta ja NADPH:sta solun reduktaasien ja diaforaasien välityksellä sytosolissa, mikrosomeissa ja mitokondrioissa. Mittaustulos kuvaa siis yhteenlaskettua pelkistyskapasiteettia, ei elävien solujen määrää eikä mitokondrioita erikseen. Voimakkaampi signaali voi tarkoittaa enemmän soluja, suurempaa solukohtaista pelkistysvirtaa tai molempia. NADH:n kulkua uudelleen ohjaava yhdiste muuttaa signaalia tappamatta yhtäkään solua. Pidä tämä lause mielessä, sillä NADH:n kulun uudelleenohjaus on metyleenisinisen ominaispiirre.
Kaksi häiriöreittiä, yksi heikentynyt signaali
Metyleenisininen vääristää resatsuriinimittausta kahden toisistaan riippumattoman reitin kautta, ja kumpikin niistä yksinään heikentää mitattua fluoresenssia.
Reitti 1 on optinen. Metyleenisininen absorboi voimakkaasti punaisella alueella. Sen monomeerin absorptiokaista on noin 660–665 nm:n kohdalla ja dimeerin olake noin 607–610 nm:n kohdalla; olakkeen häntä ulottuu kohti resorufiinin noin 590 nm:n emissiota. Valon kulkureitillä oleva väriaine absorboi osan eksitaatiovalosta ja absorboi uudelleen osan emittoituneesta fluoresenssista. Tämä sisäsuodatinefekti heikentää kuopan signaalia, vaikka resorufiinin tuotanto ei muuttuisi. Myös spektri muuttuu väriaineen tilan mukana: metyleenisinisen spektrien faktorianalyysi vedessä ja syklodekstriiniliuoksissa erottaa monomeerin, dimeerin ja isäntä–vieras-kompleksin kolmeksi muodoksi, joilla on erilaiset ekstinktiokertoimet alueella 500–700 nm. Optisen virheen suuruus muuttuu siis pitoisuuden, aggregaation ja sitoutumisen mukana. Erota kokeellisesti pelkkä optinen vaimennus molekyylitason fluoresenssin sammumisesta jäljempänä kuvatulla lisäyssaantokokeella, sillä korjaustapa on eri.
Reitti 2 on redox-kilpailu. Hapettunut metyleenisininen vastaanottaa elektroneja NAD(P)H:lta ja muodostaa väritöntä leukometyleenisinistä. Molekylaarinen happi hapettaa tämän takaisin siniseksi muodoksi, jolloin syntyy pelkistyneitä happituotteita, kuten vetyperoksidia. Jokainen kierros kuluttaa pelkistysekvivalentteja, jotka muuten pelkistäisivät resatsuriinia, ja samalla se kuluttaa happea sekä tuottaa sivutuotteena peroksidia. Heikentynyt Alamar Blue -signaali voi siis tarkoittaa, että elektronit kulkivat metyleenisinisen kierron kautta eivätkä resorufiiniin. Levymittauksessa tämä näyttää heikentyneeltä aineenvaihdunnalta riippumatta siitä, mitä solut tekivät. Sama kemia selittää vastakkaissuuntaisen sudenkuopan happimittauksissa: kun happi hapettaa pelkistyneen väriaineen uudelleen, syntyy kemiallista hapenkulutusta ilman biologista toimintaa. Siksi väriaineen nollanäytteet kuuluvat myös hengitysmittauksiin, kuten hapenkulutuksen, ATP:n ja kalvopotentiaalin mittausten vertailu kuvaa mitokondriotutkimuksen osalta.
Sekä signaali että biologia voivat muuttua
Seeprakalatutkimus on arvokas juuri siksi, ettei se tyydy helppoon joko–tai-tulkintaan. Biologiset muutokset olivat todellisia: hapen peruskulutus kasvoi 1 päivän ikäisillä alkioilla kummassakin kasvatuspitoisuudessa, ATP:hen kytkeytynyt hengitys lisääntyi pienemmässä pitoisuudessa, JC-10-koettimella mitattu kalvopotentiaali kasvoi toisena päivänä ja mitokondrioiden kompleksien transkriptimäärät vähenivät ensimmäisenä ja neljäntenä päivänä. Myös artefakti oli todellinen: ennen Alamar Blue -vaihetta kolmesti pestyjen kalojen päässä, suussa ja hajualueella näkyi edelleen sinistä väriä. Soluttomissa kuopissa, joissa oli väriainetta ja reagenssia, fluoresenssi heikkeni hieman mutta merkitsevästi ilman kaloja. Kokonaisten eliöiden Alamar Blue -signaalin lasku neljäntenä ja viidentenä päivänä oli solutonta vaikutusta suurempi. Siksi kirjoittajat tulkitsivat tuloksen aidoksi aineenvaihdunnan muutokseksi, jota tarkasteltiin hieman vääristävän linssin läpi. Tämä on oikea ajattelumalli. Redox-kierrossa toimiva yhdiste, joka on myös sininen valon absorboija, vaikuttaa tavallisesti samanaikaisesti sekä tutkittavaan reittiin että raportointikemiaan. Kontrollien tehtävä on määrittää kummankin osuus, ei julistaa toista kuvitteelliseksi. Syklodekstriiniin sitoutumista koskevasta tutkimuksesta saadaan samansuuntainen opetus: kun isäntämolekyyli sitoi väriaineen, värjäytyminen ja glukoosinoton aktivoituminen heikkenivät yhdessä. Tämä viittasi siihen, että aineenvaihdunnallinen vaikutus edellytti suoraa vuorovaikutusta väriaineen kanssa eikä johtunut epämääräisestä redox-kohinasta. Väriaineen fysikaalisen mittaustuloksen ja toiminnallisen mittaustuloksen yhdistäminen erottaa juuri mekanismin artefaktista. Väriainepohjaisten aineenvaihduntaväitteiden arviointiopas kehittää tätä toimintatapaa edelleen.
Kontrollit, jotka erottavat vaikutukset toisistaan
Tee nämä kontrollit ennen kuin tulkitset yhtäkään metyleenisinistä sisältävän resatsuriinilevyn tulosta. Pitoisuuksien, väliaineen, inkubointiajan ja valaistuksen on vastattava solukoetta täsmälleen, sillä kaikki edellä kuvatut reitit riippuvat niistä.
| # | Kontrolli | Mitä se havaitsee | Hyväksymiskriteeri | Jos kriteeri ei täyty |
|---|---|---|---|---|
| 1 | Väliaine ja väriaine, ei reagenssia eikä soluja | Väriaineen taustasignaali määrityksen aallonpituuksilla | Tausta on pieni verrattuna solujen signaaliin | Vähennä pitoisuuskohtaiset nollanäytteet, älä koskaan yhtä yhteistä nollanäytettä |
| 2 | Väliaine ja reagenssi, ei väriainetta eikä soluja | Reagenssin spontaani pelkistyminen | Matala ja vakaa perustaso koko inkuboinnin ajan | Lyhennä inkubointia, vaihda väliainetta tai hyväksy korkeampi alaraja |
| 3 | Väliaine, väriaine ja reagenssi, ei soluja | Väriaineen ja reagenssin suora kemiallinen vuorovaikutus | Sama kuin kontrollissa 2 kohinan rajoissa | Raportoi poikkeama, älä selitä sitä solujen toiminnalla |
| 4 | Resorufiinilisäys vertailukuoppiin, joissa on vain kantajaliuosta, ja väriainetta sisältäviin kuoppiin | Optinen vaimennus tai fluoresenssin sammuminen | Yhtä suuri saanto molemmissa matriiseissa | Määritä häviö kullekin väriaineannokselle ja korjaa se tai vaihda mittausmenetelmää |
| 5 | Soluton väriaineen siirtymä pestynä ja pesemättömänä | Pesuvaiheiden jälkeen jäljelle jäävä väriaine | Pesu poistaa soluttoman vaikutuksen | Soluihin päätynyt väriaine jää jäljelle, joten kontrollit 3 ja 4 ovat edelleen tarpeen |
Kontrollit 3 ja 4 ovat pari, jonka useimmat julkaisut ohittavat ja jota useimmat metyleenisinistä käsittelevät julkaisut tarvitsevat. Kontrolli 3 havaitsee kemian ja kontrolli 4 optiikan vaikutukset. Yhdessä ne rajaavat artefaktin suuruuden ennen biologisten väitteiden esittämistä.
Riippumattomat mittaukset ja niiden omat varaukset
Yksikään toinen määritys ei yksin vahvista ensimmäistä. Kukin eri periaatteeseen perustuva mittaus välttää yhden häiriöreitin mutta jää alttiiksi toiselle. Valitse siis yhdistelmä, jonka katvealueet eivät osu päällekkäin. Redox-aktiivisten yhdisteiden määrityksenvalintamatriisi käy läpi yhdistelmien valintaperusteet, ja kalvopotentiaalikoettimien opas käsittelee fluoresenssiin liittyviä varauksia yksityiskohtaisesti.
Seahorse-hapenkulutusmittaus seuraa elektronien siirtymistä happeen eikä resorufiiniin ja kiertää näin raportointikemian kokonaan. Väriaine kuluttaa kuitenkin happea myös kemiallisesti, joten mitokondriottomat väriaineen nollanäytteet täydellisessä väliaineessa ovat välttämättömiä. ATP:n lusiferaasimääritykset käyttävät bioluminesenssia resorufiinin fluoresenssin sijaan. Näin ne välttävät sekä optisen päällekkäisyyden että reduktaasikilpailun, mutta mittaavat ATP-varannon tasapainoa eivätkä synteesivirtaa. Kalvopotentiaalikoettimet, kuten TMRM ja JC-10, kertovat, säilyykö varausgradientti. Ne kuitenkin fluoresoivat samalla näkyvän valon alueella, jolla väriaine absorboi. Siksi jäljelle jäävä sininen värjäytyminen vaikeuttaa myös niiden käyttöä, ja ne tarvitsevat pelkkää väriainetta sisältävät nollanäytteet jokaiselle väriaineannokselle. Hengityskompleksien alayksiköiden transkriptimittaukset välttävät optiset häiriöt kokonaan ja kokoavat tietoa tuntien ajalta, mikä täydentää minuuttien aikaskaalalla tehtäviä levymittauksia.
Metyleenisinistä koskevan aineenvaihduntaväitteen uskottava vähimmäisnäyttö on siis seuraava: resatsuriinitulos kontrolleineen 1–4, yksi muuhun fysikaaliseen periaatteeseen perustuva, resatsuriinista riippumaton päätetulos sekä selkeä tulkinta siitä, heijastaako muutos solumäärää, solukohtaista pelkistysvirtaa vai molempia. Tätä suppeampi näyttö ei anna lukijalle mahdollisuutta erottaa hiljaisempaa aineenvaihduntaa himmeämmästä kuopasta.
Häiriökontrollien työpohja
Kopioi tämä työpohja laboratoriopäiväkirjaan jokaista koetta varten, jossa väriaine yhdistetään redox-reportteriin. Se on tätä artikkelia varten laadittu työkalu: täytä yksi rivi kutakin väriainepitoisuutta kohti.
A. Signaalireitit. Kirjaa jokaiselle pitoisuudelle odotettu monomeerien ja dimeerien vallitsevuus (pieni mikromolaarinen pitoisuus verrattuna kymmeniin mikromolaareihin ja sitä suurempiin pitoisuuksiin), kuopan lopullisen sisällön absorbanssi aallonpituudella 590 nm soluttomassa kuopassa sekä resorufiinilisäyksen saantoprosentti. Jos saanto jää alle noin 90 prosentin, käsittele kaikkia kyseisen annoksen fluoresenssiarvoja optisesti vaimentuneina, älä biologisesti täsmällisinä.
B. Kemian tarkistus. Kirjaa soluttoman väriaineen ja reagenssin yhdistelmän fluoresenssi prosenttiosuutena pelkän reagenssin perustasosta jokaisella mittaushetkellä. Jos poikkeama kasvaa ajan myötä, väriaine reagoi raportointijärjestelmän kanssa määrityksen aikana ja pelkät päätepistemittaukset johtavat harhaan. Harkitse kineettisiä mittauksia tai toista reportteria.
C. Biologinen ristiintarkistus. Nimeä tähän kokeeseen valittu eri periaatteeseen perustuva mittaus, sen oma väriaineen nollanäyte sekä ennustettu tulos siinä tapauksessa, että resatsuriinitulos on aito. Aidon aineenvaihdunnan heikkenemisen pitäisi muuttaa riippumatonta päätetulosta johdonmukaiseen suuntaan. Jos riippumaton päätetulos on ristiriidassa resatsuriinituloksen kanssa, älä vielä luota kumpaankaan tulokseen. Suunnittele koe uudelleen sen sijaan, että laskisit tulosten keskiarvon.
D. Päätelmälause. Kirjoita yksi seuraavan mallin mukainen lause: ilmoitetulla annoksella ja kehitysvaiheessa resatsuriinisignaali muuttui ilmoitetun määrän, josta ilmoitettu osuus on solutonta artefaktia, ja riippumaton päätetulos (on yhtäpitävä tai ristiriidassa). Jos jokin kohta jää tyhjäksi, koe ei ole valmis.
Metyleenisininen on edelleen hyödyllinen aineenvaihdunnan koetin, ja seeprakalatutkimus osoittaa aitoja mitokondriovaikutuksia annoksilla, joita monet tutkimusyksiköt kaatavat päivittäin viemäriin. Väriaine vain vaatii, että sitä mitataan välineillä, joihin se ei pääse vaikuttamaan. Kun annat sille pelkkää väriainetta sisältävät kuopat, lisäyssaantokokeen ja yhden eri fysiikkaan perustuvan mittauksen, häiriö lakkaa olemasta sudenkuoppa ja muuttuu numerolla ilmaistavaksi suureeksi.