
Artikkeli
Metyleenisininen ja typpioksidi: NOS, cGMP ja verisuonten signalointi
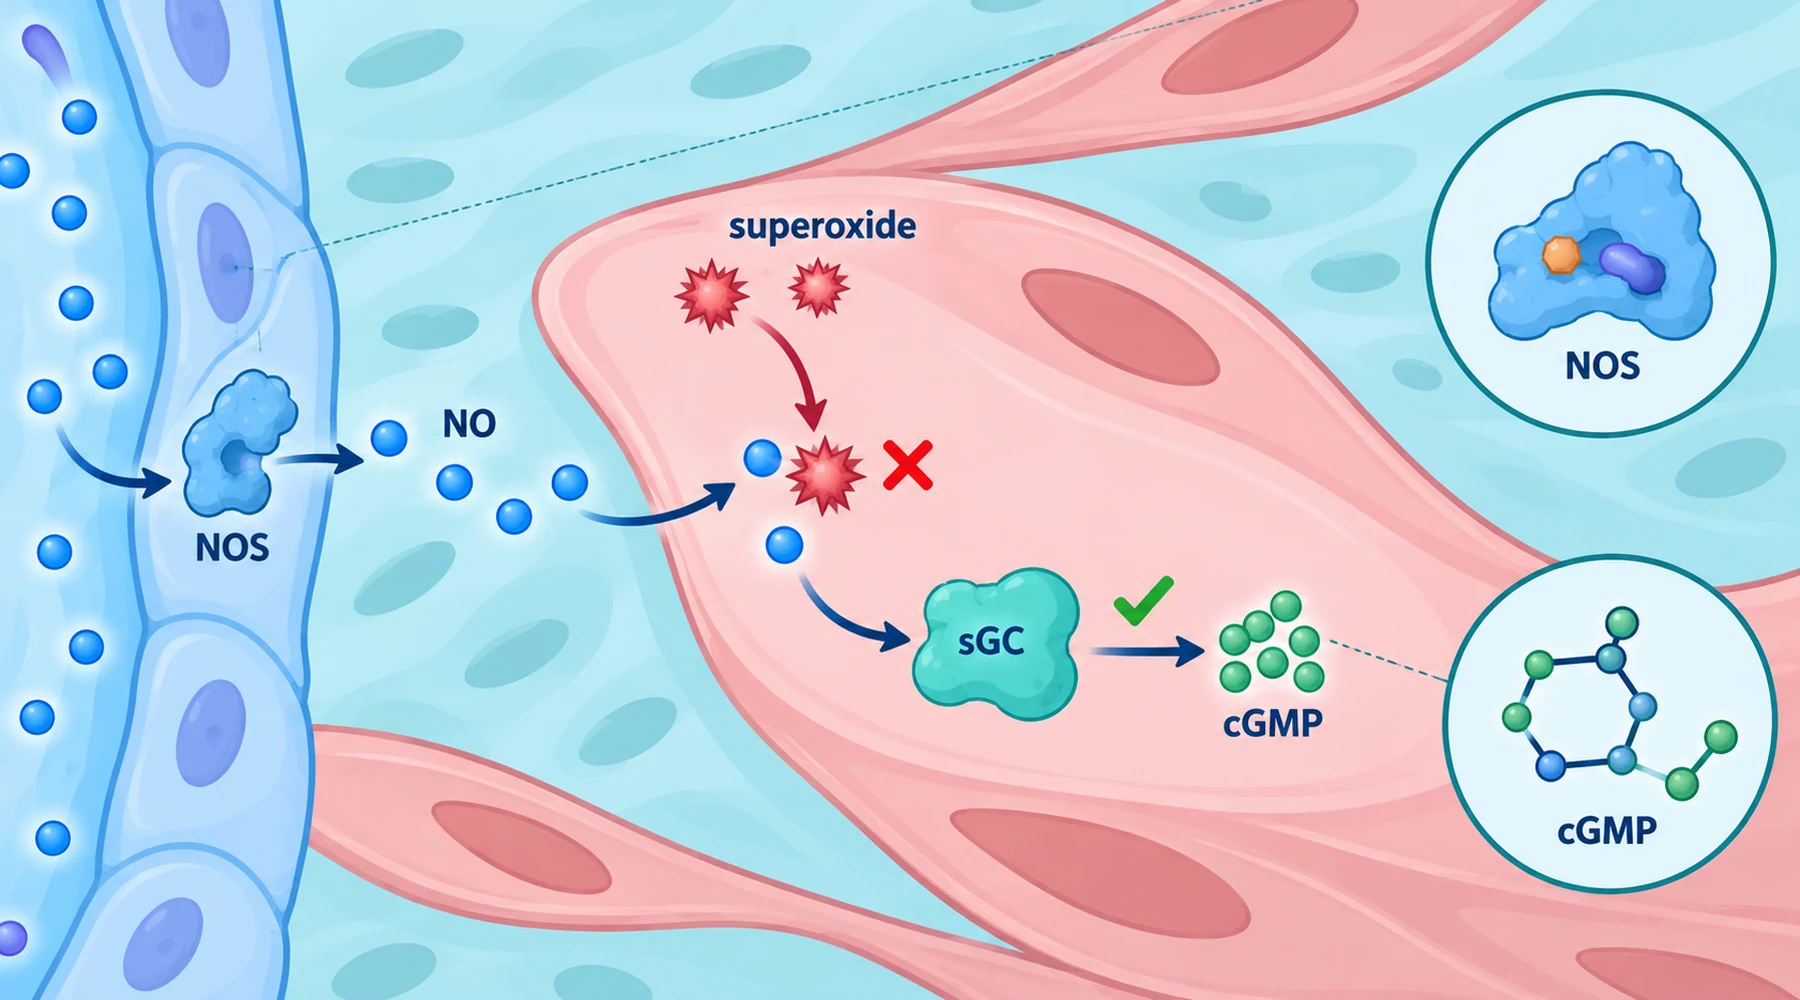
Kysymys kuulostaa yksinkertaiselta: estääkö metyleenisininen typpioksidin toimintaa? Laboratoriossa vastaus jakautuu neljään erilliseen kysymykseen, joista jokaista tutkitaan erilaisella kokeella. Niiden sekoittaminen on tärkein syy siihen, että metyleenisinistä ja typpioksidia käsittelevät tekstit kuulostavat varmoilta mutta jäävät epämääräisiksi.
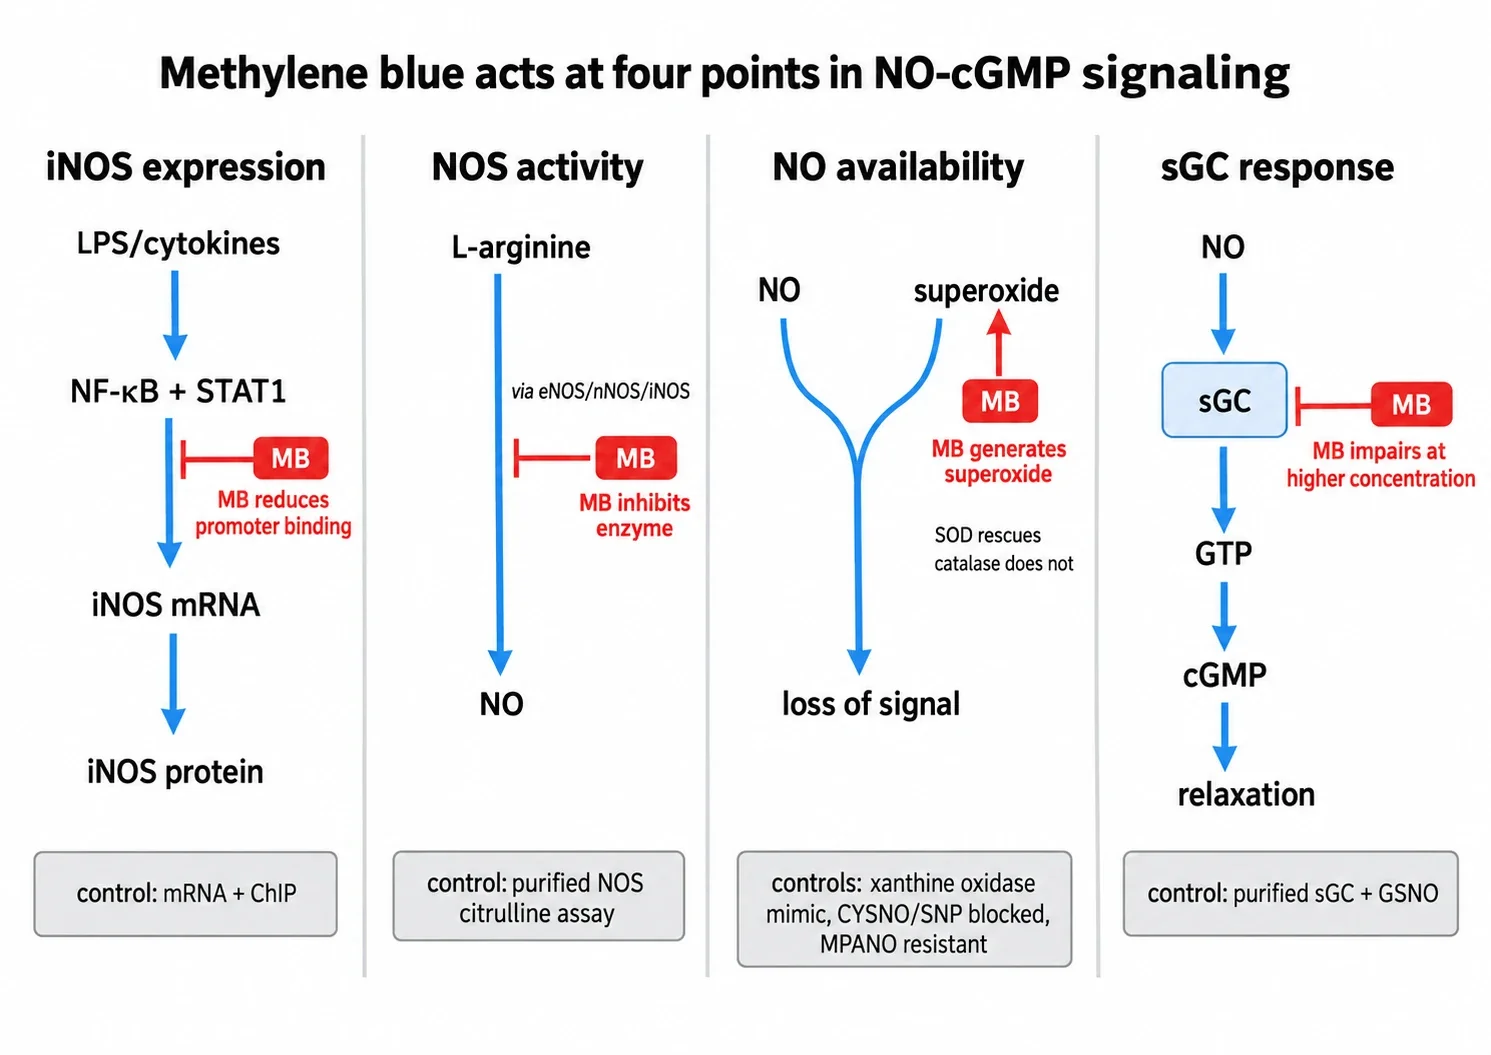
Ajattele typpioksidisignaalia ketjuna, jossa on neljä lenkkiä. Geeni transkriptoidaan typpioksidisyntaasin tuottamiseksi. Entsyymi muuntaa arginiinin typpioksidiksi. Kaasu diffundoituu kohteeseensa ennen kuin se reagoi jonkin muun kanssa. Liukoinen guanylaattisyklaasi havaitsee sen ja tuottaa syklistä GMP:tä. Metyleenisinisen vaikutuksista ketjun jokaiseen lenkkiin on julkaistu tutkimuksia, mutta näyttö on peräisin erilaisista koejärjestelmistä, eri pitoisuuksista ja eri isoformeista. Yhden lenkin kohdalla saatu tulos ei osoita vaikutusta toiseen.
Tavanomainen ketju selkeästi kuvattuna
Verisuonen seinämässä tavallinen tapahtumaketju etenee näin. Ärsyke vaikuttaa endoteelisoluun. Endoteelin typpioksidisyntaasi, jota kutsutaan nimellä eNOS tai NOS3, tuottaa pienen typpioksidipulssin. Kaasu diffundoituu viereiseen sileälihassoluun, sitoutuu liukoisen guanylaattisyklaasin pelkistynyttä rautaa sisältävään hemiin ja nopeuttaa GTP:n muuntumista sykliseksi GMP:ksi. Syklinen GMP aktivoi proteiinikinaasi G:n, kalsiumin säätely muuttuu ja lihas rentoutuu.
On myös toinen ketju, joka kannattaa pitää erillään. Infektion tai sytokiinialtistuksen aikana solut transkriptoivat eri entsyymiä, indusoituvaa typpioksidisyntaasia eli iNOS:ää, jota kutsutaan myös nimellä NOS2. Se tuottaa suurempia ja pitkäkestoisempia typpioksidivirtoja kuin eNOS. Kolmas isoformi, neuronaalinen NOS eli nNOS, kuuluu taas eri yhteyteen. Kun tutkimusartikkelissa puhutaan typpioksidisyntaasista täsmentämättä isoformia, pysähdy tarkistamaan, mitä niistä mitattiin. Katsaus siihen, miten metyleenisininen siirtää elektroneja, esittää saman huomion redox-kohteista yleisesti: välittäjä ei tee mitään yksinään, ja sen kummassakin päässä oleva kumppani ratkaisee lopputuloksen.
Mitattu syklinen GMP on myös useiden prosessien yhteistulosta kuvaava mittari, ei suora entsyymimääritys. Sen taso kuvastaa syklaasin tuottamaa määrää vähennettynä fosfodiesteraasien aiheuttamalla hajotuksella; verisuonten sileässä lihaksessa etenkin PDE5 on tärkeä. Syklisen GMP:n väheneminen tarkoittaa siis, että tunnistimelle saapui vähemmän signaalia. Se ei yksin kerro, mikä lenkki petti.
Lenkki 1: iNOS-entsyymiä tuotetaan vähemmän
Hiiren makrofageissa, joita stimuloitiin bakteerien lipopolysakkaridilla, interferoni gammalla tai molemmilla, metyleenisininen esti odotetun iNOS-proteiinin lisääntymisen ja vähensi voimakkaasti iNOS:n lähetti-RNA:ta makrofagien transkriptiokokeissa. Olennainen havainto on se, mikä ei muuttunut. Estäjäproteiini I kappa B alfan hajoaminen, NF kappa B:n ja STAT1:n fosforylaatio sekä näiden tekijöiden siirtyminen tumaan säilyivät pääosin ennallaan. Sen sijaan niiden sitoutuminen DNA:han väheni. Tämä vahvistettiin kromatiinin immunopresipitaatiolla, joka osoitti niiden vähentyneen sitoutumisen iNOS:n promoottorialueelle.
Kyseessä on geenin säätelyyn kohdistuva vaikutus, joka edeltää entsyymin määrän muutosta, ei olemassa olevan entsyymin välitön esto. Se kuuluu tulehdussignalointiin, jossa transkriptiotekijöiden on sitouduttava promoottoriin ennen proteiinin muodostumista. Se ei suoraan kerro mitään perustilassa olevan verisuonen konstitutiivisesta eNOS:stä, ja vaikutus on kuvattava tämän rajauksen mukaisesti.
Lenkki 2: olemassa oleva NOS-entsyymi toimii hitaammin
Rotilla tehdyssä tutkimuksessa tarkasteltiin eri tasoa. Tajuissaan oleville urosrotille annettiin lipopolysakkaridia laskimoon ja kolme tuntia myöhemmin joko keittosuolaliuosta tai metyleenisinistä laskimoon annoksella 3 mg per kg. Typpioksidisyntaasin aktiivisuus hypotalamuksen mediaalisessa basaaliosassa mitattiin leimatun arginiinin muuntumisena sitrulliiniksi hypotalamuksen NOS-aktiivisuutta käsitelleessä tutkimuksessa. Pelkkä stressi yhdessä keittosuolaliuoksen kanssa indusoi jonkin verran kalsiumista riippumatonta aktiivisuutta, ja lipopolysakkaridi nosti sen noin kymmenkertaiseksi kontrollitasoon verrattuna. Metyleenisininen poisti molemmat indusoidut komponentit. Kalsiumista riippuvainen konstitutiivinen aktiivisuus ei muuttunut kyseisessä kudoksessa kyseisellä annoksella ja kyseisessä mittausajankohdassa.
Lue tulos täsmälleen sellaisena kuin se on: mitattu iNOS-tyyppinen aktiivisuus väheni näissä olosuhteissa. Kyse ei ole geenin ilmentymisen mittauksesta eikä todisteesta, että metyleenisininen olisi aina selektiivinen iNOS:lle eNOS:n tai nNOS:n sijaan. Puhdistetuilla entsyymeillä tehdyt tutkimukset korostavat tätä varovaisuutta. Puhdistetun typpioksidisyntaasin suorissa määrityksissä metyleenisininen esti sitrulliinin muodostumisen kokonaan 30 mikromolaarin pitoisuudessa. Puolittaisen eston tuottava pitoisuus oli noin 5.3 mikromolaaria ilman superoksididismutaasia ja 9.2 mikromolaaria sen kanssa, kuten puhdistetun NOS:n ja guanylaattisyklaasin vertailussa raportoitiin. Erillisessä puhdistettua nNOS:ää koskeneessa tutkimuksessa vaikutus yhdistettiin entsyymiin sitoutuneen hemin hapettumiseen. Käytännön opetus on, että suoraa NOS:n estoa todella esiintyy eristetyissä järjestelmissä, mutta hypotalamuksesta saatua tulosta ei voi venyttää yleiseksi väitteeksi, että metyleenisininen säästäisi kaikki konstitutiiviset NOS-entsyymit kaikkialla.
Lenkki 3: typpioksidia häviää ennen sen saapumista kohteeseen
Selkein osoitus siitä, että jokin muu kuin entsyymin esto voi selittää syklisen GMP:n vähenemisen, tulee viljellyistä kanin keuhkovaltimon sileälihassoluista. Koeasetelmassa ohitettiin sisäsyntyinen NOS kokonaan lisäämällä typpioksidin luovuttajia suoraan. Sen jälkeen tutkittiin, vähensikö metyleenisininen silti syklisen GMP:n vastetta verisuonten sileän lihaksen superoksiditutkimuksessa.
Kolmea luovuttajaa testattiin pitoisuuksilla 1–100 mikromolaaria: S-nitroso-L-kysteiiniä, natriumnitroprussidia ja stabiilia deaminoitua analogia nimeltä MPANO. Kaikki nostivat syklisen GMP:n määrän noin 1.5–12-kertaiseksi. Metyleenisininen esti kahden ensimmäisen vasteita 51–100 prosenttia 10 mikromolaarin pitoisuudessa ja jätti MPANO-vasteen ennalleen. Jos metyleenisininen vain estäisi syklaasin katalyyttistä kohtaa, tällaista luovuttajakohtaista selektiivisyyttä olisi vaikea selittää, sillä kaikki kolme vaikuttavat lopulta samaan ketjun myöhempään entsyymiin.
Kolme kontrollikoetta paikansi mekanismin superoksidiin. Ensinnäkin solunulkoisen superoksidin tuottaminen ksantiinilla ja ksantiinioksidaasilla toisti saman kuvion: CYSNO:n ja nitroprussidin vasteet estyivät, MPANO:n vaste säilyi. Toiseksi metyleenisininen aiheutti sileälihassoluissa annoksesta ja ajasta riippuvaa superoksidin tuotantoa, jota mitattiin sytokromi c:n pelkistymisen avulla. Kolmanneksi superoksididismutaasi esti estovaikutuksen kokonaan, mutta katalaasi ei. Tämä viittaa siihen, että kyseisessä koejärjestelmässä vaikutuksen välitön aiheuttaja oli superoksidi eikä vetyperoksidi.
Kokeen yhteisviljelyversio kannattaa kuvata, koska se paikantaa vaikutuksen. Peitinlaseilla olevia endoteelisoluja viljeltiin lyhyesti yhdessä sileälihassolujen kanssa, jolloin perustilassa vapautuva endoteelitekijä nosti sileän lihaksen syklisen GMP:n määrän kolmesta kahdeksaan kertaiseksi. Kumman tahansa soluosaston esikäsittely metyleenisinisellä heikensi tätä signaalia, ja superoksididismutaasi kumosi osittain endoteelin esikäsittelyn vaikutuksen. Toisin sanoen metyleenisinisen ei tarvitse vaikuttaa lainkaan signaalin tunnistavana soluna toimivan sileälihassolun sisällä. Se voi heikentää signaalia poistamalla viestimolekyylin sen kulkumatkan aikana. Metyleenisinistä koskevan tutkimuksen lukemiseen tarkoitettu opas käsittelee tätä yleisenä sääntönä: nimeä osasto, jossa interventio tehtiin, ennen molekyylikohteen nimeämistä.
Tämän kutsuminen NOS:n estoksi olisi väärin. Luovuttajien toiminta ei edellyttänyt syntaasivaihetta, mutta signaali heikkeni silti.
Lenkki 4: tunnistin itse reagoi heikommin
Suoria vaikutuksia liukoiseen guanylaattisyklaasiin esiintyy, mutta pitoisuuksilla on merkitystä. Edellä mainitussa puhdistettujen entsyymien vertailussa typpioksidin stimuloiman syklaasin puolittaiseen estoon tarvittiin noin 60 mikromolaaria metyleenisinistä, kun NOS:n puolittaiseen estoon riitti noin 5–9 mikromolaaria. Jopa 1 millimolaarin pitoisuudessa suurin esto jäi vain osittaiseksi. Pitoisuuksien ero on siis noin kuudesta yhteentoista kertainen. Pienillä mikromolaarisilla pitoisuuksilla tehtyä solukoetta, jossa syklinen GMP vähenee, ei siksi voi tulkita selektiiviseksi syklaasin estoksi pelkän syklisen GMP:n lukuarvon perusteella.
Myöhempi redox-tutkimus toi esiin toisen varauksen: metyleenisininen inaktivoi typpioksidin aktivoimaa syklaasia mekanismilla, joka erosi hemin raudan yksinkertaisesta hapettumisesta ilman vaikutuksesta. Tunnistimen toiminta voi siis heikentyä, mutta kemiallinen mekanismi ei ole selvillä. Pitoisuusero tarkoittaa myös, että pienissä mikromolaarisissa altistuksissa superoksidi- ja NOS-vaikutukset on syytä sulkea pois ensin. Myös fosfodiesteraasien kontrollointi kuuluu tähän. Ellei hajotusta mitattu tai estetty, syklisen GMP:n vähentynyt kertyminen voi johtua vähäisemmästä synteesistä, nopeammasta hajotuksesta tai molemmista.
Miksi tätä ei voi pelkistää yhdeksi verenpainetta koskevaksi väitteeksi
Jokainen lenkki osoitettiin eri järjestelmässä. Makrofagien transkriptio ei ole sama asia kuin hypotalamuksen entsyymiaktiivisuus. Hypotalamuksen aktiivisuus lipopolysakkaridialtistuksen jälkeen ei ole sama asia kuin endoteelin ylläpitämä verisuonitonus perustilassa. Yhteisviljelyssä perustilassa vapautuva endoteelitekijä ei ole sama asia kuin agonistin stimuloima verisuonten laajeneminen. Viljellyt keuhkovaltimon solut 10 mikromolaarin metyleenisinipitoisuudessa eivät ole ihmisen verenkierto. Niiden tiivistäminen väitteeksi, kuten metyleenisininen nostaa verenpainetta estämällä typpioksidin toimintaa, hävittää juuri ne erot, joiden säilyttämistä varten kontrollit suunniteltiin.
Kolme tarkistusta pitävät tulkinnan täsmällisenä. Ensinnäkin nimeä isoformi: eNOS perustilan verisuonitonuksen yhteydessä, iNOS indusoidun tulehdukseen liittyvän typpioksidivirran yhteydessä ja nNOS neuronaalisissa sekä joissakin puhdistettuja entsyymejä koskevissa yhteyksissä. Toiseksi nimeä typpioksidisignaalin lähde: sisäsyntyinen synteesi, endoteelin perustason vapautuminen tai tietty luovuttaja, kuten CYSNO, nitroprussidi tai MPANO. Tämä on tärkeää, koska stabiilin luovuttajan vaste kesti metyleenisinisen vaikutuksen mutta labiilien luovuttajien vasteet eivät. Kolmanneksi nimeä pitoisuus ja estovaikutuksen kumoava kontrolli: estovaikutuksen kumoutuminen superoksididismutaasilla viittaa superoksidiin, katalaasin tehottomuus puhuu vetyperoksidia vastaan kyseisessä koejärjestelmässä, vaikutuksen jäljittely ksantiinioksidaasilla osoittaa mekanismin riittävyyden, ja puhdistettujen entsyymien määritykset erottavat suorat katalyysivaikutukset kulkumatkan aikaisista hävikeistä.
Tiivis yhteenveto on tämä. Metyleenisinistä on parempi tarkastella typpioksidista sykliseen GMP:hen etenevää signalointia useassa kohdassa häiritsevänä aineena kuin selektiivisenä syklaasin estäjänä. Koejärjestelmästä ja pitoisuudesta riippuen se voi vähentää iNOS:n transkriptiotekijöiden sitoutumista, estää suoraan NOS-entsyymejä, vähentää typpioksidin saatavuutta superoksidin muodostumisen kautta ja heikentää typpioksidin aktivoiman syklaasin toimintaa. Syklisen GMP:n signaloinnin rooli verisuonitutkimuksissa ja solumäärityksissä käytettyjen typpioksidin luovuttajien vertailu käsittelevät kumpikin yhtä näistä haaroista tarkemmin. Menetelmät redox-vaikutusten erottamiseksi entsyymivaikutuksista puolestaan selittää, miksi superoksididismutaasi, katalaasi ja stabiilin luovuttajan kontrolli esiintyvät niin usein yhdessä tässä tutkimuskirjallisuudessa.
Matala syklisen GMP:n arvo metyleenisinisen jälkeen osoittaa, että ketju on katkennut. Vain kontrollit kertovat, mikä lenkki katkesi.