
Artikkeli
Metyleenisininen ja välittäjäaineet: serotoniini, dopamiini, GABA ja asetyylikoliini
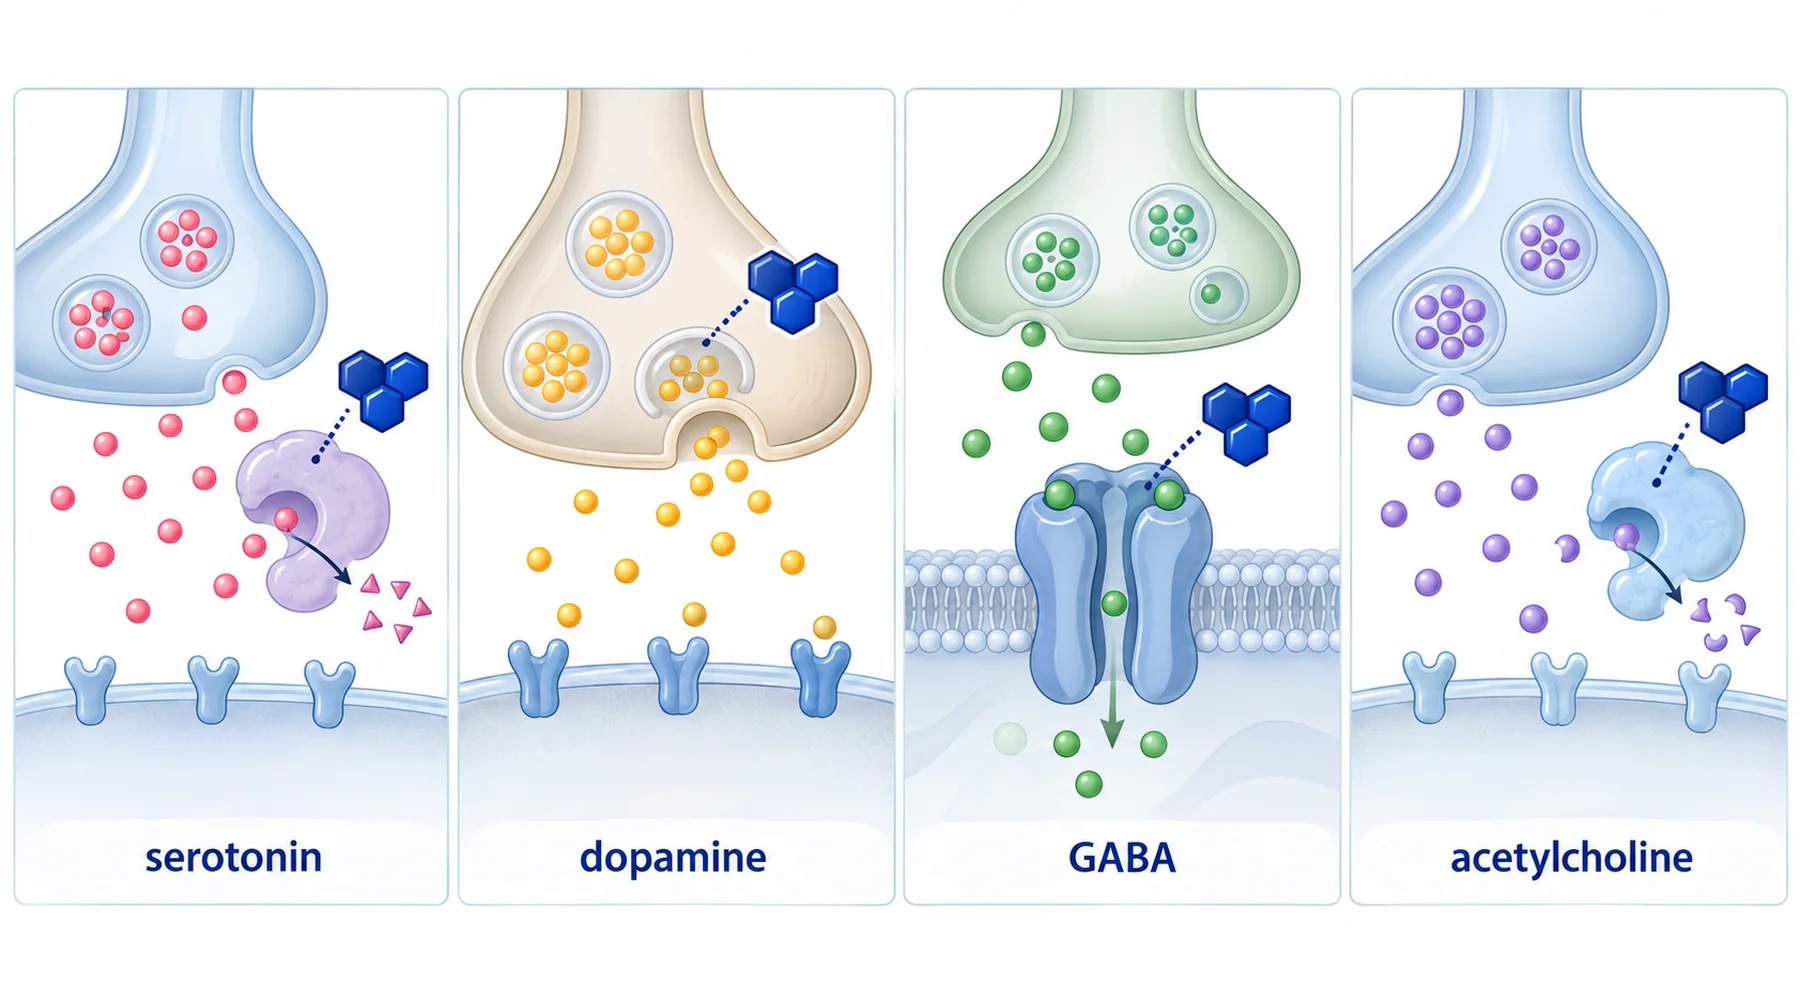
Metyleenisinisestä sanotaan usein, että se lisää serotoniinia ja dopamiinia, rauhoittaa GABA:a ja terävöittää asetyylikoliinia — kaikki samalla kertaa. Tällainen lause käsittelee neljää erillistä laboratoriolöydöstä yhtenä vaikutuksena ihmisessä. Sen taustalla olevissa tutkimuksissa mitattiin eri kohteita erilaisissa tutkimusvalmisteissa ja pitoisuuksissa, jotka eroavat toisistaan noin tuhatkertaisesti. Kun kohteet erotetaan toisistaan, kokonaiskuva on sekä kiinnostavampi että varovaisempi kuin tuo yksittäinen lause antaa ymmärtää.
Jäsentävä ajatus on yksinkertainen. Molekyyli, joka sitoutuu entsyymiin koeputkessa, on tehnyt yhden asian: sitoutunut entsyymiin koeputkessa. Se, muuttaako tämä välittäjäaineen pitoisuutta elävissä aivoissa, riippuu kudokseen päätyvästä pitoisuudesta, molekyylin kemiallisesta muodosta sen saapuessa sekä kaikesta muusta, mitä molekyyli tekee samassa pitoisuudessa. Jokaisessa alla olevassa osiossa nämä kolme kysymystä pidetään yhteydessä siihen löydökseen, johon ne kuuluvat.
Serotoniini: kaksi kohdetta, kaksi pitoisuutta
Näistä neljästä järjestelmästä serotoniinia koskeva näyttö on vahvinta. Se perustuu kahteen erilliseen molekyylikohteeseen, joita ei pidä yhdistää.
Ensimmäinen kohde on tyypin A monoamiinioksidaasi, mitokondrioiden entsyymi, joka hajottaa serotoniinia. Metyleenisininen estää puhdistettua ihmisen MAO-A:ta tiukasti sitoutuvana estäjänä, jonka Ki on noin 27 nanomoolia litrassa. MAO-B:hen vaikuttamiseen tarvitaan sen sijaan paljon suurempia pitoisuuksia, kuten osoitettiin kineettisessä tutkimuksessa, joka yhdisti väriaineen serotoniinitoksisuuteen. Rinnakkaisessa tutkimuslinjassa havaittiin sama selektiivisyys rotan käpyrauhaskudoksessa: MAO-A:n esto lisäsi serotoniinista peräisin olevia indoleja, vähensi serotoniinin aineenvaihduntatuotetta 5-HIAA:ta ja muutti sammakoiden serotoniiniin liittyvää oikaisurefleksiä. Tulokset raportoitiin redox-väriaineita ja käpyrauhasen indoleja käsitelleessä tutkimuksessa. Kaksi erilaista tutkimusvalmistetta, sama suunta: vähemmän hajotusta ja enemmän serotoniinia jäljellä siellä, missä entsyymi olisi sen poistanut.
Toinen kohde on itse serotoniinin kuljettajaproteiini. Ihmisen kuljettajaproteiinia ilmentävissä soluissa metyleenisininen vähensi sekä fluoresoivan substraatin että merkityn serotoniinin sisäänottoa. IC50 oli noin 1.4 mikromoolia litrassa. Lisäksi se vaimensi serotoniinin aiheuttamia virtoja patch-clamp-mittauksissa, kuten kuvattiin metyleenisinisen SERT-vaikutuksia suoraan luonnehtineessa tutkimuksessa. Tutkijat tarkistivat ilmeiset vaihtoehtoiset selitykset ja havaitsivat, että vaikutus oli riippumaton cGMP-signaloinnista, kalsiumin muutoksista ja kuljettajaproteiinin ilmentymisestä solun pinnalla.
Huomaa näiden kahden luvun ero. MAO-A:n esto tapahtuu nanomolaarisissa pitoisuuksissa. Kuljettajaproteiinin estoon tarvitaan noin viisikymmentä kertaa enemmän väriainetta. Pieni altistus, joka vaikuttaa entsyymiin täysimääräisesti, voi vaikuttaa kuljettajaproteiiniin tuskin lainkaan. Näiden yhdistäminen yhdeksi serotoniinia koskevaksi väitteeksi sulauttaa kaksi eri annosaluetta yhdeksi.
Se, onko kummallakaan kohteella merkitystä muita serotonergisiä lääkkeitä käyttävälle ihmiselle, on lääkitystä koskeva kysymys ja kuuluu lääkkeiden yhteisvaikutuksia käsittelevään oppaaseen. Tämä artikkeli kartoittaa kohteet; kyseinen sivu sisältää kliiniset ohjeet.
Dopamiini: heikoin suora näyttö
Dopamiinin kohdalla rehellisyys vaatii eniten pidättyvyyttä. Ei ole vakiintunutta tutkimusnäyttöä siitä, että metyleenisininen estäisi dopamiinin kuljettajaproteiinia tai sitoutuisi suoraan dopamiinireseptoreihin. Usein lainattu kuljettajaproteiinin IC50-arvo 1.4 mikromoolia litrassa koskee serotoniinin kuljettajaproteiinia, ei DAT:ia, eikä sitä pidä koskaan nimetä uudelleen.
Sen sijaan olemassa oleva näyttö on epäsuoraa. Koska MAO-entsyymit hajottavat myös dopamiinia, MAO:n esto säilyttää dopamiinia serotoniinin ja noradrenaliinin ohella. Mitokondriovalmisteissa metyleenisininen esti hermomyrkky MPTP:n MAO-B-välitteistä muuttumista dopaminergiseksi myrkyksi voimakkuudella, joka oli verrattavissa Parkinsonin taudin lääkkeeseen deprenyyliin. Tätä kuvataan MPTP:n bioaktivaatiota käsitelleessä tutkimuksessa ja siihen liittyvässä MAO-B-tutkimuksessa. Eläintutkimukset täydentävät kuvaa yksittäisillä havainnoilla: dopamiinin perustason vapautuminen rotan aivojuoviipaleista lisääntyi noin kolminkertaiseksi pitoisuudessa 10 mikromoolia litrassa. Tätä tutkittiin typpioksidisignaloinnin yhteydessä, ei kuljettajaproteiinin estona. Systeemisen annostelun jälkeen eri aivoalueiden tulokset vaihtelivat, ja joissakin tutkimuksissa serotoniini ja noradrenaliini lisääntyivät, kun taas dopamiini muuttui tuskin lainkaan.
Dopamiinia koskeva näyttö on siis todellista mutta epäsuoraa. Se kulkee useita monoamiineja samanaikaisesti käsittelevän entsyymin kautta, ei dopamiinille ominaisen vaikutuskohteen kautta. Jokainen väite siitä, että metyleenisininen lisää dopamiinia ihmisessä, ohittaa vaiheen, jossa tämä olisi todella osoitettu.
GABA: jarrun esto sitoutumistaskussa
GABA:a koskeva löydös on täsmällinen ja ristiriidassa väriaineen maineen kanssa. Ihmisen GABA-A-reseptoreita ilmentävissä soluissa metyleenisininen esti GABA:n aiheuttamia virtoja noin 3 mikromoolin litrapitoisuudesta alkaen. Tavallisen alpha1-beta2-gamma2-kokoonpanon IC50 oli noin 31 mikromoolia litrassa vaikutuskohdan kartoittaneessa elektrofysiologisessa tutkimuksessa.
Vaikutuskohdan kartoitus on tutkimuksen arvokas osa. Pikrotoksiinin sitoutumiskohdan mutaatiot eivät muuttaneet estoa, ja bentsodiatsepiinin sekä sinkin sitoutumiskohdat suljettiin pois alayksikkövertailuilla. Sen sijaan mutaatiot kahdessa aminohappotähteessä, joiden tiedetään muodostavan itse GABA:n sitoutumistaskun, vähensivät estoa voimakkaasti. Tämä osoittaa vaikutuksen olevan kilpailevaa antagonismia agonistin sitoutumiskohdassa, ei allosteerista muuntelua muualla. Vaikutus säilyi sekä synaptisissa että ekstrasynaptisissa alayksikköyhdistelmissä ja hävisi nopeasti poispesun jälkeen.
Tässä on todellinen ristiriita, joka kannattaa sanoa suoraan. Muistin tukemiseen tutkittu molekyyli vaimentaa myös nopeaa estävää hermovälitystä viljelymaljassa. Se, tapahtuuko tätä vaimentumista elävissä aivoissa, riippuu paikallisesta pitoisuudesta. Pitoisuus 31 mikromoolia litrassa on suuri verrattuna useimpiin systeemisiin altistuksiin, joita käsitellään viimeisessä osiossa. Itse ristiriita on löydös; sen ratkaiseminen vaatisi kokeita, joita kukaan ei ole tehnyt.
Asetyylikoliini: kaksi vastakkaista vaikutuskohdetta
Asetyylikoliinista on kaksi löydöstä, jotka vievät vastakkaisiin suuntiin. Juuri siksi ne on raportoitava erikseen.
Yhtäältä metyleenisininen estää asetyylikoliinia poistavia entsyymejä. Lehmän punasolujen asetyylikoliiniesteraasia estettiin kilpailevasti noin 0.57 mikromoolin litrapitoisuudessa, naudan entsyymiä noin 0.42 mikromoolin litrapitoisuudessa ja ihmisen plasman esteraasiaktiivisuutta noin 1.1 mikromoolin litrapitoisuudessa. Butyryylikoliiniesteraasia estettiin noin 0.4–5.3 mikromoolin litrapitoisuuksissa lajista ja tutkimusvalmisteesta riippuen. Tulokset on koottu katsaukseen metyleenisinisen vaikutuksista hermostossa. Poistumisen hidastuminen jättää synapsiin enemmän välittäjäainetta. Sama periaate on useiden hyväksyttyjen Alzheimerin taudin lääkkeiden taustalla.
Kemialliseen vaikutukseen liittyy kuitenkin ehto. Hapettunut sininen muoto estää entsyymiä, pelkistynyt väritön muoto ei. Pitkissä inkubaatioissa, joiden aikana väriaine ehtii pelkistyä, havaitaan heikompaa estoa jo pelkästään tästä syystä. Jokaiseen koliiniesteraasimäärityksen lukuarvoon liittyy näkymätön muuttuja: kuinka suuri osa väriaineesta oli mitattaessa yhä sinistä.
Toisaalta metyleenisininen estää alfa7-nikotiinireseptoria, joka on yksi asetyylikoliinin vaikutuksia vastaanottavista reseptoreista. Sammakon munasoluissa ilmennettyjä ihmisen alfa7-reseptoreita estettiin ei-kilpailevalla, jännitteestä riippumattomalla antagonismilla, jonka IC50 oli noin 3.4 mikromoolia litrassa ja joka ei muuttanut agonistin vaikutusvoimakkuutta. Pitoisuus 3 mikromoolia litrassa poisti koliinin käynnistämät synaptiset vasteet rotan hippokampusviipaleissa, kuten alfa7-reseptoritutkimuksessa raportoitiin. Samankaltaisissa, muutaman mikromoolin litrapitoisuuksissa väriaine siis sekä säilyttää välittäjäainetta että vaimentaa yhtä sen reseptoreista. Kokonaisvaikutusta kolinergiseen signalointiin ei voi päätellä kummastakaan löydöksestä yksin. Tämä epäselvyys liittyy laajempaan Alzheimer-kirjallisuuteen ja sitä sivuavaan kognitiota ja sairauksia koskevaan tutkimuskeskusteluun, mutta sitä ei ratkaista tässä.
Vertailu yhdessä paikassa
| Kohde | Tutkimusvalmiste | Pitoisuus | Mitattu vaikutus |
|---|---|---|---|
| MAO-A | Puhdistettu ihmisen entsyymi | Ki ~27 nM | Tiukkaan sitoutumiseen perustuva esto; serotoniinin hajotus estyi |
| SERT | Ihmisen kuljettajaproteiini viljellyissä soluissa | IC50 ~1.4 uM | Serotoniinin sisäänotto ja sen aiheuttamat virrat vähenivät |
| MAO-B / MPTP:n aktivaatio | Ihmisen mitokondriot | Pieni mikromolaarinen pitoisuus | Myrkyn bioaktivaatio estyi; dopaminerginen hermovälitys suojautui epäsuorasti |
| GABA-A-reseptori | Ihmisen alayksiköt HEK293-soluissa | IC50 ~31 uM, havaittavissa pitoisuudesta ~3 uM alkaen | Kilpaileva esto GABA:n sitoutumistaskussa |
| Asetyylikoliiniesteraasi | Naudan entsyymi / ihmisen plasman entsyymi | IC50 ~0.4–1.1 uM | Poistuminen hidastui; vain hapettunut muoto |
| Alfa7-nikotiinireseptori | Ihmisen alayksikkö munasoluissa; rotan kudosviipaleet | IC50 ~3.4 uM | Ei-kilpaileva antagonismi; viipaleiden vasteet poistuivat pitoisuudessa 3 uM |
Herkimmän ja vähiten herkän kohteen välillä on kolmen kertaluokan ero. Tuo vaihteluväli tiivistää artikkelin yhteen taulukkoon.
Saavutetaanko nämä pitoisuudet aivoissa?
Koeputkessa saatu luku ei merkitse mitään ilman sen rinnalla olevaa altistuslukua. Noin 1.4 mg per kg suuruisen laskimoboluksen jälkeen ihmisen plasmassa on raportoitu keskimäärin noin 5 mikromoolin litrapitoisuuksia. Samassa kirjallisuudessa 100 mg suun kautta annettuna tuotti kokovereen noin 0.08 mikromoolin litrapitoisuuden. Rotilla tehdyissä jakautumistutkimuksissa aivojen pitoisuudet ovat olleet noin kymmenen–kaksikymmentä kertaa verenkierron pitoisuuksia suurempia. Kyse on kuitenkin väriaineen kokonaismäärästä homogenoidussa kudoksessa, ei vapaasta hapettuneesta väriaineesta synapsissa. Lisäksi noin 94 prosentin sitoutuminen plasman proteiineihin ja jakautuminen verisoluihin pienentävät vapaata osuutta.
Taulukkoon verrattuna kuva on asteittainen, ei joko–tai. MAO-A:n estoon tarvittava pitoisuus on paljon tavallisten laskimonsisäisten altistusten alapuolella, joten esto on farmakologisesti mahdollinen aina, kun väriainetta annetaan tällä tavalla. Koliiniesteraasiin ja alfa7-reseptoriin kohdistuvat vaikutukset sijoittuvat pienten mikromolaaristen pitoisuuksien alueelle, jonka laskimonsisäiset huippupitoisuudet voivat saavuttaa mutta johon tavalliset suun kautta otettavat annokset eivät välttämättä yllä. GABA-A:n IC50, 31 mikromoolia litrassa, ylittää useimmat uskottavat systeemiset altistukset. Siksi juuri tämän eston toteutumista kokonaisessa ihmisessä on vaikeinta perustella. Vertailun jokainen rivi vaatii saman varauksen: merkityksellinen pitoisuus on vapaan, hapettuneen, solunulkoisen väriaineen pitoisuus kohteessa, eikä mikään verinäyte mittaa sitä suoraan.
Mitä tästä ei pidä päätellä
Yksikään taulukon rivi ei osoita, että metyleenisininen ennustettavasti lisäisi tai vähentäisi jotakin välittäjäainetta ihmisessä. Entsyymin esto puhdistetussa valmisteessa, kuljettajaproteiinin esto solulinjassa ja reseptorin antagonismi kudosviipaleessa ovat kukin yhden kontrolloidun askeleen päässä synapsin todellisuudesta. Kolinerginen osio puolestaan osoittaa, kuinka kaksi paikkansapitävää löydöstä johtavat yhdessä epävarmaan lopputulokseen. Tätä sivua on vastuullista käyttää karttana vaikutuskohteista, joihin molekyylin on osoitettu tarttuvan, sekä näiden vaikutusten voimakkuuksista. Näin mekanismeista käytävä keskustelu pysyy kiinni siinä, mitä todella mitattiin. Näiden vaikutuskohteiden ja reseptilääkkeiden yhteisvaikutusten käsittely kuuluu yhteisvaikutusoppaaseen. Lisää taustaa tarjoavat farmakologian perusteet ja tähän artikkeliin liittyvä mekanismeja selittävä teksti.