
Artikkel
Metüleensinine antioksüdandi ja prooksüdandina: mis muudab tulemust?
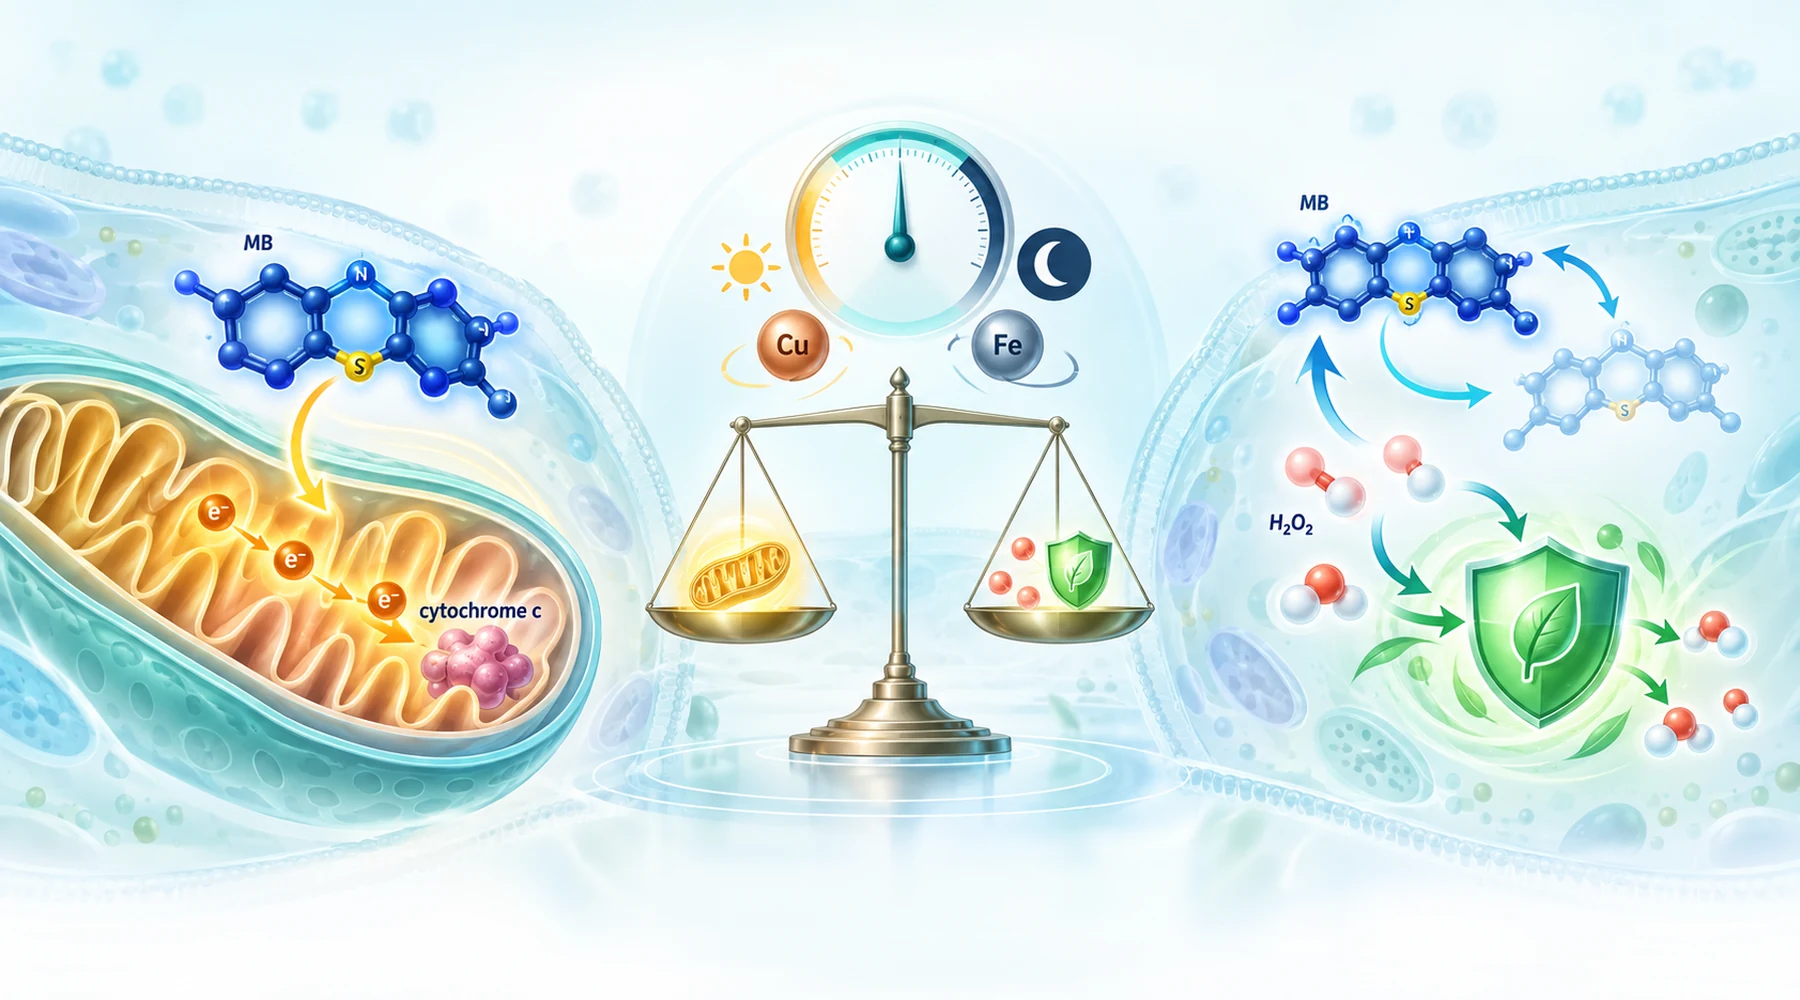
Oletame, et kaks laborit uurivad sama sinist värvainet ja teatavad vastupidistest tulemustest. Esimeses hingavad eraldatud ajumitokondrid paremini ja toodavad rohkem ATP-d. Teises vabastab sama preparaat palju rohkem vesinikperoksiidi. Mõlemad tulemused on õiged. Need kirjeldavad sama tsüklit kahest eri vaatenurgast ning segadus algab siis, kui lugejad peavad üht vaatenurka kogu looks.
Viga on küsimuses, milline silt molekulile sobib. Metüleensinine vahendab elektrone, nagu näitab laiemas kontekstis selle rakubioloogiliste sihtmärkide kaart. Oksüdeeritud värvaine võtab vastu elektrone ja muutub värvituks leukoMB-ks. LeukoMB annab need elektronid edasi ja muutub taas siniseks. Vaadeldav tulemus sõltub sellest, kes elektrone loovutab, kes need vastu võtab ja kas süsteem suudab kõrvaldada vahepeal tekkinud vesinikperoksiidi. Asjakohane küsimus ei ole kunagi see, kas värvaine on antioksüdant. Küsimus on selles, mida tingimused sellel elektronivahendajal teha võimaldavad.
Tsükkel, mis loob mõlemad palged
Pimedas on põhitsükkel lühike. NADH, NADPH või hingamisahela kandjad redutseerivad värvainet. Redutseeritud värvainel on seejärel mitu konkureerivat edasist rada. See võib anda elektrone tsütokroom c-le ja toetada elektronivoogu kahjustatud kompleksist mööda, mistõttu hingamine ja membraanipotentsiaal kompleksi I või III blokeerimisel osaliselt taastuvad. Või võib see anda elektrone otse hapnikule, taastades sinise vormi ja tekitades vesinikperoksiidi. Kuna värvaine taastub, saab väike kogus seda tsüklit palju kordi korrata, tarbides pidevalt redutseerivaid ekvivalente ja tootes pidevalt peroksiidi.
Kaks lisaharu muudavad keemiat täielikult. Vaba vask või raud muundab selle difundeeruva peroksiidi Fentoni-tüüpi reaktsioonides palju hävitavamateks kohalikeks oksüdantideks. Punane valgus avab eraldi fotokeemilise haru, milles ergastatud värvaine annab hapnikule energiat ja tekitab singlett-hapnikku — osakest, mida käsitletakse üksikasjalikult I ja II tüüpi fotokeemia selgituses. Pimedas toimuv redokstsükkel, metallide võimendatud kahjustus ja fotodünaamiline kahjustus on kolm erinevat mehhanismi, millel on lihtsalt sama lähtemolekul.
Tingimuste ja tulemuste maatriks
Allolev tabel tasub alles hoida. Iga rida esitab ühe muutuja, selle mõju suuna ja mõju aluseks oleva katse. Positiivne tähendab kaitsvat mõju või paranenud näitu. Ebasoodne tähendab rohkem oksüdanti, suuremat varude ammendumist või rohkem kahjustust.
| Tingimus | Tulemuse suund | Mida katse näitas |
|---|---|---|
| Madal kontsentratsioon, 0.1 kuni 1 uM, eraldatud mitokondrid | Positiivne bioenergeetiline mõju koos suurema peroksiidihulgaga | 0.1 uM parandas hapnikutarbimist tervete ja diabeetiliste rottide südamemitokondrites; 100 nM kuni 1 uM taastas osaliselt ATP taseme, membraanipotentsiaali ja kaltsiumi omastamise blokeeritud ajumitokondrites, samal ajal kui peroksiidi vabanemine suurenes kõigis tingimustes |
| Suurem kontsentratsioon, üle 5 uM, glükoosita rakud | Ebasoodne oksüdandisignaal | Glükoosi puudumisel oksüdeerisid endoteelirakud üle 5 uM juures üldist ROS-sondi ja kaotasid redutseeritud glutatiooni; glükoosi lisamine hoidis mõlemad ära |
| Kompleksi I substraadid (glutamaat koos malaadiga) | Rohkem peroksiidi | Nii aju- kui ka südamemitokondrite uuringutes täheldati NADH-ga seotud substraatide korral suuremat peroksiidi vabanemist |
| Suktsinaat koos rotenooniga, südamemitokondrid, 0.1 uM | Selles protokollis vähem peroksiidi | Ainus selgelt antioksüdatiivne peroksiidinäit selles katsete kogumis; pange tähele, et protokoll sisaldas rotenooni ja kasutati teist kude, seega ei selgita seda üksnes substraat |
| Punane valgus, 20 uM koos 630 nm-ga | Ebasoodne DNA kahjustus | Pimedas ei tekkinud 20 uM juures olulisi mitokondriaalse DNA kahjustusi; sama kontsentratsioon koos punase valgusega kahjustas kõiki uuritud fragmente |
| Väga suur kontsentratsioon pimedas, 100 uM | Ebasoodne selektiivne DNA kahjustus | Selektiivsed mitokondriaalse DNA kahjustused puriinirikastes järjestustes, mis kujutavad endast nanomolaarsest peroksiidisignaalist kvalitatiivset muutust |
| Vask või raud koos NADH-ga, rakuvaba DNA | Ebasoodsad oksüdatiivsed kahjustused | Vask suunas kahjustuse p53 mutatsioonide kuumpunkti järjestusele; raud-EDTA põhjustas ulatuslikku kahjustust; katalaas ja metallikelaatorid blokeerisid vastavad rajad; oksüdeeritud guaniini hulk suurenes |
| Glükoos olemas, terved rakud | Kaitsev puhverdus hoolimata kiiremast tsüklist | Glükoos suurendas värvaine redutseerimist, kuid vähendas netostressi, mis on kooskõlas pentoosfosfaadiraja kaudu saadava NADPH kasutamisega antioksüdantide taastamiseks |
| Askorbaadiga rikastatud rakud | Segatulemus: askorbaati tarbiti, sondi signaali puhverdati | Värvaine oksüdeeris järk-järgult rakusisest askorbaati ka glükoosi olemasolul, pärssides samal ajal osaliselt sondi oksüdatsiooni; selle eest tasuti kaitsevarude arvelt |
| Rotenooniga eeltöödeldud loomad, värvaine manustati esimesena | Positiivne tulemus koes | Eeltöötlus värvainega vähendas rotenooni tekitatud mitokondriaalse DNA kahjustusi hiire keskajus, kuigi eraldatud mitokondrites suurendas see peroksiidi hulka |
Oluline on ridadeülene muster. Peroksiidi tootmine ja bioloogiline kaitse on eraldi teljed. Sekkumine võib anda esimesel teljel ebasoodsa ja teisel positiivse tulemuse samal ajal.
Miks sama annus annab erinevaid vastuseid
Kontsentratsioon määrab elektronide vahendamise võime, mitte lõpptulemuse. Tervete ajumitokondrite uuringus suurenes peroksiidi vabanemine mõõdetavalt alates 50 nM-st, samas kui selge mitokondriaalse DNA kahjustuse tekkeks pimedas oli vaja 100 uM. Esimese signaali ja genotoksilisuse vahel on seega ligikaudu kahetuhandekordne vahe, kuid see ei ole ohutusvaru. Tulemusnäitajad, kompartmendid ja kokkupuuteajad erinevad, nii et need arvud tähistavad erinevaid nähtusi, mitte punkte ühel kõveral. Annuse ja toime seose käsitlus asetab sellise nõrga signaali ja tugeva kahjustuse vahelise erinevuse hormeesi laiemasse konteksti.
Substraat määrab, kust elektronid sisenevad. NADH-ga seotud energiaallikad annavad värvainele rohkelt redutseerivaid ekvivalente nii kasulikuks möödaviiguks kui ka raiskavaks reaktsiooniks hapnikuga. Sageli tsiteeritud kokkuvõte, et suktsinaat muudab värvaine antioksüdandiks ja glutamaat prooksüdandiks, tõlgendab andmeid üle. Südameuuringu suktsinaadiga peroksiidikatse sisaldas nimelt ka rotenooni ning kasutas teistsugust kude ja annust kui aju-uuring, milles leiti peroksiidi suurenemine iga substraadi ja hingamisseisundi korral.
Valgus muudab mehhanismi, mitte ainult mõju suurust. Selle katsete kogumi kõige selgem vastandus on 20 uM pimedas, mis ei põhjustanud mitokondriaalse DNA fragmentides midagi tuvastatavat, ja 20 uM punase valguse käes, mis kahjustas neid kõiki. Valgustatud katse võrdlemine pimedas tehtud katsega tähendab fotokeemia võrdlemist redokstsükliga.
Metallid muundavad oksüdanti. Ilma metallideta tekitab värvaine pimedas toimuv tsükkel peroksiidi — difundeeruvat molekuli, mida rakud kasutavad ka signaalina. Kui vask või raud on kättesaadav, toetab NADH abil redutseeritud värvaine metalli redutseerimist ning redutseeritud metall aktiveerib peroksiidi DNA läheduses hüdroksüülitüüpi või vaskperoksiidseteks osakesteks. Nii tekitasid rakuvabad katsed NADH ja metalliioonidega samast lähtevärvainest nii kuumpunktidesse koondunud selektiivseid kui ka ulatuslikke DNA kahjustusi. Selle haru tähtsuse määrab metalli käitlemine vastavas kompartmendis, mitte üksnes värvaine.
Energiaallikate olemasolu määrab, kas rakk suudab selle hinna tasuda. Endoteelirakkudes, mis puutusid kokku 2 kuni 20 uM värvainega, tõi glükoosi eemaldamine esile oksüdatiivse koormuse, samas kui glükoosi lisamine kaotas selle, ehkki glükoos kiirendas ka värvaine redutseerimist. Kiirem tsükkel piisavate kaitseressurssidega on parem kui aeglasem tsükkel ammendunud kaitsevarudega. Iga väidet oksüdandi kohta, milles glükoosi või NADPH seisundit ei mainita, tuleks pidada puudulikuks.
Kude määrab süsteemi varustuse. Endoteelirakud taastavad NADPH-d glükoosi ainevahetuse kaudu ja sisaldavad tsütosoolseid antioksüdandivarusid. Eraldatud mitokondritel pole kumbagi. Puhastatud DNA-l puudub isegi parandussüsteem. Ühes preparaadis saadud tulemus ütleb teiste kohta vähe, mistõttu peab kavandatav koespetsiifilisi vastuseid käsitlev artikkel neid süsteeme eraldi käsitlema.
Otsene mõõtmine ei ole hilisem kaitsevastus
Paljud käsitlused sulatavad kokku kaks tasandit, mida katsetes hoitakse lahus. Ühel tasandil küsitakse, kui palju oksüdanti tekkis. Teisel küsitakse, kuidas rakk sellele vastas.
Amplex-tüüpi peroksiidianalüüsid on esimesele tasandile kõige lähemal, kuid isegi need näitavad netovoogu ehk tootmist miinus lagundamine miinus väljaviimine. Ajumitokondrite uuringus leiti muutusi mõlemal poolel: peroksiidi tekkis rohkem ja lisatud peroksiidikoguse kõrvaldamine oli aeglasem. Järgmistel tasanditel asuvad glutatiooni oksüdatsioon, askorbaadi tarbimine, oksüdeeritud guaniin ja polümeraasi blokeerivad DNA kahjustused. Iga samm lisab oksüdandi ja mõõdetava näidu vahele bioloogilisi protsesse.
Nrf2 reguleeritud antioksüdantsed ensüümid ja mitokondrite biogenees kuuluvad teisele tasandile. Need on kohanemisprogrammid, mille võib käivitada nõrk peroksiidiimpulss. Ajumitokondrite kaitset käsitleva uuringu autorid pakuvadki käivitajaks sellist nõrka stressi, märkides samas, et Nrf2 kaudu kulgev põhjuslik ahel toetub varasematele töödele, mitte nende endi täielikule tõestusele. Kaitse, mis saabub tundide pärast uute valkude kaudu, ei tähenda, et algne keemiline protsess oli antioksüdatiivne. See tähendab, et väike prooksüdatiivne sündmus võimaldas suuremat kaitset. Selliste väidete tõlgendamise piiranguid, sealhulgas analüüsimeetodite piire ja preparaatide erinevusi, käsitleb metüleensinise uuringute lugemise juhend.
Miks analüüsimeetodid annavad erinevaid tulemusi
Üldine sond, näiteks dihüdrofluorestseiin, näitab sondi üldist oksüdatsiooni, mitte peroksiidi kontsentratsiooni. See sõltub peroksüdaasi- ja heemikeemiast ning võib jätta märkamata peroksiidi suurenemise, mille kalibreeritud Amplex-analüüs tuvastab. Ajumitokondrite uuringus täheldati järsult suuremat peroksiidihulka ilma vastava superoksiidisignaalita, mis hoiatab mis tahes ühel värvainel põhineva antioksüdatiivse toime väite tsiteerimise eest. Optiline kattuvus on põhjendatud kontrolliküsimus, sest värvaine neelab nähtavat valgust levinud ergastus- ja emissioonivahemike lähedal. Kuid põhjalikus uuringus kalibreeriti mõõtmist teadaoleva peroksiidikoguse suhtes, vähendati ergastusvalguse kokkupuuteaega ilma signaali olulise muutuseta ning kinnitati aeglasemat peroksiidi eemaldamist eraldi elektroodiga. Mõõtmishäireid tuleb kontrollida, mitte kasutada neid automaatse põhjusena tulemuse kõrvalejätmiseks.
Kaltsiumi puudutav tulemus näitab samasugust täpsuse vajadust. Südameuuringus ei muutnud värvaine lühiajaline toime kaltsiumi kogukoormust enne läbilaskvuse üleminekut, kuid diabeedile keskendunud südamemitokondrite uuringus parandas see kaltsiumi omastamise kiirust blokeeritud ajumitokondrites. Erinevad tulemusnäitajad, erinevad süsteemid, vastuolu puudub.
Kontrollnimekiri enne järelduse usaldamist
Käsitlege iga antioksüdatiivset või prooksüdatiivset toimet puudutavat järeldust kui aruannet ühe süsteemi kohta ja esitage viis küsimust. Millise kontsentratsiooni juures ja millises kompartmendis? Millise elektronidoonori ja millise konkureeriva vastuvõtjaga? Valguses või pimedas ning millise lainepikkuse ja doosiga? Millised metallid on kättesaadavad ning millised energiaallikad ja antioksüdandivarud on tagatud? Ja millise analüüsimeetodiga, mis mõõdab oksüdandivoogu, kahjustust või kohanemisvastust? Muutke kas või üht vastust ja sama molekul võib liikuda maatriksis kaitsvast kahjustavaks, ilma et selles oleks mingit paradoksi.