
Článek
Methylenová modř a oxid dusnatý: NOS, cGMP a cévní signalizace
Otázka zní jednoduše: inhibuje methylenová modř oxid dusnatý? V laboratoři se odpověď rozpadá na čtyři samostatné otázky a každá vyžaduje jiný experimentální test. Jejich zaměňování je hlavním důvodem, proč texty o methylenové modři a oxidu dusnatém působí sebejistě, ale neurčitě.
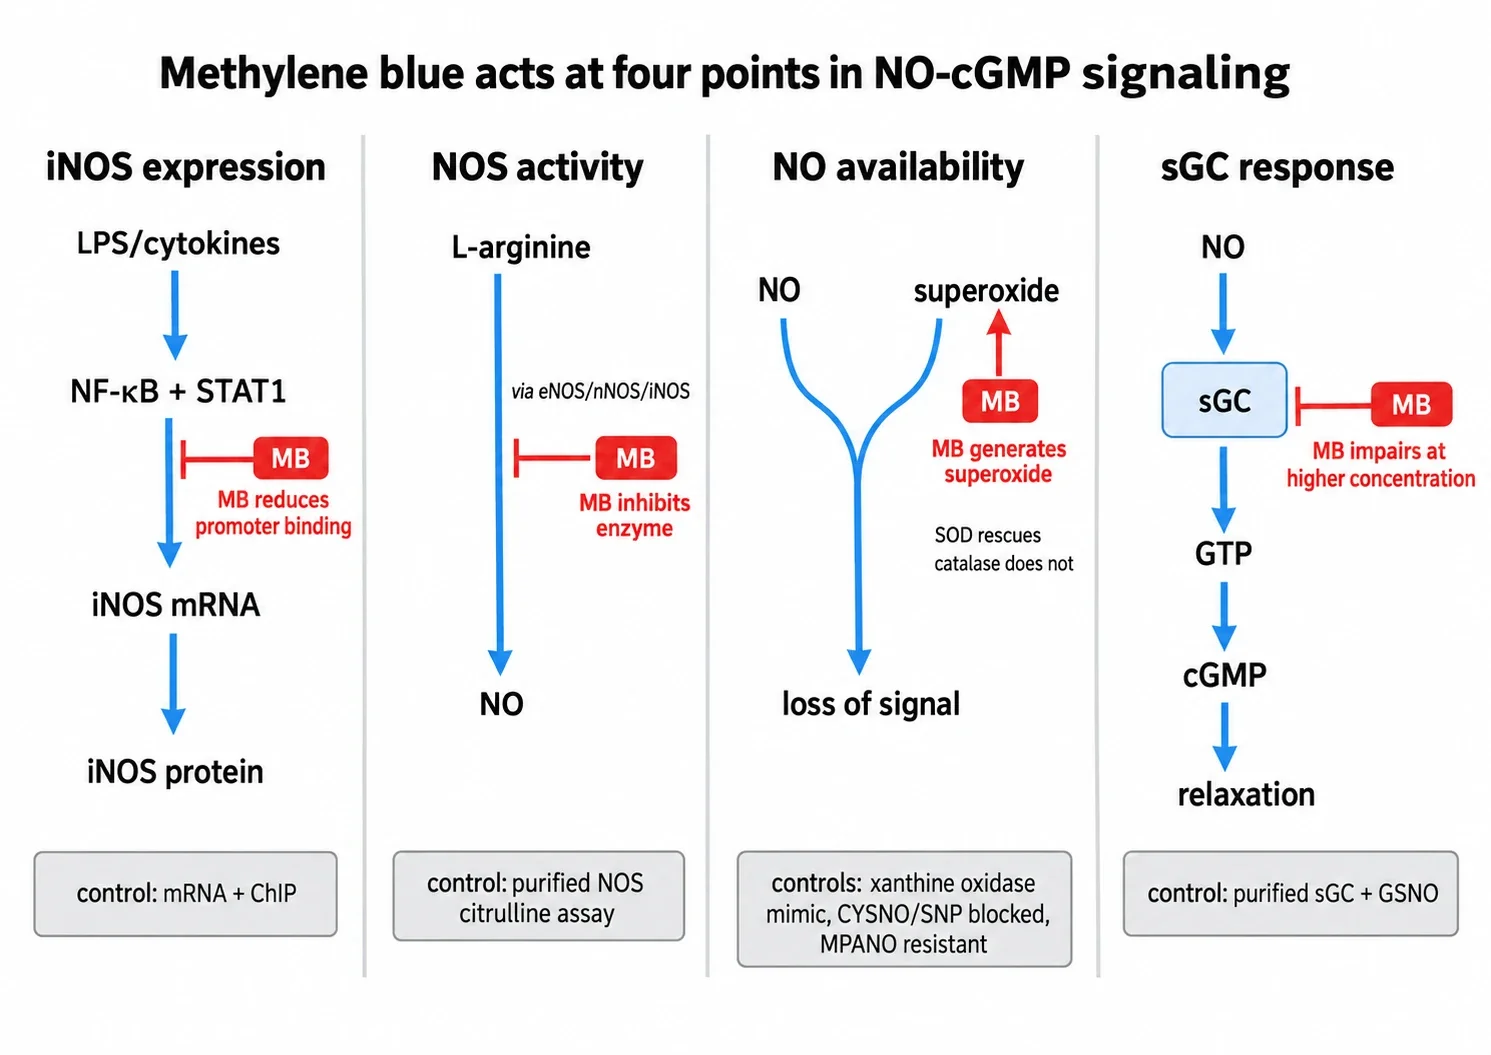
Představte si signalizaci oxidu dusnatého jako řetězec se čtyřmi články. Přepis genu vede k tvorbě syntázy oxidu dusnatého. Enzym přeměňuje arginin na oxid dusnatý. Tento plyn difunduje ke svému cíli, než zreaguje s něčím jiným. Rozpustná guanylátcykláza jej detekuje a vytváří cyklický GMP. U methylenové modři byly publikovány účinky na každý článek, ale důkazy pocházejí z různých experimentálních systémů, různých koncentrací a různých izoforem. Výsledek u jednoho článku nedokazuje působení na jiný.
Základní řetězec, jednoduše řečeno
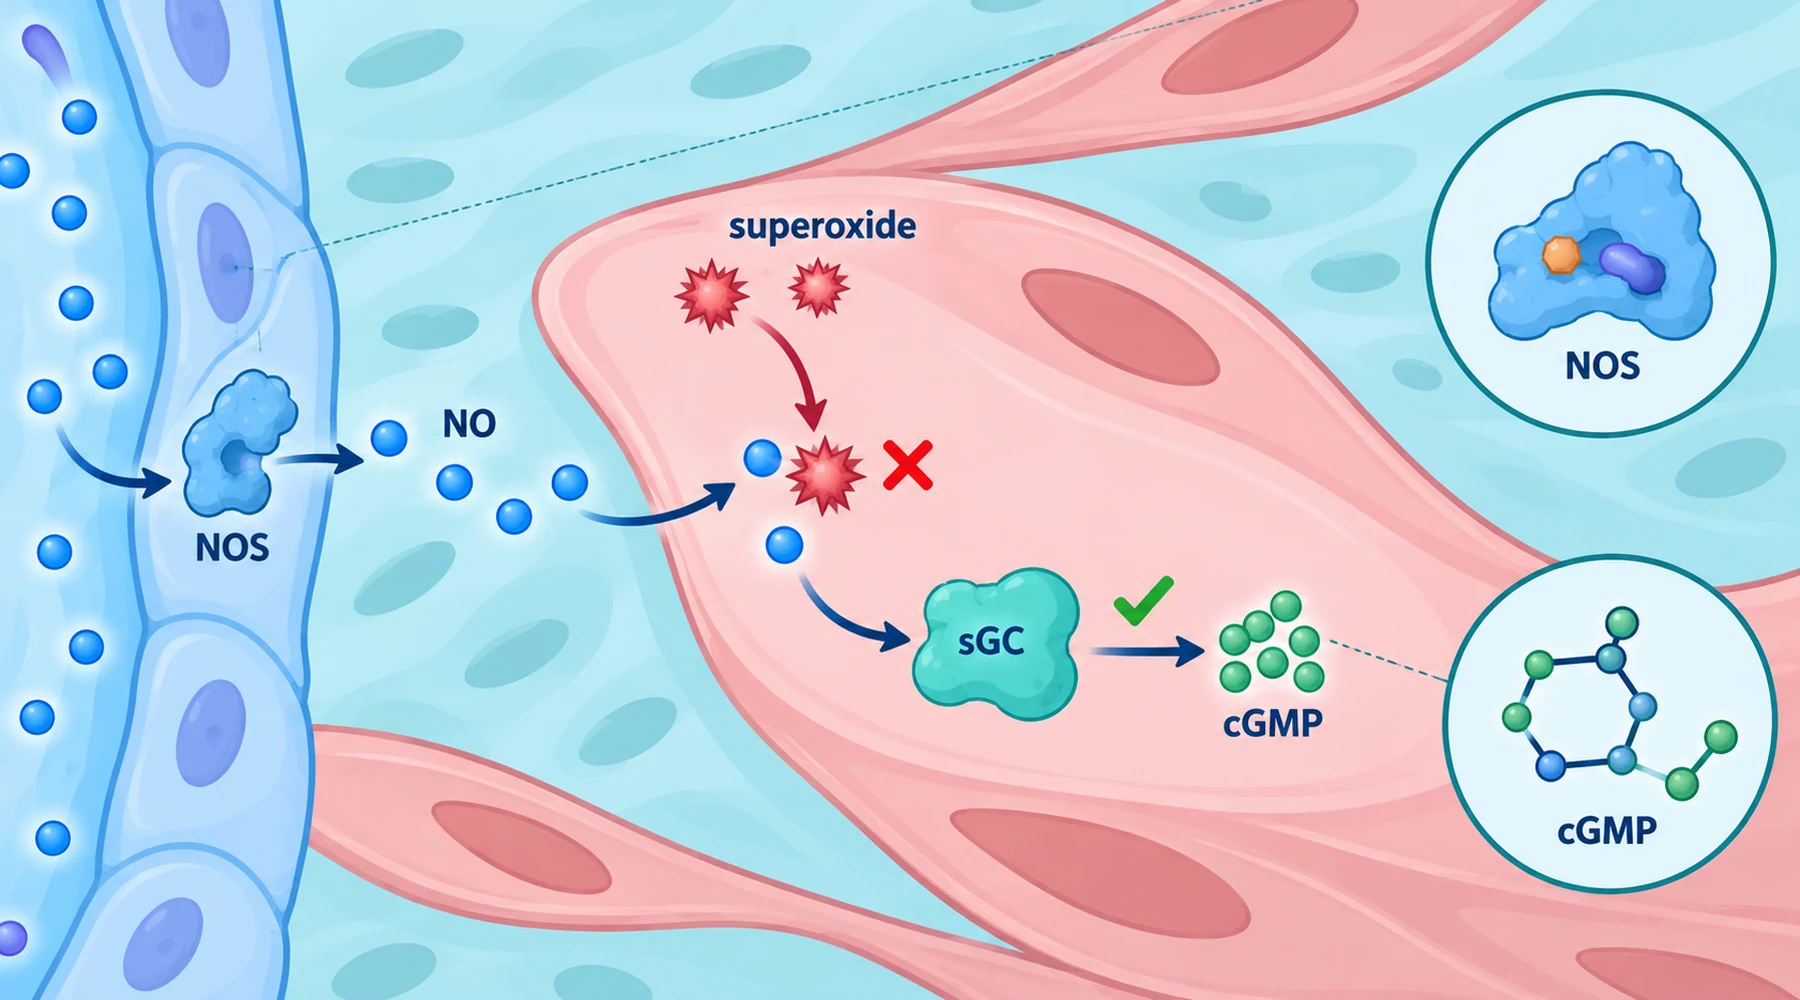
Ve stěně cévy probíhá standardní posloupnost následovně. Podnět působí na endotelovou buňku. Endotelová syntáza oxidu dusnatého, označovaná jako eNOS nebo NOS3, vytvoří malý pulz oxidu dusnatého. Plyn difunduje do sousední buňky hladké svaloviny, váže se na hem s redukovaným železem v rozpustné guanylátcykláze a urychluje přeměnu GTP na cyklický GMP. Cyklický GMP aktivuje proteinkinázu G, mění se regulace vápníku a svalovina se uvolňuje.
Existuje také druhý řetězec, který je vhodné posuzovat odděleně. Během infekce nebo při působení cytokinů buňky přepisují gen pro jiný enzym, inducibilní syntázu oxidu dusnatého neboli iNOS, označovanou také jako NOS2. Ta vytváří větší a déle trvající toky oxidu dusnatého než eNOS. Třetí izoforma, neuronální NOS neboli nNOS, patří do dalšího odlišného kontextu. Když článek zmiňuje syntázu oxidu dusnatého bez upřesnění izoformy, zastavte se a ověřte, která byla měřena. Přehled toho, jak methylenová modř přenáší elektrony, zdůrazňuje totéž u redoxních cílů obecně: přenašeč sám o sobě nic nezmůže a výsledek určuje partner na každém konci.
Naměřený cyklický GMP je navíc souhrnným ukazatelem, nikoli přímým testem enzymu. Jeho hladina odráží syntézu cyklázou po odečtení rozkladu fosfodiesterázami, zejména PDE5 v cévní hladké svalovině. Pokles cyklického GMP tedy znamená, že k detektoru dorazilo méně signálu. Sám o sobě neurčuje, který článek selhal.
Článek 1: vzniká méně enzymu iNOS
V myších makrofázích stimulovaných bakteriálním lipopolysacharidem, interferonem gama nebo oběma zabránila methylenová modř očekávanému nárůstu proteinu iNOS a výrazně potlačila mediátorovou RNA iNOS v experimentech s transkripcí v makrofázích. Důležité je to, co se nezměnilo. Degradace inhibitoru I kappa B alfa, fosforylace NF kappa B a STAT1 i přesun těchto faktorů do jádra zůstaly z velké části zachovány. Poklesla jejich vazba na DNA, což potvrdila chromatinová imunoprecipitace prokazující nižší obsazení promotoru iNOS.
Jde o regulační účinek na gen, který předchází změně množství enzymu, nikoli o akutní blokádu již existujícího enzymu. Patří do zánětlivé signalizace, při níž se transkripční faktory musí navázat na promotor, než se objeví protein. Neříká nic přímo o konstitutivní eNOS v klidové cévě a takto by měl být také popisován.
Článek 2: již existující enzym NOS pracuje pomaleji
Studie na potkanech testovala jinou úroveň. Samcům potkanů při vědomí byl intravenózně podán lipopolysacharid a o tři hodiny později buď fyziologický roztok, nebo methylenová modř v dávce 3 mg na kg intravenózně. Aktivita syntázy oxidu dusnatého v mediobazálním hypotalamu byla měřena podle přeměny značeného argininu na citrulin ve studii aktivity NOS v hypotalamu. Samotný stres spolu s fyziologickým roztokem vyvolal určitou aktivitu nezávislou na vápníku a lipopolysacharid ji zvýšil přibližně na desetinásobek kontrolní úrovně. Methylenová modř odstranila obě indukované složky. Konstitutivní aktivita závislá na vápníku se v této tkáni při dané dávce a v daném časovém bodě nezměnila.
Čtěte tento výsledek přesně tak, jak je uveden: za těchto podmínek byla potlačena naměřená aktivita typu iNOS. Nejde o měření genové exprese ani o důkaz trvalé selektivity pro iNOS oproti eNOS nebo nNOS. Práce s purifikovanými enzymy tuto opatrnost dále podtrhují. V přímých testech purifikované syntázy oxidu dusnatého methylenová modř zcela zablokovala tvorbu citrulinu při koncentraci 30 mikromolů na litr. Koncentrace vedoucí k poloviční inhibici byla přibližně 5.3 mikromolu na litr bez superoxiddismutázy a 9.2 mikromolu na litr s ní, jak uvádí porovnání purifikované NOS a guanylátcyklázy. Samostatná studie purifikované nNOS poukázala na oxidaci hemu vázaného v enzymu. Praktické poučení je, že přímá inhibice NOS v izolovaných systémech skutečně existuje, ale výsledek z hypotalamu nelze rozšířit na obecné tvrzení, že methylenová modř všude ponechává všechny konstitutivní NOS nedotčené.
Článek 3: oxid dusnatý se ztrácí, než dorazí
Nejjasnější důkaz, že pokles cyklického GMP může vysvětlovat i něco jiného než blokáda enzymu, pochází z kultivovaných buněk hladké svaloviny plicní tepny králíka. Experiment zcela obešel endogenní NOS přímým přidáním donorů oxidu dusnatého a poté zjišťoval, zda methylenová modř stále potlačuje odpověď cyklického GMP, ve studii superoxidu v cévní hladké svalovině.
Byly testovány tři donory v koncentracích od 1 do 100 mikromolů na litr: S-nitroso-L-cystein, nitroprusid sodný a stabilní deaminovaný analog označovaný jako MPANO. Všechny zvýšily cyklický GMP přibližně na 1.5násobek až 12násobek. Methylenová modř při koncentraci 10 mikromolů na litr inhibovala odpověď na první dva o 51 až 100 procent a odpověď na MPANO ponechala nezměněnou. Kdyby methylenová modř pouze blokovala katalytické místo cyklázy, bylo by obtížné tuto selektivitu vůči donorům vysvětlit, protože všechny tři působí přes stejný navazující enzym.
Tři kontrolní experimenty pak spojily mechanismus se superoxidem. Zaprvé tvorba extracelulárního superoxidu pomocí xanthinu a xanthinoxidázy reprodukovala stejný vzorec: odpovědi na CYSNO a nitroprusid byly blokovány, odpověď na MPANO zůstala zachována. Zadruhé methylenová modř vyvolala v buňkách hladké svaloviny tvorbu superoxidu závislou na dávce a čase, měřenou redukcí cytochromu c. Zatřetí superoxiddismutáza inhibici zcela zabránila, zatímco kataláza nikoli. To v daném experimentálním systému ukazuje na superoxid, nikoli na peroxid vodíku, jako na bezprostředně působící chemickou formu.
Za zmínku stojí i verze experimentu se společnou kultivací, protože ukazuje, kde účinek nastává. Endotelové buňky na krycích sklíčkách byly krátce společně kultivovány s buňkami hladké svaloviny, takže bazálně uvolňovaný endotelový faktor zvýšil cyklický GMP v hladké svalovině na trojnásobek až osminásobek. Předchozí ošetření kteréhokoli z obou buněčných oddílů methylenovou modří tento signál snížilo a superoxiddismutáza částečně zvrátila účinek předchozího ošetření endotelu. Jinými slovy, methylenová modř vůbec nemusí působit uvnitř buňky hladké svaloviny, která signál detekuje. Může jej oslabit odstraněním signální molekuly během jejího přenosu. Průvodce čtením výzkumu methylenové modři z toho vyvozuje obecné pravidlo: než pojmenujete molekulární cíl, určete oddíl, v němž zásah proběhl.
Označit to za inhibici NOS by bylo nesprávné. K působení donorů nebyl zapotřebí žádný krok zprostředkovaný syntázou, a přesto signál poklesl.
Článek 4: samotný detektor reaguje méně
Přímé účinky na rozpustnou guanylátcyklázu existují, ale záleží na koncentracích. Ve výše citovaném porovnání purifikovaných enzymů potřebovala cykláza stimulovaná oxidem dusnatým k poloviční inhibici přibližně 60 mikromolů methylenové modři na litr, zatímco poloviční inhibice NOS nastávala přibližně při 5 až 9 mikromolech na litr. I koncentrace 1 milimolu na litr přitom vyvolala jen částečnou maximální blokádu. To představuje přibližně šestinásobný až jedenáctinásobný rozdíl. Buněčný experiment při nízké mikromolární koncentraci, který sníží cyklický GMP, proto nelze označit za selektivní inhibici cyklázy pouze na základě hodnoty cyklického GMP.
Pozdější redoxní studie přidala druhé upozornění: methylenová modř deaktivovala cyklázu aktivovanou oxidem dusnatým mechanismem odlišným od prosté oxidace hemového železa vzdušným kyslíkem. Detektor tedy může být narušen, ale chemický mechanismus není dořešený a rozdíl v koncentracích znamená, že při expozici nízkým mikromolárním koncentracím je nejprve vhodné vyloučit účinky superoxidu a NOS. Sem patří také kontrola vlivu fosfodiesteráz. Pokud nebyl rozklad měřen nebo blokován, je snížené hromadění cyklického GMP slučitelné s menší syntézou, rychlejší degradací nebo obojím.
Proč to nelze zredukovat na jediné tvrzení o krevním tlaku
Každý článek byl doložen v jiném systému. Transkripce v makrofázích není totéž co enzymová aktivita v hypotalamu. Aktivita v hypotalamu po podání lipopolysacharidu není totéž co klidový tonus zprostředkovaný endotelem. Bazálně uvolňovaný endotelový faktor při společné kultivaci není totéž co vazodilatace stimulovaná agonistou. Kultivované buňky plicní tepny vystavené methylenové modři při koncentraci 10 mikromolů na litr nejsou lidský krevní oběh. Sloučit tyto poznatky do tvrzení typu „methylenová modř zvyšuje krevní tlak blokováním oxidu dusnatého“ znamená zahodit právě ty rozdíly, které měly kontrolní experimenty zachovat.
Tři ověření pomáhají zachovat přesnost výkladu. Zaprvé pojmenujte izoformu: eNOS pro klidový cévní tonus, iNOS pro indukovaný tok při zánětu a nNOS pro neuronální prostředí a některé experimenty s purifikovanými enzymy. Zadruhé určete způsob přísunu signálu oxidu dusnatého: endogenní syntézu, bazální uvolňování z endotelu nebo konkrétní donor, například CYSNO, nitroprusid či MPANO, protože stabilní donor působení methylenové modři odolal, zatímco labilní donory nikoli. Zatřetí uveďte koncentraci a způsob zvrácení účinku: zvrácení pomocí superoxiddismutázy ukazuje na superoxid, neúčinnost katalázy svědčí proti peroxidu vodíku v daném experimentálním systému, napodobení účinku xanthinoxidázou ukazuje, že tento mechanismus k účinku stačí, a testy purifikovaných enzymů oddělují přímé účinky na katalýzu od ztrát během přenosu.
Stručné shrnutí zní takto. Methylenovou modř je vhodnější chápat jako látku narušující signalizaci od oxidu dusnatého k cyklickému GMP na více místech než jako selektivní blokátor cyklázy. Podle experimentálního systému a koncentrace může omezit vazbu transkripčních faktorů na promotor iNOS, přímo inhibovat enzymy NOS, snížit dostupnost oxidu dusnatého tvorbou superoxidu a narušit cyklázu aktivovanou oxidem dusnatým. Úloha signalizace cyklického GMP v cévních studiích a porovnání donorů oxidu dusnatého používaných v buněčných testech rozebírají každou z těchto větví podrobněji a metody oddělující redoxní účinky od účinků na enzymy vysvětlují, proč se v této literatuře tak často objevuje kombinace superoxiddismutázy, katalázy a kontrolního experimentu se stabilním donorem.
Nízká hodnota cyklického GMP po působení methylenové modři ukazuje na přerušený řetězec. Jen kontrolní experimenty určí, který článek se přerušil.