
Článek
Měření reaktivních forem kyslíku v experimentech s methylenovou modří
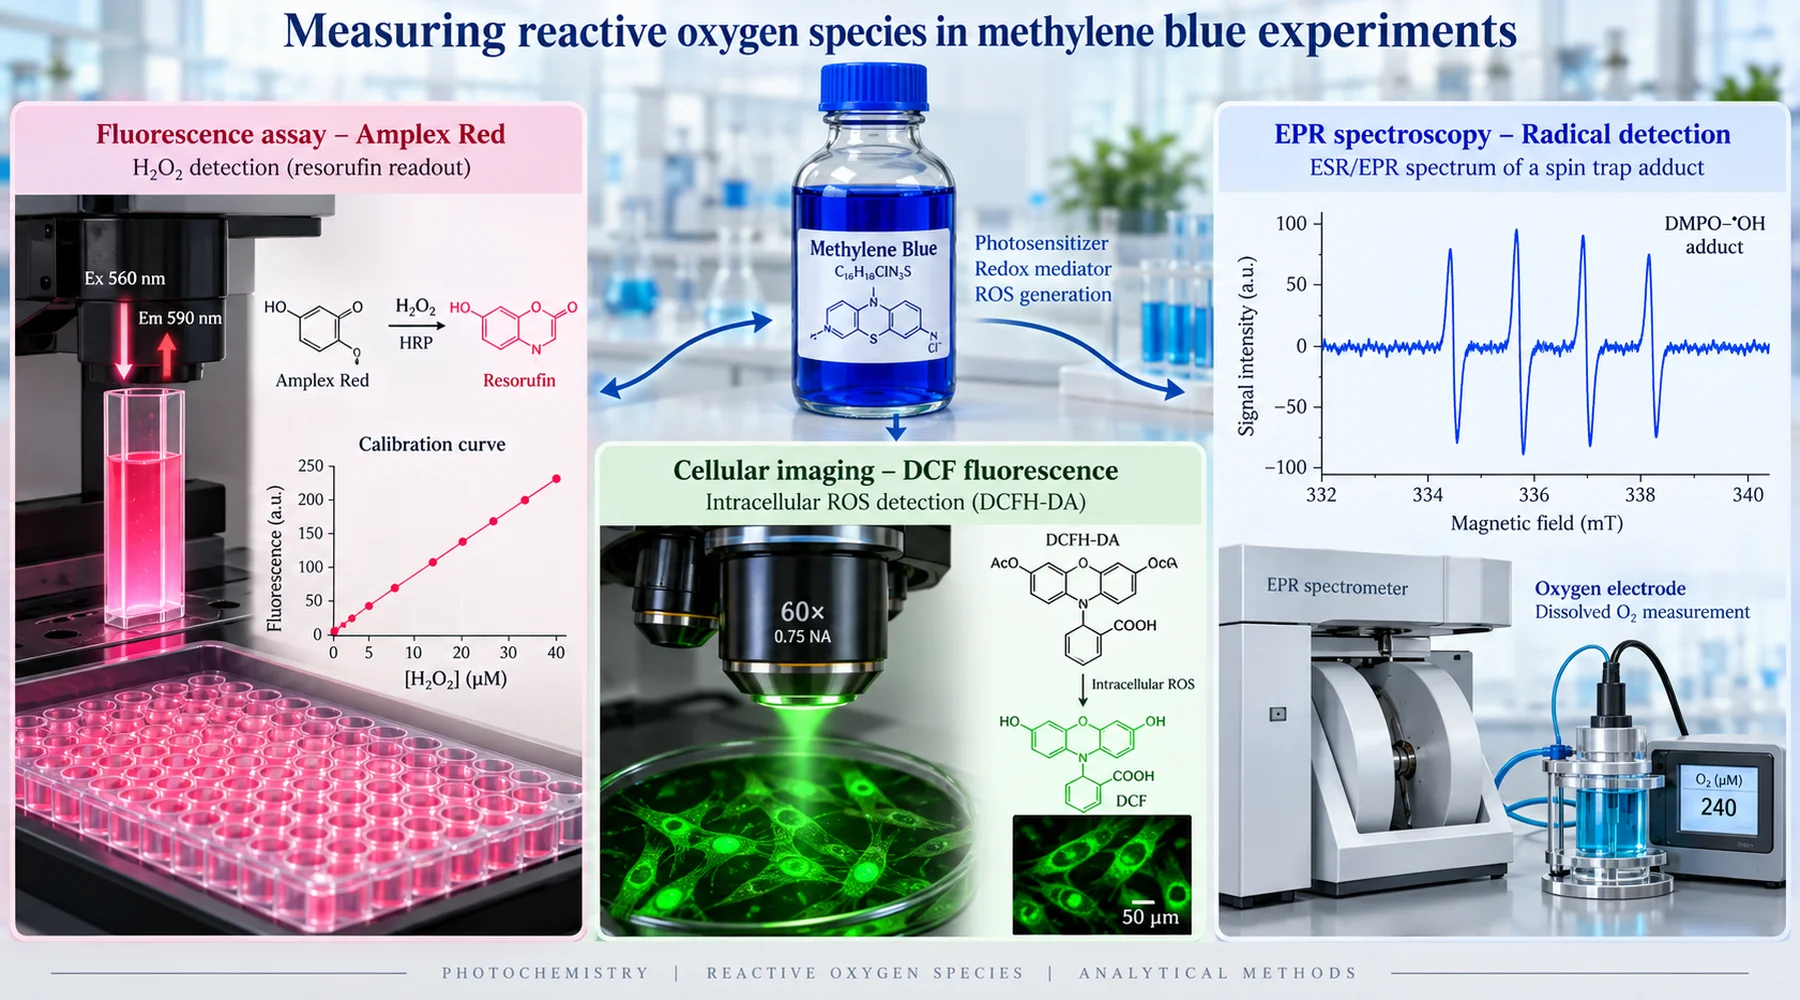
Dvě laboratoře provádějí experiment, který obě označují za zkoušku antioxidačního působení methylenové modři. Jedna uvádí, že barvivo potlačuje reaktivní formy kyslíku. Druhá uvádí, že je vytváří. Obě předkládají jasné křivky závislosti odezvy na dávce. Obě jednají v dobré víře. Rozdíl nespočívá v podvodu ani v nekompetentnosti. Spočívá v tom, že obě skupiny měřily různé věci při různém osvětlení, se sondami, které odpovídají na různé otázky, a pak obě odpovědi popsaly stejným výrazem: ROS.
Methylenová modř je molekula, u níž je přesné měření obtížné právě proto, že se účastní chemických dějů, které má sledovat. Ve tmě přenáší elektrony mezi donory a akceptory a vrací se do své výchozí formy, připravena na další cyklus. Na světle se stává fotosenzibilizátorem a přechází do excitovaného tripletového stavu, z něhož může předat energii kyslíku za vzniku singletového kyslíku nebo přenášet elektrony za vzniku radikálů a peroxidu vodíku. Jakákoli sonda vložená do tohoto systému může být samotným barvivem oxidována, redukována, vybělena nebo opticky zastíněna. První otázkou při jakémkoli měření ROS proto nikdy není, jaká je výsledná hodnota. Je jí to, co metoda skutečně detekuje a jak barvivo samotnou metodu ovlivňuje.
Amplex Red: kalibrované stanovení peroxidu vodíku
Kombinace methylenové modři a Amplex Red je při správném provedení nejlépe obhajitelným spojením v této literatuře. Chemický princip je specifický: křenová peroxidáza využívá peroxid vodíku k oxidaci substrátu Amplex na fluorescenční produkt resorufin, přibližně ve stechiometrickém poměru jedna ku jedné. Peroxid ze vzorku se v detektoru projeví jako fluorescence. Žádný jiný člen běžně uváděné skupiny ROS tuto reakci přímo nevyvolává.
Rozhodující výhodou je kalibrace. Pečlivý experimentátor změří známé peroxidové standardy ve stejném pufru, se stejnými koncentracemi peroxidázy a substrátu, stejnou dobou inkubace a stejným optickým nastavením a následně vyhodnotí vzorky podle této křivky. Ve studii izolovaných mozkových mitochondrií, o kterou se tato metoda opírá, autoři postupovali právě takto: na konci každého měření přidávali známá množství peroxidu a výsledky uváděli jako rychlosti v pikomolech za minutu na miligram proteinu, nikoli v arbitrárních jednotkách fluorescence. Právě to mění světelný signál v měření.
Tři podrobnosti z této studie stojí za převzetí. Za prvé autoři ověřili signál katalázou, která rozkládá peroxid. Nárůst fluorescence vyvolaný methylenovou modří se po přidání katalázy zastavil, což potvrdilo, že signál pocházel z peroxidu, nikoli z optického artefaktu. Za druhé přímo testovali vliv osvětlení: pomocí závěrky omezili excitační paprsek tak, aby vzorky dostaly jednu osminu obvyklé světelné dávky, a signál klesl pouze o devět procent. Více než devadesát procent jimi naměřeného peroxidu vznikalo nezávisle na světle používaném při měření. Za třetí samostatně měřili odstraňování peroxidu pomocí elektrody a zjistili, že barvivo současně zvyšovalo jeho tvorbu a zpomalovalo jeho odstraňování. Sonda, která zaznamenává pouze výslednou fluorescenci, by tyto dva účinky sloučila.
Metoda má přesto své slabiny a methylenová modř jich odhaluje hned několik. Barvivo absorbuje v širokém pásmu téže červené oblasti, v níž resorufin emituje, takže při vysokých koncentracích barviva může vzorek zastínit vlastní signál v důsledku efektů vnitřního filtru. Standardy by proto měly obsahovat stejnou koncentraci barviva jako vzorky. Amplex Red může také sám podléhat fotooxidaci a jeho produkt resorufin může vstupovat do fotoredoxních cyklů, které vytvářejí superoxid a peroxid. To je zvlášť důležité, pokud experiment zároveň zahrnuje osvětlování fotosenzibilizátoru. Praktickým řešením je nejprve ozářit vzorky s methylenovou modří a poté stanovit alikvotní podíly s reagenciemi Amplex ve tmě, místo aby se barvivo a sonda osvětlovaly společně. A konečně superoxiddismutáza signál Amplex jednoduše nepotlačuje: přeměna superoxidu na peroxid jej může zvýšit. Kontrola se SOD, která zvýší fluorescenci, tedy neselhala. Určila superoxid jako formu stojící na začátku reakčního řetězce.
DCFDA: nespecifický indikátor oxidace
Kombinace methylenové modři a DCFDA je zdrojem většiny nejasností. DCFH-DA je prekurzor určený k zavedení do buněk. Esterázy uvnitř buňky odstraní jeho acetátové skupiny a zanechají nefluorescenční DCFH; oxidací DCFH pak vzniká fluorescenční DCF. Seznam látek, které jej oxidují, je dlouhý: hydroxylové radikály, meziprodukty reakcí peroxidázy a hemu, oxid dusičitý, kyselina chlorná a radikály odvozené od peroxynitritu. Samotný peroxid vodíku jej přímo neoxiduje žádnou prakticky využitelnou rychlostí; fluorescence závislá na peroxidu obvykle vyžaduje účast železa, hemových proteinů nebo peroxidázových reakcí.
Kritika, kterou by měla citovat každá metodická část, vychází z analýzy DCFH jako sondy od Kalyanaramana a kolegů, shrnuté ve studii mozkových mitochondrií, která z tohoto důvodu DCFDA odmítla. Ukázali, že barvivo reaguje pomalu, s necharakterizovanou stechiometrií, bez platné kalibrace a také se sloučeninami, které nepatří mezi ROS. Sonda navíc zesiluje to, co měří: jednoelektronová oxidace DCFH vytváří radikál DCF, který reaguje s kyslíkem za vzniku superoxidu, jenž dismutuje na další peroxid. Měření tak částečně samo vytváří chemické děje, které zaznamenává.
Nic z toho neznamená, že je DCFDA nepoužitelná. Znamená to, že slouží k orientačnímu screeningu, nikoli k identifikaci. Nárůst fluorescence DCF znamená, že se zvýšila oxidace sondy závislá na oxidantech. Neznamená to, že vzrostlo množství peroxidu, a rozhodně to neznamená, že vzrostlo celkové množství ROS, tedy veličina, kterou žádná jednotlivá sonda neměří. Dřívější práce s methylenovou modří, které se opíraly o oxidaci DCF při koncentracích nad jeden mikromol na litr, uváděly prooxidační účinky, zatímco jiné systémy ve stejné době vykazovaly ochranu před buněčnou smrtí vyvolanou peroxidem. Obě pozorování mohou platit pro stejné barvivo v různých redoxních podmínkách a samotný výsledek DCF nemůže určit, který oxidant byl zdrojem signálu. Význam dřívější práce s mozkovými mitochondriemi spočívá v tom, že tento screening nahradila kalibrovaným měřením peroxidu a zátěž zjistila přímo: už sto nanomolů barviva na litr zvýšilo uvolňování peroxidu několikanásobně u všech testovaných substrátů a respiračních stavů.
DCFDA skrývá ještě jednu past specifickou pro methylenovou modř. Barvivo je intenzivně zbarvené a redoxně aktivní, takže může vybělovat fluorescenční signál, zhášet emisi nebo oxidovat sondu nezávisle na buněčných ROS. Bezbuněčná kontrola obsahující barvivo a sondu, ale žádné buňky, není volitelným doplňkem. Je to experiment, který ukáže, zda barvivo interaguje se sondou.
Spinový záchyt a spotřeba kyslíku: identita a tok
Zatímco fluorescenční sondy hlásí, že se objevilo něco oxidovatelného, elektronová spinová rezonance se spinovými záchytnými činidly poskytuje informaci bližší tomu, co to bylo. Klasická studie fotochemie methylenové modři využila ESR k detekci askorbátového radikálu vznikajícího působením barviva, askorbátu a světla, poté prokázala tvorbu peroxidu v experimentech se spotřebou kyslíku a tvorbu hydroxylového radikálu katalyzovanou železem při měřeních se spinovým záchytem. Každá technika odpověděla na otázku, na kterou ostatní odpovědět nedokázaly: ESR určila identitu radikálu, spotřeba kyslíku poskytla reakční tok nezávislý na jakékoli fluorescenční sondě a jejich kombinace ukázala, že ve stejném osvětleném systému probíhají jak dráhy singletového kyslíku, tak radikálové dráhy.
Výsledek z roku 1984 stále působí jako varovný štítek. Při osvětlení a za přítomnosti redukčního činidla barvivo vytvářelo peroxid a za přítomnosti železa systém produkoval hydroxylový radikál, nejreaktivnější formu z celé skupiny. Autoři to spojili s askorbátem v oku a zpochybnili neuvážené oftalmologické použití. Dnešní čtenáři by měli věnovat pozornost podmínkám: světlo plus redukční činidlo plus železo. Odstraněním kterékoli z těchto složek se reakční dráha oslabí nebo zanikne.
Kyslíkové elektrody mají své opodstatnění z jiného důvodu. Elektroda Clarkova typu měří čistou spotřebu kyslíku, což potvrzuje, že redoxní děje poháněné barvivem spotřebovávají molekulární kyslík, a poskytuje kinetické údaje, které žádný fluorescenční artefakt nedokáže napodobit. Produkt však neurčuje. Tvorba peroxidu, superoxidu a vody i zánik singletového kyslíku spotřebovávají kyslík. Tok bez určení identity je stejně neúplný jako určení identity bez toku, a proto kvalitní práce kombinují elektrodu s kalibrovaným stanovením peroxidu nebo se záchytným činidlem.
Proč si antioxidační výsledky odporují
Porovnáme-li tyto tři typy měření vedle sebe, zdánlivé rozpory v literatuře o methylenové modři se vysvětlí rozdíly v metodách a třemi biologickými skutečnostmi.
Za prvé je barvivo současně přenašečem elektronů i zdrojem peroxidu. Odváděním elektronů od míst v respiračním řetězci, kde by se kyslík jinak měnil na superoxid, může snižovat jednu formu ROS, zatímco jeho redukovaná forma přímo redukuje kyslík na peroxid a zvyšuje tak jinou. Laboratoř zabývající se mitochondriální redoxní chemií a úlohou barviva při obcházení elektronových drah by proto měla očekávat odpovědi závislé na sondě: signál citlivý na superoxid klesá, zatímco signál peroxidu ve stejné kyvetě stoupá.
Za druhé je peroxid v nízkých dávkách signálem, nikoli jen zdrojem poškození. Studie mitochondrií myšího mozku, která navázala na dřívější práci, zjistila tvorbu peroxidu již při padesáti nanomolech barviva na litr, bez poškození mitochondriální DNA při terapeutických hladinách, a po předchozím ošetření pozorovala ochranu před poškozením vyvolaným rotenonem. Teprve při sto mikromolech na litr, tedy výrazně nad terapeutickým rozmezím, barvivo poškodilo vybrané fragmenty DNA; červené světlo spolu s dvaceti mikromoly barviva na litr vytvářelo singletový kyslík, který poškodil všechny testované fragmenty. Navržený mechanismus je hormetický: mírná tvorba peroxidu spouští antioxidační obranné mechanismy spojené s Nrf2 a mitochondriální biogenezi, takže krátkodobý prooxidační výsledek předchází dlouhodobějšímu antioxidačnímu účinku. Výsledky měření po jedné hodině a po jednom dni se mohou lišit, protože se mezitím změnily biologické děje.
Za třetí světlo rozhoduje o tom, která molekula je vůbec přítomna. Osvětlení demethyluje barvivo za vzniku Azure B a příbuzných produktů a k jeho fotosenzibilizaci stačí lampa mikroskopu nad miskou. Experimenty ve tmě a za osvětlení jsou odlišné experimenty a část každého protokolu věnovaná kontrolám osvětlení a zacházení s barvivem by k nim tak měla přistupovat.
Minimální sada kontrol a jak posuzovat jakékoli tvrzení
Níže uvedené srovnání je původním referenčním přehledem tohoto článku. Než přijmete jakýkoli výsledek měření ROS u methylenové modři, ověřte, které řádky autoři splnili a které vynechali.
| Kontrola | Co vylučuje | Jak ji provést |
|---|---|---|
| Tma oproti definovanému osvětlení | Zaměňování redoxních účinků základního stavu s fotochemií | Stejné barvivo, stejná matrice, jedna větev ve tmě, druhá při měřené světelné dávce |
| Sonda plus světlo, bez barviva | Fotochemii sondy | Osvětlete samotnou sondu; jakýkoli signál představuje základní úroveň artefaktu |
| Barvivo plus světlo, bez buněk nebo substrátu | Zaměňování buněčných ROS s ROS vznikajícími působením samotného barviva | Bezbuněčná matrice; určuje, co vytváří samotné barvivo |
| Kataláza | Signál nepocházející z peroxidu při měření Amplex | Signál by měl klesnout; pamatujte, že osvětlené barvivo může poškodit samotnou katalázu |
| SOD | Účast superoxidu | Nárůst signálu Amplex ukazuje na superoxid v předchozím reakčním kroku, nikoli na selhání metody |
| Chelátor železa, například deferoxamin | Tvorbu hydroxylových radikálů reakcemi Fentonova typu | Testuje, zda je redoxně aktivní železo příčinou signálu DCFH nebo záchytného činidla |
| Peroxidové standardy v kompletní matrici | Nekalibrovanou fluorescenci | Známé přídavky peroxidu při totožné koncentraci barviva a totožném optickém nastavení |
Z toho plyne praktické pravidlo pro interpretaci. Kalibrované měření Amplex s peroxidázou a kontrolou katalázou poskytuje důkaz o peroxidu. DCFDA poskytuje důkaz o nespecifické oxidaci sondy a o ničem dalším. Spinový záchyt s kontrolami využívajícími vychytávače radikálů poskytuje důkaz o identitě radikálů. Spotřeba kyslíku poskytuje důkaz o toku. Věta, která tvrdí více, než může použitá metoda doložit, je bez ohledu na to, jak sebejistě je napsána, větou o sondě, nikoli o barvivu. Související pojednání o závislosti na dávce a hormetickém rozmezí, mitochondriálním toku elektronů, interferencích při měření obarvených vzorků a artefaktech osvětlení při mikroskopii každý z těchto bodů dále rozvíjejí a každý zůstává platný i po nahrazení svého zástupného odkazu.