
Článek
Když methylenová modř narušuje experiment, kterým se měří
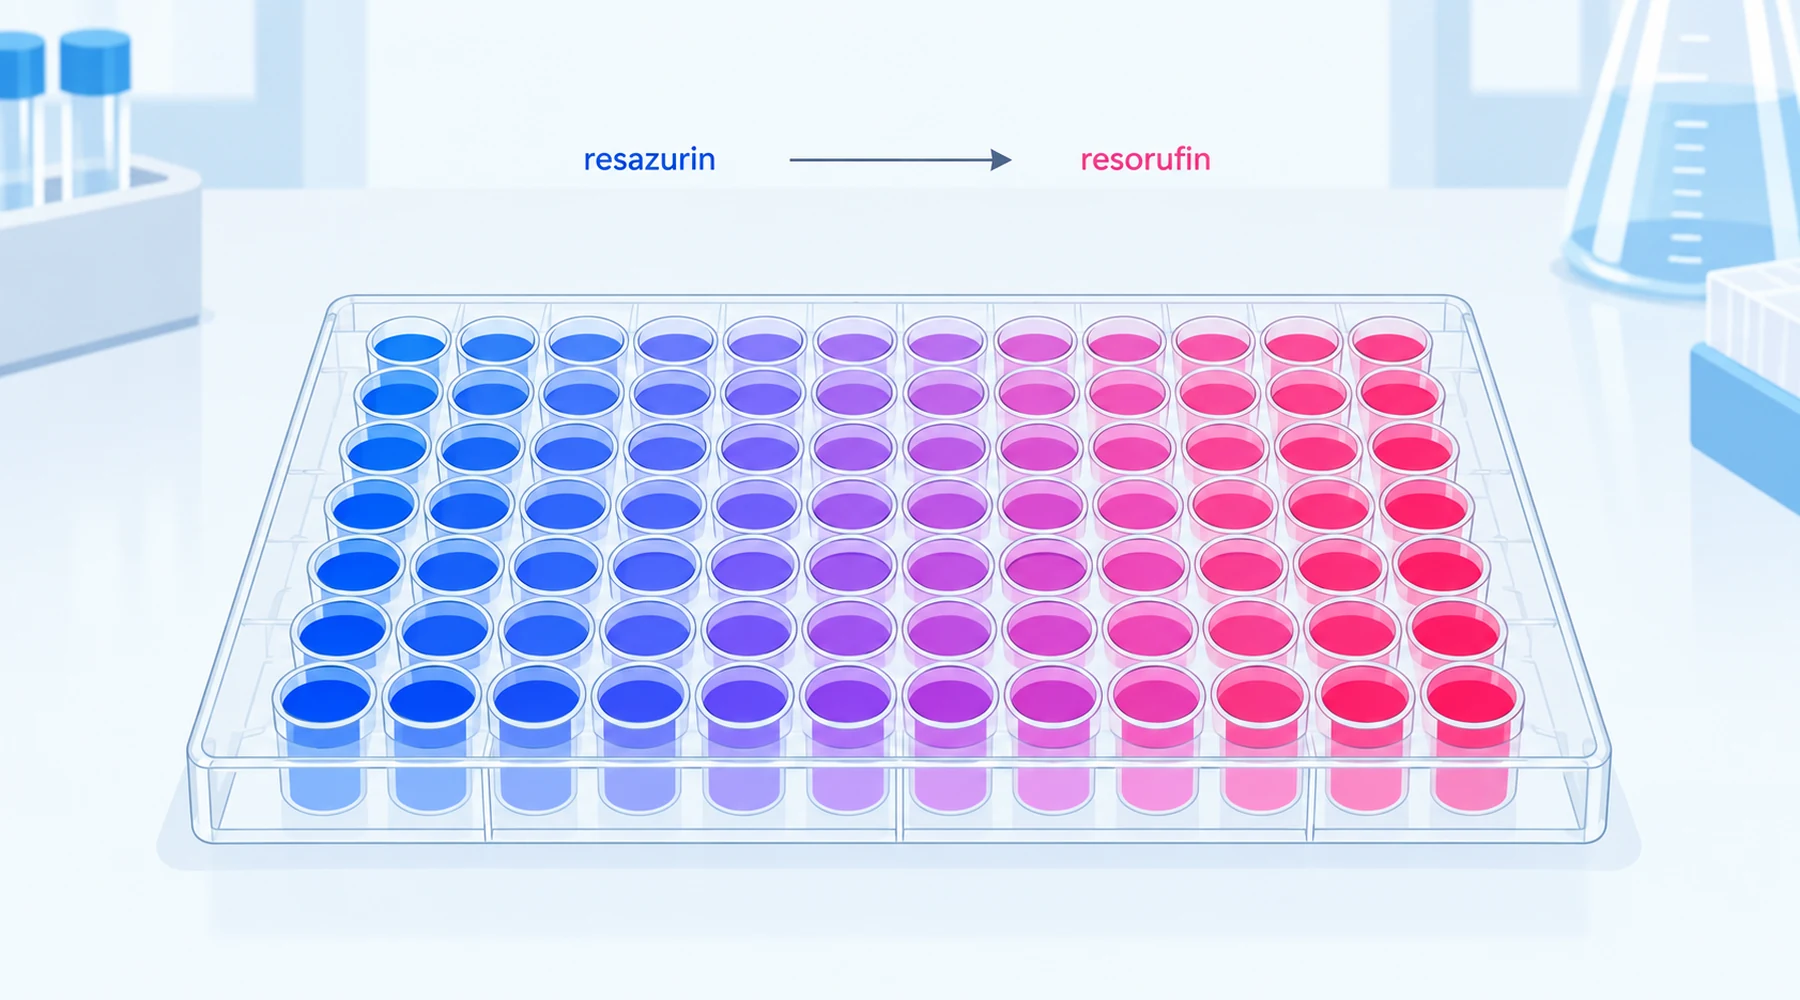
Jedna laboratoř odchovává embrya dania pruhovaného v methylenové modři při standardní koncentraci používané v chovu a poté měří metabolismus dvěma způsoby. První den analyzátor Seahorse ukazuje zvýšenou spotřebu kyslíku. Čtvrtý a pátý den test Alamar Blue na mikrotitrační destičce ukazuje snížený energetický výdej. Stejné barvivo, stejná linie ryb, opačné závěry. Pak přichází nenápadná kontrola: jamky obsahující methylenovou modř a činidlo Alamar Blue, ale žádné ryby, také vykazují slabší signál než samotné činidlo. Část výsledku odrážela biologické změny. Část byla důsledkem toho, že barvivo hodnotilo svou vlastní zkoušku. Toto rozdělení, zdokumentované ve studii methylenové modři u vyvíjejícího se dania pruhovaného publikované v roce 2025 v Communications Biology, je typickým obrazem interference methylenové modři v testech. Právě proto redoxně aktivní barviva vyžadují kontroly, které běžné testované sloučeniny nepotřebují.
Co resazurinový test skutečně ukazuje
Alamar Blue je obchodní název roztoku resazurinu, takže interference methylenové modři s Alamar Blue a interference methylenové modři v resazurinovém testu popisují tentýž střet. Oxidovaný resazurin je modrý a téměř nefluoreskuje. Metabolicky aktivní buňky jej redukují na resorufin, který je růžový a silně fluoreskuje při excitaci kolem 560 nm a emisi kolem 590 nm. Podle protokolu výrobce pro mikrotitrační destičky jsou použitelné rozsahy přibližně 530 až 570 nm pro excitaci a 580 až 610 nm pro emisi. Při další redukci se resorufin mění na dihydroresorufin, který fluoreskuje slabě. Příliš mnoho buněk v jamce nebo příliš dlouhá inkubace proto ohýbají horní část kalibrační křivky směrem dolů.
Elektrony pocházejí převážně z NADH a NADPH prostřednictvím buněčných reduktáz a diaforáz v cytosolu, mikrosomech a mitochondriích. Výsledek měření tak vyjadřuje souhrnnou redukční kapacitu, nikoli počet životaschopných buněk ani mitochondriální aktivitu. Vyšší signál může znamenat více buněk, vyšší tok redukčních ekvivalentů na buňku nebo obojí. Sloučenina, která přesměruje NADH, změní signál, aniž by usmrtila jedinou buňku. Tuto větu si zapamatujte, protože přesměrovávání NADH je pro methylenovou modř typické.
Dvě cesty interference, jeden snížený signál
Methylenová modř zkresluje výsledek resazurinového testu dvěma nezávislými cestami a každá z nich sama o sobě snižuje zdánlivou fluorescenci.
Cesta 1 je optická. Methylenová modř silně absorbuje v červené oblasti spektra. Absorpční pás monomeru leží kolem 660 až 665 nm a rameno pásu dimeru kolem 607 až 610 nm, přičemž jeho okraj zasahuje směrem k emisi resorufinu kolem 590 nm. Barvivo v optické dráze absorbuje část excitačního světla a znovu absorbuje část emitované fluorescence. Tento efekt vnitřního filtru zeslabuje signál z jamky, i když se tvorba resorufinu nemění. Spektrum se také mění podle stavu barviva: faktorová analýza spekter methylenové modři ve vodě a roztocích cyklodextrinů rozlišuje monomer, dimer a komplex hostitel–host jako tři formy s odlišnými extinkčními koeficienty v rozsahu 500 až 700 nm. Velikost optické chyby se tedy mění s koncentrací, agregací a vazbou. Při experimentu odlište prosté optické zeslabení od molekulárního zhášení pomocí níže popsaného testu výtěžnosti přídavku, protože náprava se liší.
Cesta 2 je redoxní konkurence. Oxidovaná methylenová modř přijímá elektrony z NAD(P)H a vytváří bezbarvou leukomethylenovou modř. Molekulární kyslík ji znovu oxiduje na modrou formu, přičemž vznikají redukované produkty kyslíku včetně peroxidu vodíku. Každý oběh tohoto cyklu spotřebovává redukční ekvivalenty, které by jinak redukovaly resazurin, a zároveň spotřebovává kyslík a vedle toho vytváří peroxid. Snížený signál Alamar Blue tedy může znamenat, že elektrony prošly cyklem methylenové modři místo toho, aby vedly ke vzniku resorufinu. Na destičce se to jeví jako utlumený metabolismus bez ohledu na to, co se dělo v buňkách. Stejná chemie vysvětluje opačnou past u přístrojů měřících kyslík: opětovná oxidace redukovaného barviva kyslíkem vede k chemické spotřebě kyslíku bez přítomnosti biologického materiálu. Slepé vzorky s barvivem proto patří i do respirometrie, jak pro mitochondriální měření vysvětluje srovnání výsledků měření kyslíku, ATP a membránového potenciálu.
Změna signálu i biologická změna mohou být skutečné současně
Studie na daniu pruhovaném je cenná právě tím, že odmítá jednoduché „buď, anebo“. Biologické změny byly skutečné: bazální spotřeba kyslíku vzrostla u 1 den starých embryí při obou chovných koncentracích, respirace spojená s tvorbou ATP vzrostla při nižší z nich, membránový potenciál měřený sondou JC-10 vzrostl druhý den a množství transkriptů mitochondriálních komplexů kleslo první a čtvrtý den. Skutečný byl i artefakt: ryby třikrát promyté před krokem s Alamar Blue stále vykazovaly viditelné modré zbarvení v oblasti hlavy, úst a čichových orgánů. Jamky bez buněk obsahující barvivo a činidlo samy o sobě ztratily malou, ale významnou část fluorescence. Pokles signálu Alamar Blue u organismů čtvrtý a pátý den byl větší než efekt v jamkách bez buněk, takže autoři výsledek interpretovali jako skutečnou metabolickou změnu pozorovanou přes mírně zkreslující čočku. To je správný způsob uvažování. Látka, která prochází redoxním cyklem a zároveň absorbuje světlo jako modré barvivo, obvykle ovlivní studovanou dráhu i chemii indikátoru současně. Úkolem kontrol je určit velikost každého příspěvku, nikoli prohlásit jeden z nich za smyšlený. Související poučení přináší práce o vazbě na cyklodextriny: když hostitelská molekula zachytila barvivo, zbarvení i aktivace příjmu glukózy společně slábly. To naznačovalo, že metabolický účinek vyžaduje přímou interakci s barvivem, nikoli nespecifický redoxní šum. Právě porovnání fyzikálního měření barviva s funkčním měřením pomáhá oddělit mechanismus od artefaktu. Průvodce interpretací metabolických tvrzení založených na barvivech tento přístup dále rozvíjí.
Kontroly, které je oddělí
Tyto kontroly proveďte před interpretací jakéhokoli výsledku methylenové modři z resazurinové destičky. Koncentrace, médium, doba inkubace a osvětlení musí přesně odpovídat experimentu s buňkami, protože na nich závisí všechny výše uvedené cesty.
| # | Kontrola | Co odhaluje | Kritérium úspěchu | Pokud nevyhoví |
|---|---|---|---|---|
| 1 | Médium a barvivo, bez činidla a bez buněk | Pozadí barviva při vlnových délkách testu | Pozadí je malé oproti buněčnému signálu | Odečtěte slepé vzorky pro každou koncentraci, nikdy jeden společný slepý vzorek |
| 2 | Médium a činidlo, bez barviva a bez buněk | Spontánní redukci činidla | Nízká a stabilní základní hodnota během inkubace | Zkraťte inkubaci, změňte médium nebo přijměte vyšší spodní mez signálu |
| 3 | Médium, barvivo a činidlo, bez buněk | Přímou chemickou reakci barviva s činidlem | Shoda s kontrolou 2 v mezích šumu | Uveďte odchylku a nepřipisujte ji buňkám |
| 4 | Přídavek resorufinu do jamek s vehikulem oproti jamkám s barvivem | Optické zeslabení nebo zhášení | Stejná výtěžnost v obou matricích | Vyčíslete ztrátu pro každou dávku barviva a korigujte ji, nebo změňte způsob měření |
| 5 | Přenos zbytků bez buněk po promytí oproti stavu bez promytí | Zbytkové barvivo po vašich promývacích krocích | Promytí odstraní efekt pozorovaný bez buněk | Barvivo uvnitř buněk zůstává, takže kontroly 3 a 4 jsou stále nutné |
Kontroly 3 a 4 tvoří dvojici, kterou většina článků vynechává a většina článků o methylenové modři potřebuje. Kontrola 3 zachytí chemické vlivy, kontrola 4 optické vlivy a společně vymezí rozsah artefaktu ještě před vyslovením jakéhokoli tvrzení o biologických změnách.
Nezávislá měření, každé s vlastními výhradami
Žádný jednotlivý druhý test nepotvrdí správnost prvního. Každé měření založené na jiném principu se vyhne jedné cestě interference, ale zůstává vystaveno jiné. Zvolte proto kombinaci, jejíž slepá místa se nepřekrývají. Matice pro výběr testů redoxně aktivních sloučenin vysvětluje logiku jejich kombinování a průvodce sondami membránového potenciálu podrobně rozebírá úskalí fluorescence.
Měření spotřeby kyslíku pomocí Seahorse sleduje elektrony směřující ke kyslíku místo k resorufinu, a zcela tak obchází chemii indikátoru. Barvivo však spotřebovává kyslík i chemicky, takže jsou nezbytné slepé vzorky s barvivem v kompletním médiu bez mitochondrií. Luciferázové testy ATP využívají bioluminiscenci místo fluorescence resorufinu, a vyhýbají se tak jak optickému překryvu, tak konkurenci o reduktázy. Cenou za to je, že vypovídají o bilanci zásoby ATP, nikoli o rychlosti jeho syntézy. Sondy membránového potenciálu, jako jsou TMRM nebo JC-10, odpovídají na otázku, zda se udržuje nábojový gradient. Fluoreskují však ve stejné viditelné oblasti, v níž barvivo absorbuje, takže i je komplikuje zbytkové modré zbarvení a vyžadují slepé vzorky se samotným barvivem pro každou jeho dávku. Měření transkriptů podjednotek respiračních komplexů se optickým vlivům zcela vyhýbá a zachycuje změny v řádu hodin, čímž doplňuje destičková měření v řádu minut.
Minimální věrohodný soubor podkladů pro tvrzení o metabolickém působení methylenové modři tedy zahrnuje: výsledek resazurinového testu s kontrolami 1 až 4, jeden další ukazatel nezaložený na resazurinu a využívající jiný fyzikální princip a výslovné stanovisko k tomu, zda změna odráží počet buněk, tok redukčních ekvivalentů na buňku, nebo obojí. Cokoli menšího neumožňuje čtenáři rozlišit utlumený metabolismus od slabšího signálu z jamky.
Pracovní list pro kontrolu interference
Zkopírujte tento pracovní list do laboratorního deníku pro každý experiment, který kombinuje barvivo s redoxním indikátorem. Jde o původní pomůcku vytvořenou pro tento článek: pro každou koncentraci barviva vyplňte jeden řádek.
A. Cesty vzniku signálu. Pro každou koncentraci zaznamenejte: očekávanou převahu monomeru či dimeru (nízké mikromolární koncentrace oproti desítkám mikromolů na litr a výše), absorbanci konečného obsahu jamky při 590 nm v jamce bez buněk a procentuální výtěžnost přídavku resorufinu. Pokud výtěžnost klesne pod přibližně 90 procent, považujte všechny hodnoty fluorescence při této dávce za opticky zeslabené, nikoli za přesný obraz biologických změn.
B. Chemická kontrola. Při každém odečtu zaznamenejte fluorescenci barviva s činidlem bez buněk jako procento základní hodnoty samotného činidla. Pokud odchylka s časem narůstá, barvivo během testu reaguje s indikačním systémem a měření pouze v koncovém bodě budou zavádějící. Zvažte kinetická měření nebo jiný indikátor.
C. Nezávislé ověření biologických změn. Uveďte nezávislé měření zvolené pro tento experiment, jeho vlastní slepý vzorek s barvivem a předpokládaný výsledek, pokud je resazurinový výsledek skutečný. Skutečný útlum metabolismu by měl posunout nezávislý ukazatel odpovídajícím směrem. Pokud nezávislý ukazatel nesouhlasí, zatím nedůvěřujte ani jednomu výsledku a místo zprůměrování obou upravte návrh experimentu.
D. Závěrečná věta. Napište jednu větu ve tvaru: při uvedené dávce a ve uvedeném stadiu se resazurinový signál změnil o uvedenou hodnotu, z níž uvedenou část tvoří artefakt zjištěný bez buněk, a nezávislý ukazatel (souhlasí nebo nesouhlasí). Pokud kterákoli položka zůstane prázdná, experiment není dokončen.
Methylenová modř zůstává užitečnou metabolickou sondou a práce na daniu pruhovaném ukazuje skutečné mitochondriální účinky při dávkách, které mnohá pracoviště denně vylévají do odpadu. Barvivo jen vyžaduje měření přístroji, které nemůže ovlivnit. Dopřejte mu jamky se samotným barvivem, test výtěžnosti přídavku a jedno měření založené na jiném fyzikálním principu. Interference pak přestane být pastí a stane se vyčíslitelnou veličinou.