
Статия
Измерване на реактивни кислородни видове в експерименти с метиленово синьо
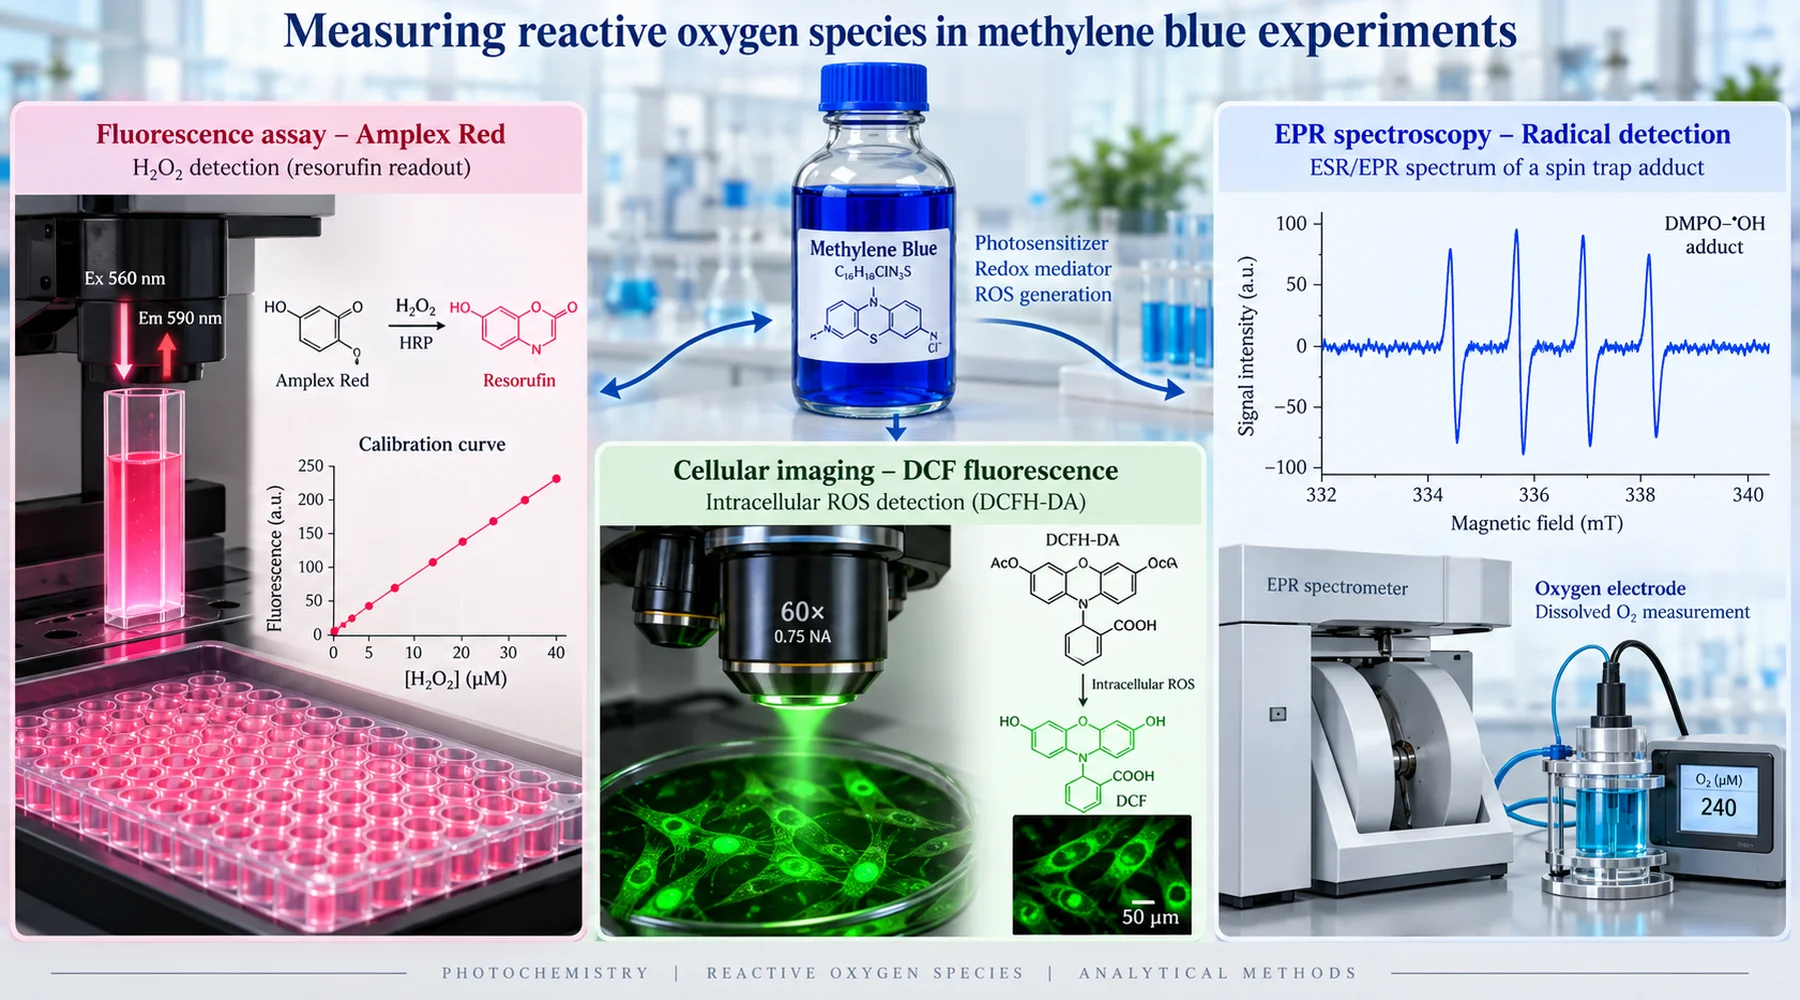
Две лаборатории провеждат експерименти с метиленово синьо, които всяка от тях определя като изследване на антиоксидантното му действие. Едната съобщава, че багрилото потиска реактивните кислородни видове. Другата съобщава, че ги образува. И двете представят ясни криви на зависимостта между дозата и отговора. И двете са добросъвестни. Разликата не се дължи на измама или некомпетентност. Двете групи са измервали различни неща при различно осветяване, със сонди, които отговарят на различни въпроси, а после са описали и двата отговора с една и съща дума: ROS.
Метиленовото синьо е молекула, която трудно се измерва точно, защото участва в химичните процеси, които трябва да наблюдава. На тъмно то пренася електрони между донори и акцептори и се връща в изходната си форма, готово за нов цикъл. На светлина се превръща във фотосенсибилизатор и достига възбудено триплетно състояние, от което може да предаде енергия на кислорода и да образува синглетен кислород или да прехвърли електрони и да образува радикали и водороден пероксид. Всяка сонда, добавена към тази система, може да бъде окислена, редуцирана, обезцветена или оптически маскирана от самото багрило. Затова първият въпрос при всяко отчитане на ROS никога не е каква е числената стойност. Той е какво всъщност открива анализът и как багрилото влияе върху него.
Amplex Red: калибриран анализ за водороден пероксид
Комбинацията метиленово синьо и Amplex Red е най-добре обоснованото съчетание в тази литература, когато е правилно организирана. Химичната реакция е специфична: пероксидазата от хрян използва водороден пероксид, за да окисли субстрата Amplex до флуоресцентен продукт — резоруфин — при приблизително едно към едно стехиометрично съотношение. Пероксидът от пробата се превръща във флуоресцентен сигнал в детектора. Нито един друг представител на общоприетата група ROS не задвижва пряко тази реакция.
Решаващото предимство е калибрирането. Внимателният изследовател измерва стандарти с известни количества пероксид в същия буфер, със същите концентрации на пероксидаза и субстрат, същото време на инкубация и същите оптични настройки, а след това отчита пробите спрямо тази крива. В изследването с изолирани мозъчни митохондрии, на което се основава този метод, авторите правят точно това, като добавят известни количества пероксид в края на всяка серия. Резултатите са представени като скорости в пикомоли на минута на милиграм белтък, а не като условни единици флуоресценция. Именно това превръща светенето в измерване.
Три подробности от това изследване заслужават да бъдат възприети. Първо, авторите проверяват сигнала с каталаза, която разгражда пероксида. Предизвиканото от метиленовото синьо нарастване на флуоресценцията спира при добавяне на каталаза, което потвърждава, че сигналът идва от пероксид, а не от оптичен артефакт. Второ, те проверяват осветяването пряко, като ограничават възбуждащия лъч със затвор, така че пробите да получават една осма от обичайната светлинна доза, а сигналът намалява само с девет процента. Повече от деветдесет процента от отчетения пероксид не зависи от светлината, използвана за измерването. Трето, те измерват отделно отстраняването на пероксида с електрод и установяват, че багрилото едновременно увеличава образуването му и забавя отстраняването му. Сонда, която отчита само нетната флуоресценция, би смесила тези два ефекта.
Анализът все пак има слабости и метиленовото синьо проявява няколко от тях. Багрилото поглъща светлина в широк диапазон от същата червена област, в която резоруфинът излъчва, така че при високи концентрации на багрилото пробата може да маскира собствения си сигнал чрез ефекти на вътрешния филтър. Затова стандартите трябва да съдържат същата концентрация на багрилото като пробите. Amplex Red може също да се фотоокислява самостоятелно, а продуктът му резоруфин може да участва във фоторедокс цикли, които образуват супероксид и пероксид. Това е особено важно, когато експериментът включва и осветяване на фотосенсибилизатор. Практическото решение е пробите с метиленово синьо първо да се облъчат, а после аликвотни части да се анализират с реагентите Amplex на тъмно, вместо багрилото и сондата да се осветяват заедно. И накрая, супероксиддисмутазата не просто потиска сигнала от Amplex: превръщането на супероксида в пероксид може да го увеличи. Контрола със SOD, която увеличава флуоресценцията, не е неуспешна. Тя е установила, че супероксидът участва на предходен етап.
DCFDA: неспецифичен индикатор за окисление
Съчетанието метиленово синьо и DCFDA е източникът на повечето обърквания. DCFH-DA е прекурсор, който се въвежда в клетките. Естеразите вътре в клетката отстраняват ацетатните му групи и оставят нефлуоресцентен DCFH, чието окисление дава флуоресцентен DCF. Списъкът на веществата, които го окисляват, е дълъг: хидроксилни радикали, пероксидазни и хемови междинни продукти, азотен диоксид, хипохлориста киселина и радикали, произхождащи от пероксинитрит. Сам по себе си водородният пероксид не го окислява пряко с практически значима скорост; зависимата от пероксид флуоресценция обикновено изисква участието на желязо, хемови белтъци или пероксидазни реакции.
Критиката, която всеки раздел за методите трябва да цитира, идва от анализа на DCFH като сонда, направен от Kalyanaraman и колеги и обобщен в изследването с мозъчни митохондрии, което отхвърля DCFDA по тази причина. Те показват, че багрилото реагира бавно, с неустановена стехиометрия, без валидно калибриране и със съединения, които не са ROS. Сондата също усилва онова, което измерва: едноелектронното окисление на DCFH образува DCF радикал, който реагира с кислорода и образува супероксид, а той дисмутира до допълнително количество пероксид. Самото отчитане отчасти поражда химичните процеси, за които съобщава.
Нищо от това не прави DCFDA безполезна. То я прави средство за скрининг, а не за идентификация. Нарастването на флуоресценцията на DCF означава, че зависимото от окислители окисление на сондата се е увеличило. То не означава, че пероксидът се е увеличил, и със сигурност не означава, че общото количество ROS се е увеличило — величина, която нито една отделна сонда не измерва. По-ранни изследвания на метиленовото синьо, основани на окислението на DCF при концентрации над един микромолар, съобщават за прооксидантни ефекти, докато други системи от същия период показват защита срещу клетъчна смърт, предизвикана от пероксид. И двете наблюдения могат да са верни за едно и също багрило при различни редокс условия, а резултатът от DCF сам по себе си не може да покаже кой окислител е породил сигнала. Значението на по-ранното изследване с мозъчни митохондрии е, че то заменя този скрининг с калибрирано измерване на пероксида и установява пряко натоварването: дори сто наномолар багрило увеличава отделянето на пероксид няколко пъти при всеки изпитан субстрат и всяко състояние на дишането.
DCFDA крие още един капан, специфичен за метиленовото синьо. Багрилото е силно оцветено и редокс активно, затова може да обезцветява флуоресцентния продукт, да гаси излъчването или да окислява сондата независимо от клетъчните ROS. Безклетъчната контрола с багрило и сонда, но без клетки, не е незадължително допълнение. Това е експериментът, който показва дали багрилото взаимодейства със сондата.
Спиново улавяне и консумация на кислород: идентичност и поток
Докато флуоресцентните сонди показват, че се е появило нещо, способно да окислява, електронният спинов резонанс със спинови капани дава по-конкретна информация за това какво е то. Класическото изследване на фотохимията на метиленовото синьо използва ESR за откриване на аскорбатния радикал в система с багрило, аскорбат и светлина, след което показва образуване на пероксид в експерименти с консумация на кислород и катализирано от желязо образуване на хидроксилни радикали в експерименти със спиново улавяне. Всеки метод отговаря на въпроса, на който другите не могат: ESR определя идентичността на радикалите, консумацията на кислород показва реакционния поток независимо от всяка флуоресцентна сонда, а комбинацията показва, че в една и съща осветена система действат както пътища със синглетен кислород, така и радикални пътища.
Този резултат от 1984 все още звучи като предупредителен надпис. При осветяване и наличие на редуциращ агент багрилото образува пероксид, а при наличие на желязо системата образува хидроксилния радикал — най-реактивния вид в тази група. Авторите свързват това с аскорбата в окото и поставят под въпрос безкритичната офталмологична употреба. Съвременните читатели трябва да обърнат внимание на условията: светлина плюс редуциращ агент плюс желязо. Ако се премахне което и да е от тях, реакционният път отслабва или изчезва.
Кислородните електроди имат друга роля. Електрод от типа на Кларк измерва нетната консумация на кислород, което установява, че задвижваните от багрилото редокс процеси консумират молекулен кислород, и дава кинетични данни, които никой флуоресцентен артефакт не може да имитира. Той не идентифицира продукта. Образуването на пероксид, супероксид и вода, както и разпадането на синглетния кислород, консумират кислород. Поток без идентичност е също толкова непълен, колкото идентичност без поток, затова убедителните публикации съчетават електрода с калибриран анализ за пероксид или с капан.
Защо резултатите за антиоксидантното действие си противоречат
Ако съпоставим трите вида отчитане, привидните противоречия в литературата за метиленовото синьо се свеждат до различия в методите плюс три биологични факта.
Първо, багрилото е едновременно преносител на електрони и източник на пероксид. Като отклонява електрони от участъците на дихателната верига, където иначе кислородът би се превърнал в супероксид, то може да намали един вид ROS, докато редуцираната му форма редуцира кислорода пряко до пероксид и увеличава друг. Затова лаборатория, която изследва митохондриалните редокс процеси и ролята на багрилото като обходен път, трябва да очаква отговори, зависещи от сондата: в една и съща кювета сигналът, чувствителен към супероксид, намалява, а сигналът за пероксид нараства.
Второ, пероксидът в ниски дози е сигнал, а не само източник на увреждане. Последващото изследване с митохондрии от миши мозък установява образуване на пероксид при едва петдесет наномолар багрило, без увреждания на митохондриалната ДНК при терапевтични нива, както и защита срещу предизвикани от ротенон увреждания след предварително третиране. Едва при сто микромолар, далеч над терапевтичния диапазон, багрилото уврежда определени ДНК фрагменти, а червена светлина плюс двадесет микромолар багрило образува синглетен кислород, който уврежда всички изпитани фрагменти. Предложеният механизъм е хорметичен: умереното образуване на пероксид задейства свързаните с Nrf2 антиоксидантни защити и митохондриалната биогенеза, така че краткосрочният прооксидантен резултат предхожда по-дългосрочен антиоксидантен ефект. Анализ, отчетен след един час, и анализ, отчетен след един ден, могат да дадат различни резултати, защото междувременно биологичните процеси са се променили.
Трето, светлината определя коя молекула изобщо присъства. Осветяването деметилира багрилото до Azure B и сродни продукти, а лампата на микроскопа над съда е достатъчна, за да предизвика фотосенсибилизация. Експериментите на тъмно и при осветяване са различни експерименти и разделът за контролите на осветяването и работата с багрилото във всеки протокол трябва да ги разглежда като такива.
Минимален набор от контроли и как да се тълкува всяко твърдение
Сравнението по-долу е оригиналният справочен материал към тази статия. Преди да приемете какъвто и да е резултат за ROS при метиленово синьо, проверете кои редове са изпълнили авторите и кои са пропуснали.
| Контрола | Какво изключва | Как да се проведе |
|---|---|---|
| Тъмнина спрямо определено осветяване | Смесване на редокс ефектите в основното състояние с фотохимията | Едно и също багрило, една и съща матрица, едното експериментално рамо на тъмно, другото при измерена светлинна доза |
| Сонда плюс светлина, без багрило | Фотохимия на сондата | Осветете само сондата; всеки сигнал е базово ниво на артефактите |
| Багрило плюс светлина, без клетки или субстрат | Смесване на клетъчните ROS с присъщите на багрилото ROS | Безклетъчна матрица; установява какво образува самото багрило |
| Каталаза | Сигнал, който не произхожда от пероксид, при анализ с Amplex | Сигналът трябва да намалее; имайте предвид, че осветеното багрило може да увреди самата каталаза |
| SOD | Участие на супероксид | Нарастването на сигнала от Amplex показва участие на супероксид на предходен етап, а не неуспех на анализа |
| Железен хелатор като дефероксамин | Хидроксилни реакции от типа на Фентън | Проверява дали редокс активното желязо стои зад сигнала от DCFH или капана |
| Стандарти за пероксид в пълната матрица | Некалибрирана флуоресценция | Добавяне на известни количества пероксид при еднаква концентрация на багрилото и еднакви оптични условия |
Оттук следва практическо правило за тълкуване. Amplex с пероксидаза, калибриран и проверен с каталаза, дава данни за пероксида. DCFDA дава данни за неспецифичното окисление на сондата и нищо повече. Спиновото улавяне с контроли с улавящи радикалите вещества дава данни за идентичността на радикалите. Консумацията на кислород дава данни за потока. Изречение, което твърди повече, отколкото анализът може да подкрепи, колкото и уверено да е написано, е изречение за сондата, а не за багрилото. Свързаните обсъждания на дозовата зависимост и хорметичния диапазон, митохондриалния електронен поток, смущенията в анализите на оцветени проби и артефактите от осветяването при микроскопия разширяват всяка от тези теми, а всяко от тези положения остава валидно и след замяната на временната препратка.