
文章
亚甲蓝激惹效应:为什么剂量-反应曲线会改变方向
一只大鼠在学会识别物体后接受4毫克/千克的亚甲蓝,第二天它仍然记得。另一只大鼠接受50毫克/千克,几乎不转动跑轮。分子是相同的,但作用方向并不相同。任何阅读过几篇以上亚甲蓝论文的人都会遇到这种逆转现象,它有一个名称:激惹(hormesis),即一种双相反应,其中低暴露量和高暴露量会将同一个终点推向相反方向。
这个名称只有在你了解它承诺什么以及不承诺什么时才有用。本文将逐步分析四组已发表的亚甲蓝数据集,每组都有自己的终点、浓度范围和实验设置,并说明为什么染料的化学性质使这种逆转具有合理性。文章最后强调数据所要求的警告:一条在某项实验中达到峰值的曲线,只描述该实验,而不是选择个人剂量的方法。
这种模式有一个名称,而这个名称比听起来更狭义
激惹一词由Southam和Ehrlich于1943年提出,并由Calabrese和Baldwin赋予现代定量形式:一种适应性双相反应,可由直接作用产生,或通过在稳态受到扰动后的补偿机制产生。注意这个定义中缺少什么。“有益”一词并未出现。激惹只表示曲线改变方向,仅此而已。
你看到的形状取决于纵轴上的终点是什么。当终点是酶活性、氧消耗或记忆评分等正向函数时,低剂量刺激随后高剂量抑制会形成倒U型。当终点是疾病发生率等负向指标时,低剂量抑制随后高剂量增强会形成J型或U型。同一种关系,不同的纵坐标。大多数亚甲蓝研究测量的是正向函数,因此本文讨论倒U型曲线,同时理解字母形状只是绘图选择。
2008年收集亚甲蓝激惹反应的综述使这种尺度更加具体。在行为、生理学和生化学研究中,刺激区间内的反应达到约对照组的130%至160%,平均接近140%,随后随着剂量继续升高,经过对照水平并下降至其以下。这一区间是许多实验的总结,并不是该分子的固有属性。下面每条曲线都有自己的峰值,并使用自己的单位。
为什么这种分子特别容易发生逆转
亚甲蓝并不是简单的电子供体。它是一种可逆穿梭体。氧化态蓝色形式接受电子,变为无色还原形式,而还原形式可以将这些电子传递到下游。关于亚甲蓝如何移动电子的描述中提到了这种电子传递,而这里的核心正是这种穿梭机制。
在低浓度下,这种循环为呼吸作用提供了一条替代路径。还原染料可在线粒体电子传递链末端酶细胞色素氧化酶处被氧化,从而增加其周转,同时提高氧消耗和呼吸能力。在更高浓度下,同样的嗜电子化学性质开始与正常电子传递链竞争,而不是帮助它:将电子从通常路径中分流,直接消耗氧,并产生活性氧,而不是产生有效能量。小型催化穿梭体,增加通量;过量竞争性汇,减少通量。这种化学性质使方向变化具有合理性,但它并不能保证任何特定终点会在哪里达到峰值。
没有线粒体的细胞也提供了浓度依赖性的独立证据。在1976年红细胞实验中,1微摩尔的低浓度通过强烈依赖氧合血红蛋白的途径刺激己糖单磷酸旁路,而高100倍的0.1毫摩尔浓度几乎不受是否存在氧合血红蛋白影响,并通过所使用的三个检测方法产生过氧化氢。同一种染料,两种机制,由浓度区分。红细胞无法进行呼吸,因此这不是线粒体曲线,但它显示了随着浓度升高,染料的氧化还原化学性质发生变化,这正是线粒体机制所要求的。
四条曲线,四种设置
下图将四组数据并列重新绘制。每个面板保留自身的坐标轴和条件,因为将它们放在同一尺度上比较会成为本文第一个错误。图示为示意图;精确数值和条件见正文。
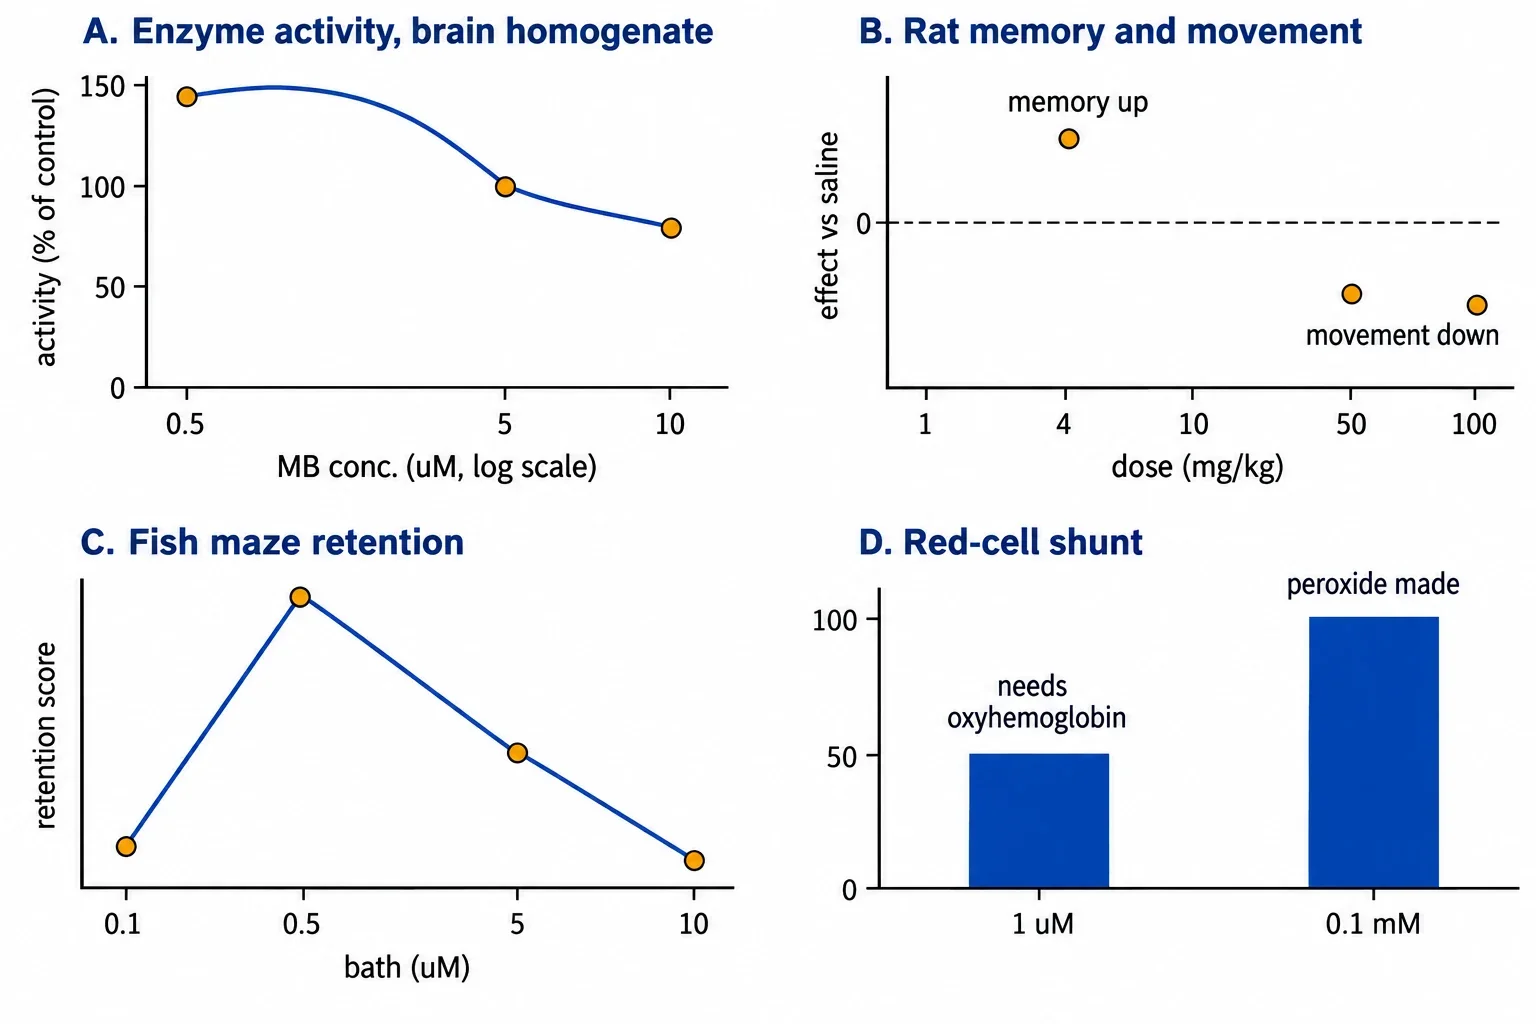
面板A:大鼠脑匀浆中的细胞色素氧化酶。 最清晰的线粒体曲线来自间接来源,由综述根据大鼠脑匀浆数据绘制:0.5微摩尔时活性约为对照组的138%,在5微摩尔附近回到对照水平,在10微摩尔附近低于基线,作者认为此时染料可能正在从电子传递链的正常复合体中夺取电子。匀浆、微摩尔、分光光度检测。这句话包含了全部背景,而该曲线离开这些条件后没有意义。
面板B:大鼠记忆和跑轮活动。 在大鼠记忆研究中,训练后立即进行单次注射,并在24小时后测试。1至10毫克/千克剂量下,大鼠运动和进食情况与生理盐水组无法区分,而50至100毫克/千克显著降低跑轮活动(中位数35转对279转),最高剂量导致竖毛、运动失调以及一只死亡。4毫克/千克剂量改善了习惯化和物体识别:处理组大鼠在新物体上停留时间多出接近10秒。暴露于低微摩尔还原染料的匀浆以及体内接受1毫克/千克24小时后的脑组织中,脑氧消耗均升高。注意区别:行为实验使用的是训练后全身给药剂量,氧消耗实验使用的是匀浆浓度加上一种体内剂量,这是两个实验,而不是一条曲线。
面板C:斑马鱼T迷宫。 斑马鱼研究中,训练后将鱼浸泡于名义浓度为0.1、0.5、5.0或10.0微摩尔的溶液中12小时,并以蓝色食用染料作为对照。0.5微摩尔组表现最佳,5.0微摩尔组与对照相同,10.0微摩尔组表现差于低剂量组。该面板有两个注意事项。浸浴微摩尔浓度并不是血液或脑部微摩尔浓度;分布和累积存在于水体和组织之间。并且统计结果弱于曲线形状所暗示的程度:高剂量组与低剂量组存在差异,但未报告其他显著组间差异。曲线存在,但较为粗略。
面板D:红细胞旁路。 Metz及其同事在人红细胞中比较了空气、一氧化碳以及在生理氧压下产生近乎完全羧基血红蛋白的混合条件下的1微摩尔和0.1毫摩尔浓度。低剂量刺激在没有氧合血红蛋白时消失;高剂量刺激几乎不受影响。过氧化物只在高剂量下出现。该面板应作为化学机制放在其他面板旁边,而不是作为某条主曲线上的第四个点:没有线粒体,浓度差达100倍,并且改变了气体混合条件。
为什么这些峰值不一致,而且本应如此
四个峰值分别位于匀浆中的0.5微摩尔、训练后注射的4毫克/千克、鱼缸水中的0.5微摩尔,以及红细胞中相差100倍的一组高低浓度。将其中任何两个视为同一个数字都是类别错误。每个终点都有自己的曲线:记忆的最佳点不一定与氧化酶活性、氧消耗、运动或过氧化物产生的最佳点相同。每种浓度单位代表不同含义:匀浆微摩尔、名义浸浴微摩尔、全身毫克/千克剂量、血浆、脑部和线粒体浓度都是不同量,而亚甲蓝倾向于在线粒体和脑中积累,使它们进一步分离。每个模型还增加了自身的药代动力学因素:物种、给药途径和时间决定了哪个组织在多长时间内接触多少染料。
这也是亚甲蓝安全性中剂量和途径作用重要的地方,因为这些论文中的高剂量效应——运动抑制、运动失调、一只大鼠死亡、过氧化物生成——都是各自实验设置中的毒性信号,而不是适用于其他人的安全范围。任何试图将大鼠4毫克/千克转换成人类方案的人,都应先了解动物研究结果如何与人类证据相关:简单的跨物种毫克/千克转换是不充分的。
需要避免的错误
倒U型曲线很有诱惑力,因为它看起来像一个标有最佳点的剂量旋钮。但它不是。激惹描述的是某个设置中某个终点发生的情况。将四个这样的描述叠加,你得到的是四个单位系统中的四个峰值,这与旋钮完全相反。正确使用这些曲线的方式是比较性和警示性的:预期作用可能随浓度逆转,预期每个终点会在自己的位置发生逆转,并对任何借用某个实验峰值来证明另一物种、途径、组织或目的中的剂量合理性的说法保持怀疑。区分实验模式与个人剂量决策,是整篇文章的核心,再次说明以避免遗漏。
如何阅读下一篇剂量-反应研究
你遇到的大多数亚甲蓝曲线都可以用四个问题理解。纵轴上的终点是什么,它的逆转会形成U型还是J型。横轴报告的浓度究竟是什么:名义浸浴浓度、匀浆浓度、血浆浓度、估计脑浓度,还是给定的全身剂量。产生该结果的模型和时间安排是什么:匀浆、细胞培养(开灯或关灯)、训练动物在训练前还是训练后给药,以及何时测试。以及对照是什么:生理盐水、蓝色食用染料、载体,以及论文统计是否支持每一对比较,还是只支持总体形状。一篇回答了全部四个问题的论文值得阅读。一篇只报告峰值而没有这些信息的论文,给出的只是一个没有地址的数字。