文章
更高的氧消耗是否意味着更多 ATP?亚甲蓝研究带来的启示
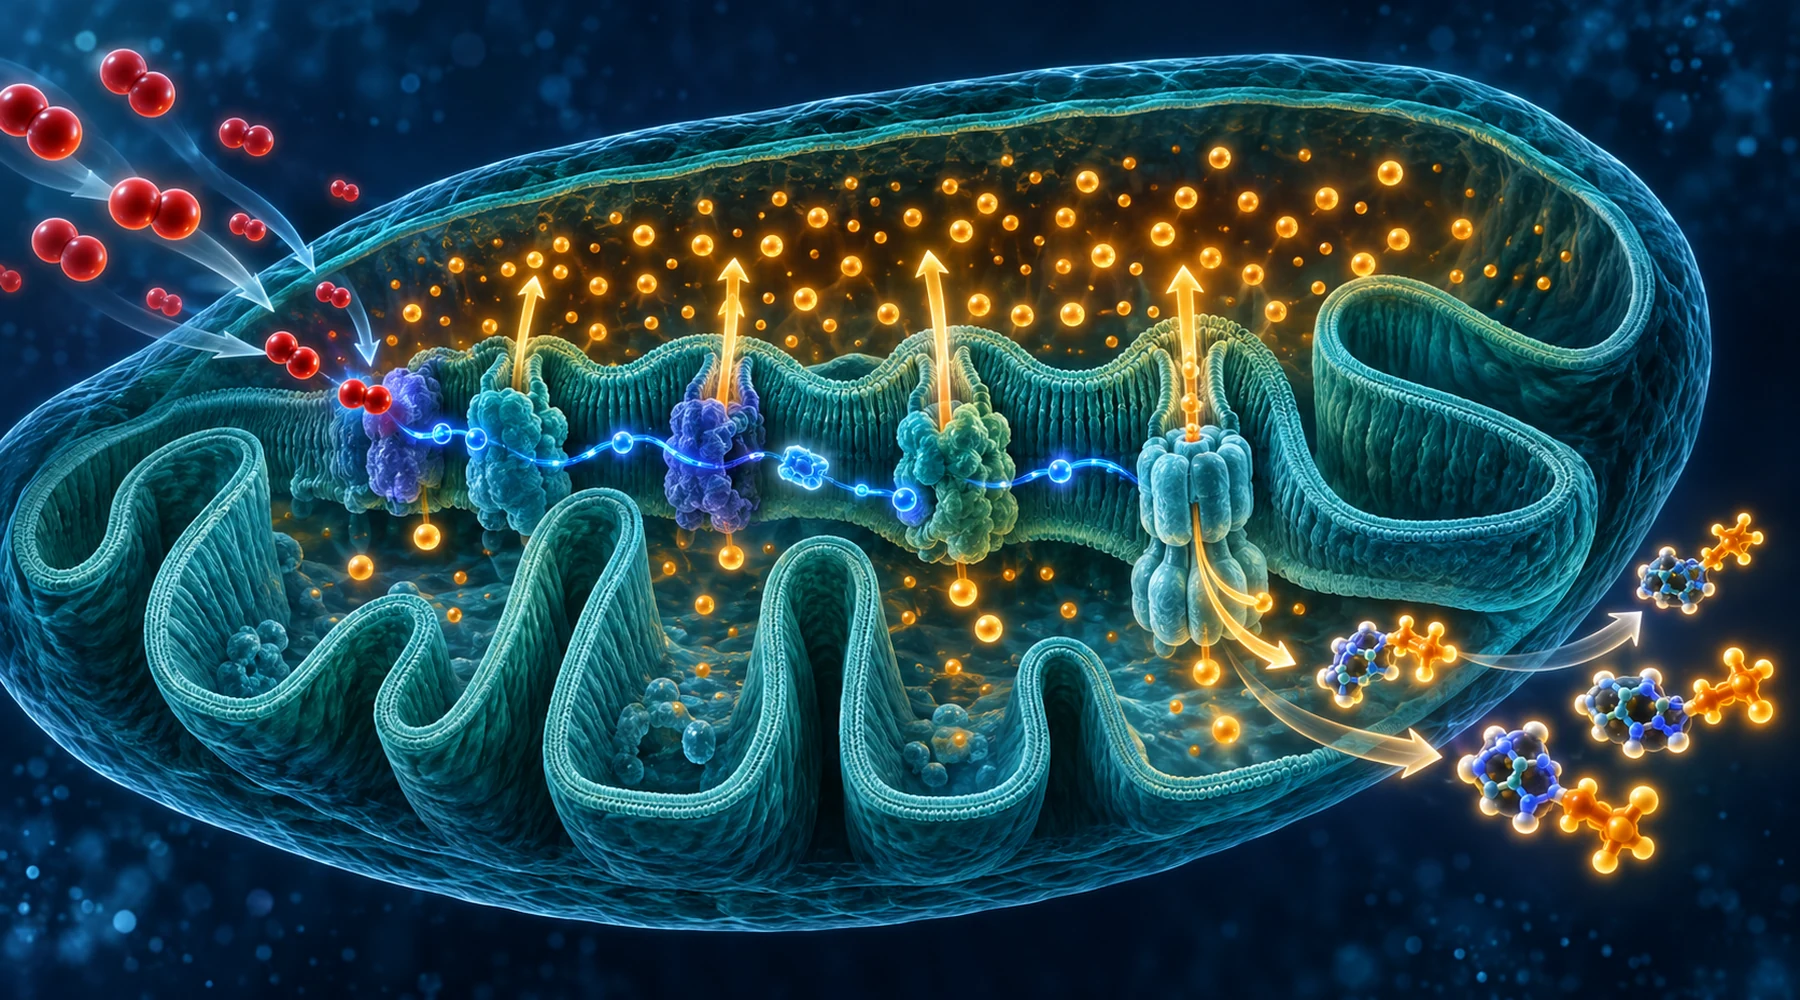
一个孤立的线粒体被置于一个含有燃料但没有 ADP 的腔室中。它缓慢消耗氧气。加入 ADP 后,氧消耗会增加数倍。等待 ADP 耗尽,氧消耗又会恢复下降。燃料从未改变。改变的只有 ATP 的需求。
这个小小的过程包含了本文所讨论的全部区别。氧消耗衡量电子通过呼吸链流向氧的速度。ATP 生成衡量其中多少流动被捕获为可用能量。两者共有一个中间环节,即线粒体内膜两侧的质子梯度;任何改变这一梯度与 ATP 合成之间偶联紧密程度的因素,都可能使这两个终点朝不同方向变化。亚甲蓝在这里是一个有用的示例,因为实验已发现它具有这两种作用:在某些制备物中,氧使用量与 ATP 一同升高;在另一些制备物中,氧使用量升高,而 ATP 保持不变或下降。
想先了解更广泛的电子接力图景的读者,可以从亚甲蓝如何在呼吸链中穿梭传递电子开始;想了解早期氧实验术语的读者,可以阅读最初的呼吸测量究竟显示了什么。
呼吸、ATP 以及两者之间的梯度
来自 NADH 和 FADH2 的电子在复合体 I 和 II 进入呼吸链,通过复合体 III 到达细胞色素 c,再通过复合体 IV 到达氧。复合体 I、III 和 IV 释放的能量将质子从基质泵入膜间隙。这种电荷与酸度的分离形成质子动力势,而其电学部分,即膜电位,通常占主导地位。
ATP 合酶让质子流回基质,并利用释放的能量将 ADP 与磷酸结合成 ATP。因此,这条链是:
氧消耗,然后质子泵送,然后形成梯度,然后 ATP 合成。
问题在于,质子也可以通过其他途径返回。任何绕过 ATP 合酶的返回都是质子泄漏。泄漏迫使呼吸链再次泵送同样的质子以维持膜电位稳定,这会消耗更多氧,却不生成更多 ATP。足够强的泄漏就是解偶联:氧使用量升高,而 ATP 保持不变或下降,浪费的能量以热的形式散失。
状态 3、状态 4 和呼吸控制比
这一领域的经典术语来自离体线粒体。状态 3 是底物与 ADP 同时存在时的呼吸:ATP 合酶消耗梯度,膜电位下降,呼吸链加速以重建梯度,由于正在生成 ATP,氧使用量很高。状态 4 是 ADP 耗尽后的呼吸:ATP 合酶闲置,梯度升高,较高的膜电位阻碍进一步泵送,氧使用量下降至补偿泄漏所需的水平。
因此,呼吸控制比,即状态 3 除以状态 4,反映制备物的偶联有多紧密。比值高意味着 ADP 对呼吸的控制很强。状态 4 升高而比值下降,意味着泄漏正占据主导。通过这一视角,就能理解下文的亚甲蓝结果。
有一个思维模型值得保留。高膜电位会使呼吸链减速。消散膜电位会使其加速。呼吸链响应的是泵送变得有多困难,而不是直接响应是否正在生成 ATP。
两个终点同步变化时
最清楚的偶联示例来自呼吸复合体被阻断的离体豚鼠脑线粒体。在亚甲蓝浓度为 100 纳摩尔至 1 微摩尔时,以谷氨酸加苹果酸、琥珀酸或甘油磷酸为燃料,静息氧消耗升高,而 ADP 刺激的呼吸没有变化。在复合体 I 或复合体 III 被毒物抑制的线粒体中,这种染料适度提高了 ATP 生成,恢复了膜电位,并改善了钙摄取。提出的途径是一条捷径:染料在阻断位置上游接受电子,并将其交给细胞色素 c,从而绕过受损的复合体。
第二个偶联案例采用完全不同的 ATP 来源。在ATP 合酶受到抑制的离体脑线粒体中,亚甲蓝仍然在每一种受测底物上促进呼吸。但 ATP 合成只在 α-酮戊二酸和谷氨酸这两种能够形成琥珀酰 CoA 的底物上升高。在寡霉素阻断 ATP 合酶的情况下,额外 ATP 来自柠檬酸循环中琥珀酰 CoA 连接酶介导的底物水平磷酸化,而不是氧化磷酸化。当复合体 I 与 ATP 合酶同时被抑制时,染料还恢复了膜电位。在这里,氧使用量与 ATP 同步变化,但仅限于底物允许第二条 ATP 途径的情况。在琥珀酸或苹果酸上,呼吸升高,却没有额外 ATP。同样的染料,同样的腔室,不同的燃料,不同的答案。
两个终点分离时
终点分离的案例同样已经发表,也同样具有启发性。在1997 年的一项离体大鼠肝线粒体研究中,亚甲蓝加快了以琥珀酸进行呼吸的紧密偶联线粒体的状态 4 呼吸,从而降低呼吸控制比。该效应从 0.5 微摩尔起就可见,在 5 微摩尔时很强;后者接近静脉快速注射 100 毫克后血浆中的浓度。在 5 微摩尔时,线粒体还发生肿胀,但偶联缺陷先在更低浓度出现,这支持泄漏先于结构损伤发生,而不是由结构损伤引起。在解偶联线粒体中,染料以可饱和、浓度依赖的方式促进呼吸。两种制备物的氧使用量都升高了。每单位氧消耗对应的 ATP 合成却没有升高。这就是同一个分子同时表现出教科书式的解偶联与电子穿梭。
最鲜明的分离来自视网膜。在AIF 缺陷小鼠和鱼藤酮处理的感光细胞中,亚甲蓝保留了视网膜厚度、感光细胞标志物和线粒体结构,降低了 NADH 与 NAD 的比值,并减弱了包括未折叠蛋白反应和线粒体自噬在内的应激通路。它做到这些,却没有纠正 ATP 不足。保护作用并未伴随能量恢复,意味着获益来自氧化还原平衡和线粒体完整性,而不是额外 ATP。任何将组织存活等同于能量输出恢复的人,都会彻底误读这一实验。
脑线粒体研究为同一张账表增加了代价一栏。改善生物能量学的相同低浓度,在所有受测条件下也提高了过氧化氢生成,并减慢其清除;测量采用的是经过校准的 Amplex 测定,而非非特异性染料。更多 ATP 与更多氧化剂成对出现。
实用阅读检查清单
四个问题可以区分偶联结果与解偶联结果。
第一,实际测量了哪个终点。仅凭氧消耗无法报告 ATP。ATP 合成、膜电位和呼吸控制比分别补充了氧电极无法看到的一部分信息。阅读亚甲蓝研究主张的指南详细讲解了这种终点判断方法。
第二,哪种底物供给线粒体。琥珀酰 CoA 的结果表明,燃料选择可以决定额外呼吸究竟能否转变成额外 ATP。
第三,采用了什么浓度。脑线粒体中的纳摩尔至低微摩尔亚甲蓝带来了适度的生物能量学改善,同时付出氧化剂增加的代价;肝线粒体中半微摩尔及以上浓度削弱偶联;5 微摩尔还增加了肿胀。浓度是机制的一部分,而不是背景细节。
第四,结果来自哪种模型。离体线粒体揭示内部连接,但完整细胞和组织还增加了转运、还原为无色形式以及竞争性电子去向。实验室剂量研究,包括浓度和方案如何塑造亚甲蓝效应,是腔室中的数值与任何关于人的主张之间的桥梁。
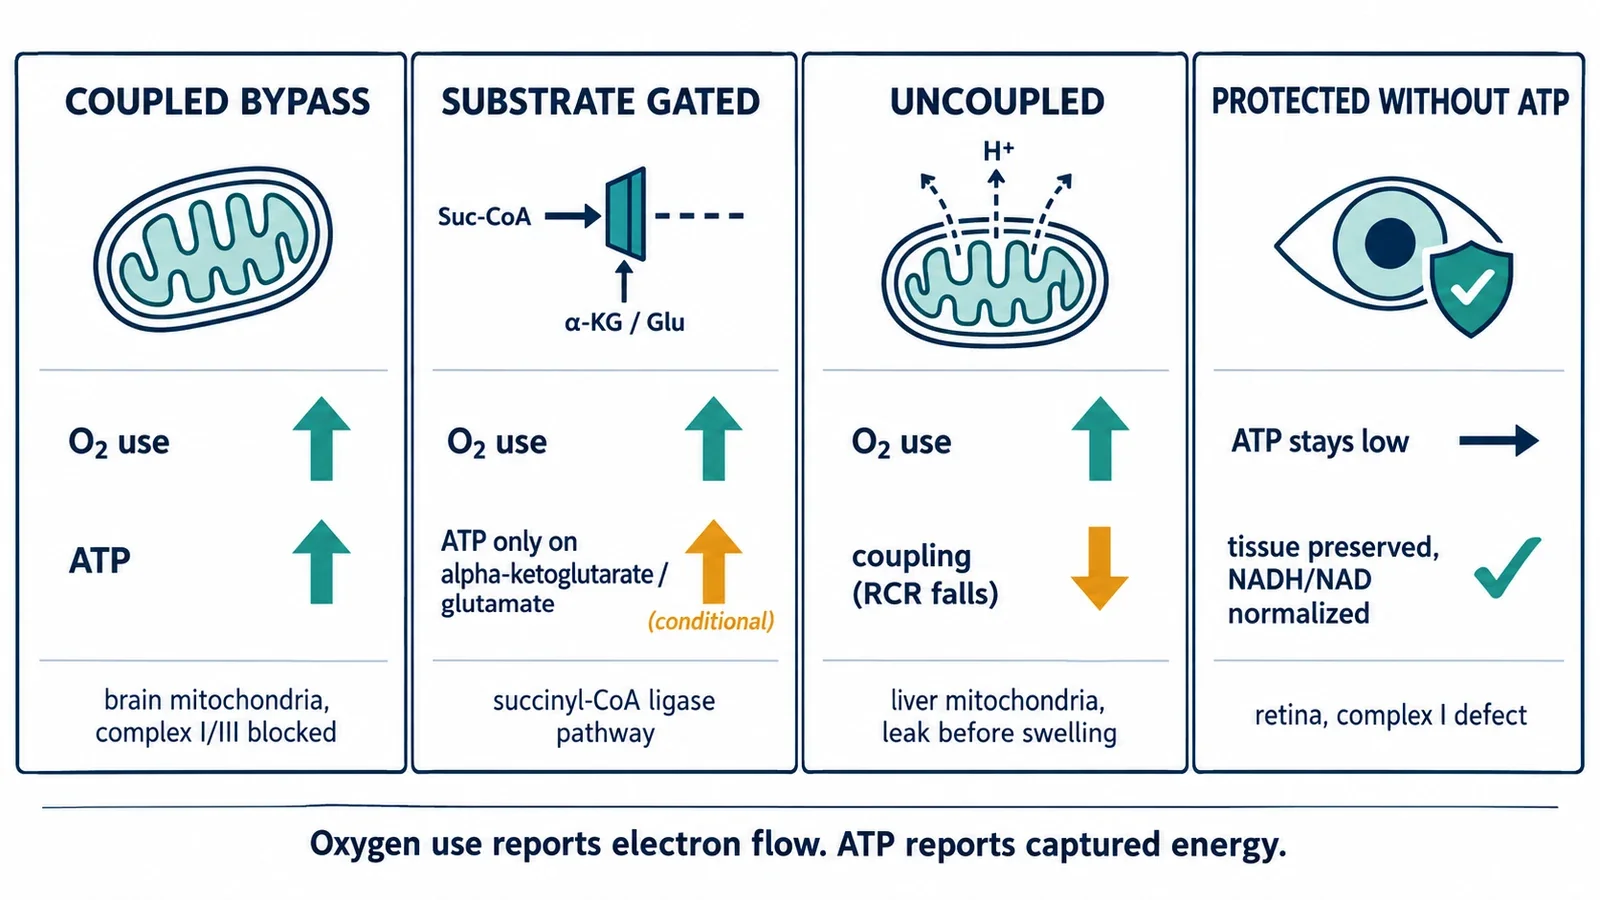
氧消耗报告电子流动。ATP 报告其中多少流动被捕获。亚甲蓝可以改变其中任一个,而上述实验展示了由此产生的全部四种组合:两者都升高;呼吸升高,但 ATP 的增加仅发生在底物允许时;呼吸升高而偶联下降;组织得到保留而 ATP 保持不变。氧电极上的数字是解释的起点,而不是终点。