
אַרטיקל
מעטילען־בלוי פֿאַר DNA־ און RNA־פֿאַרבונג: געל־ און מעמבראַן־אָנווענדונגען
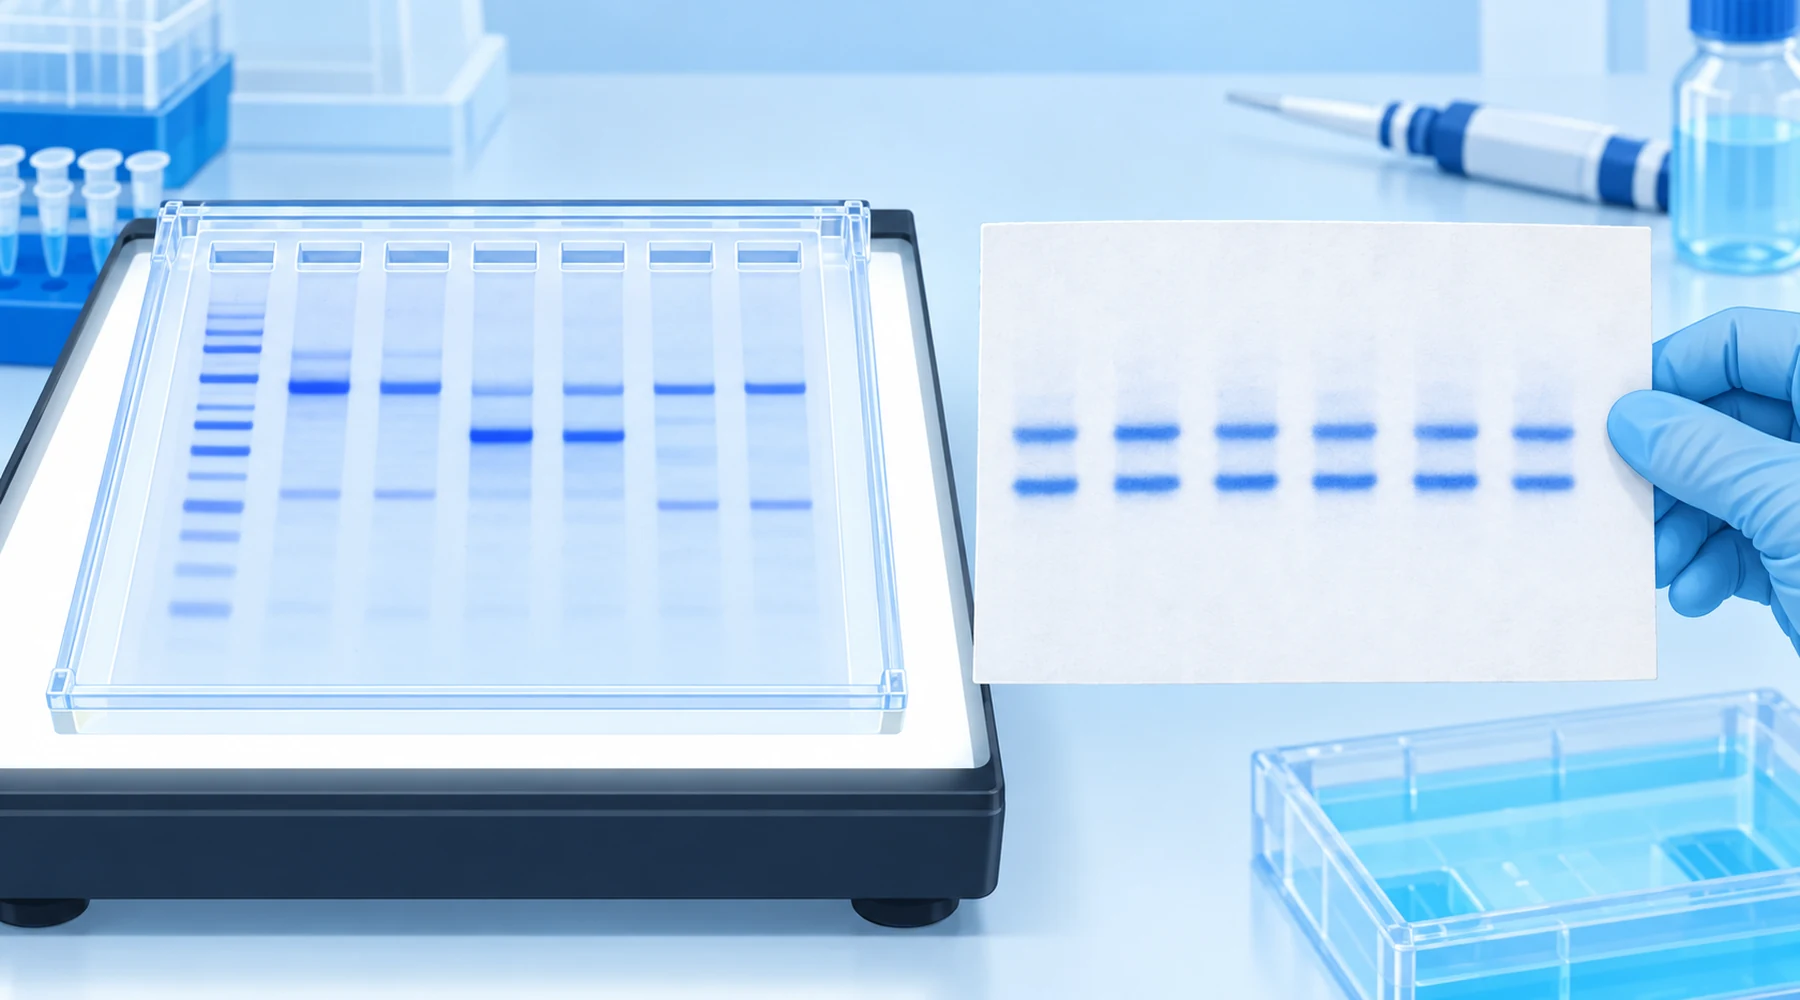
אַ סטודענט פֿירט דורך אַן אַגאַראָז־געל, פֿאַרבט אים מיט מעטילען־בלוי, און זעט גאָרנישט וווּ מע האָט דערוואַרט אַ קלאָרן באַנד. בײַם שכנותדיקן אַרבעטספּלאַץ פֿאַרבט אַ פּאָסטדאָקטאָראַנט אַ Northern־מעמבראַן מיט דער זעלבער בלויער פֿלאַש און באַקומט שאַרפֿע ריבאָסאָמאַלע באַנדן אין דרײַ מינוט. דער סטודענט קומט צום אויספֿיר אַז דער געל איז דורכגעפֿאַלן. דער געל איז נישט דורכגעפֿאַלן. די צוויי אויפֿגאַבעס זײַנען געווען אַנדערש, און דער זעלבער פֿאַרבשטאָף ענטפֿערט אויף זיי מיט אַנדערער סענסיטיוויטעט, אַן אַנדער הינטערגרונט און אַנדערע כּללים פֿאַר וואָס עס קומט דערנאָך.
DNA־פֿאַרבונג מיט מעטילען־בלוי און RNA־פֿאַרבונג מיט מעטילען־בלוי טיילן די זעלבע כעמיע, אָבער נישט דעם זעלבן צוועק. אין אַ געל ווײַזט דער פֿאַרבשטאָף וויפֿל נוקלעיִנזײַער געפֿינט זיך אינעווייניק אין אַ פּאָרעזער מאַטריץ. אויף אַ מעמבראַן ווײַזט ער צי דער טראַנספֿער האָט געאַרבעט און צי די לויפֿבאַנען זײַנען גלײַכמעסיק באַשיקט געוואָרן. ווען דער אונטערשייד איז קלאָר, ווערן אויך די פּראָטאָקאָלן, דעטעקציע־גרענעצן און קאָמפּאַטיביליטעט־גרענעצן פֿאַרשטענדלעך.
דער קורצער ענטפֿער
מעטילען־בלוי איז אַ פּלאַנאַרער קאַטיאָנישער פֿאַרבשטאָף וואָס בינדט זיך צו נוקלעיִנזײַערס ניט־קאָוואַלענט און רעווערסיבל, דורך אַ קאָמבינאַציע פֿון עלעקטראָסטאַטישער צוציִונג צו פֿאָספֿאַט, אינטערקאַלאַציע צווישן באַזע־פּאָרן און אַסאָציאַציע מיט דער קליינער פֿורע. די רעווערסיביליטעט איז פּונקט דער עיקר. מע קען פֿאַרבן די באַנדן, באַטראַכטן זיי מיט זעעוודיק ליכט, דאָקומענטירן זיי, און דערנאָך אָפּפֿאַרבן אָדער רייניקן פֿאַר קלאָנירונג, היברידיזאַציע אָדער ווידערדיקער פּראָבע־באַהאַנדלונג.
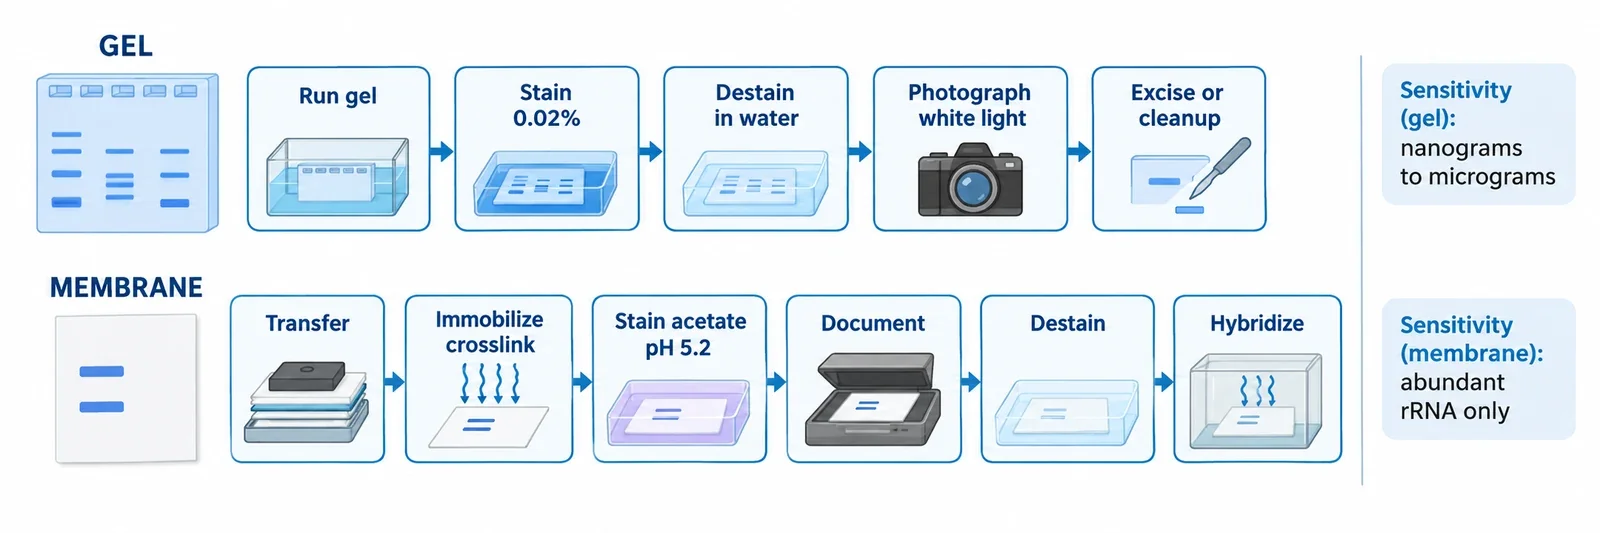
פֿאַר מעטילען־בלוי־פֿאַרבונג פֿון טאָפּלט־שטרענגיקן DNA אין אַגאַראָז־געל איז דער נאָרמאַלער גיכער רעצעפּט 0.02 פּראָצענט w/v (200 מיקראָגראַם פּער mL) אין וואַסער, בערך 15 מינוט פֿאַרבונג און דערנאָך בערך 15 מינוט אָפּפֿאַרבונג אין וואַסער, מיט באַטראַכטונג אויף אַ ווײַס־ליכט־קאַסטן. פֿאַר מעמבראַנען איז דער קלאַסישער Northern־בלאָט־רעצעפּט 0.02 ביז 0.04 פּראָצענט פֿאַרבשטאָף אין נאַטריום־אַצעטאַט לעבן pH 5.2, עטלעכע מינוט פֿאַרבונג נאָך טראַנספֿער און אימאָביליזאַציע, דערנאָך אַ וואַסער־שווענקונג און פֿולע אָפּפֿאַרבונג פֿאַר היברידיזאַציע. די סענסיטיוויטעט איז באַשיידן: צענדליקער ביז הונדערטער נאַנאָגראַם פּער געל־באַנד אונטער גוטע באַדינגונגען, און קאָנסערוואַטיווע מדריכים געבן אָן 0.5 ביז 1 מיקראָגראַם. דאָס איז מיט עטלעכע גרייס־אָרדענונגען העכער ווי בײַ עטידיום־בראָמיד און SYBR־פֿאַרבשטאָפֿן. אויף מעמבראַנען איז נישטאָ קיין נוצלעכע דעטעקציע־גרענעץ פֿאַר אַן איינציקן טראַנסקריפּט, ווײַל די פֿאַרבונג ווײַזט בעיקר שעפֿעדיקן ריבאָסאָמאַלן RNA און דעם גאַנצן אַרײַנגעלייגטן מאַטעריאַל. ניצט נישט קיין לייזונג פֿון אַ נוטריציאָנעלן ביילאַגע־פּראָדוקט פֿון לאַכאָדימדיקן האַנדל אַנשטאָט דעם פֿאַרבשטאָף אין קיין איינעם פֿון די רעצעפּטן. וואַלידירטע מעטאָדן נעמען אָן אַן אַנאַליטיש־ריינעם פֿאַרבשטאָף, דעפֿינירטע בופֿערס און RNase־פֿרײַע באַהאַנדלונג וווּ RNA איז פֿאַרמישט.
ווי די בינדונג אַרבעט, און וווּ זי קען פֿאַרפֿירן
דער נוצלעכער מאָדעל האָט דרײַ טיילן. ערשטנס, די פּאָזיטיוו געלאָדענע רינג־סיסטעם ווערט צוגעצויגן צום נעגאַטיוו געלאָדענעם פֿאָספֿאַט־רוקנביין. ספּעקטראָסקאָפּישע פֿאָרשונג געפֿינט אַז דער עלעקטראָסטאַטישער בײַטראָג דאָמינירט בײַ נידעריקער זאַלץ־קאָנצענטראַציע, בעת מאָדעלירונג און מאָלעקולאַרע דינאַמיק ווײַזן אַז אינטערקאַלאַציע און בינדונג אין דער קליינער פֿורע בלײַבן סטאַבילע אופֿנים פֿאַר טאָפּלט־שטרענגיקן DNA, ווי צונויפֿגעפֿאַסט אין אַ ספּעקטראָסקאָפּישער שטודיע פֿון מעטילען־בלוי־בינדונג צו DNA. צווייטנס, עס איז דאָ אַ געוויסע פּרעפֿערענץ פֿאַר GC: מאָדעלירונג באַגינסטיקט CpG־ און GpC־שריט, און עקספּערימענטן מעלדן אַ באַפֿערצוגטע אַסאָציאַציע מיט GC־רײַכע דופּלעקסן אין פֿאָרשונג וועגן אינטערקאַלאַציע־פּרעפֿערענצן פֿון מעטילען־בלוי, אָבער אויך AT־דופּלעקסן בינדן דעם פֿאַרבשטאָף. רוטינע פֿאַרבונג איז נישט סעקווענץ־ספּעציפֿיש. דריטנס, איין־שטרענגיקער DNA און RNA בינדן בעיקר דורך עלעקטראָסטאַטיק און סטאַקינג מיט צוטריטלעכע באַזעס און דופּלעקס־ראַיאָנען. דערפֿאַר בײַט זיך די שטאַרקייט פֿון דער פֿאַרבונג לויט לענג, סעקווענץ און צווייטיקער סטרוקטור.
פֿון דעם פֿאָלגן צוויי פּועל־יוצאס. ווײַל די בינדונג איז ניט־קאָוואַלענט, ווערט דער פֿאַרבשטאָף אַרויסגעוואַשן. פּאָליאַקרילאַמיד־באַנדן פֿאַרבלאַסן גיך, סײַדן מע פֿיקסירט זיי בכּיוון, און עס עקזיסטירט אַ באַזונדערער וואַריאַנט פֿאַר פּערמאַנענטער פֿיקסאַציע פּונקט ווײַל די נאָרמאַלע פֿאַרבונג איז צײַטווײַליק, ווי באַשריבן דורך Soto און Draper פֿאַר PAGE־געלס. ווײַל דער פֿאַרבשטאָף איז אַ פֿאָטאָסענסיטיזאַטאָר, קען לאַנגע שטאַרקע באַלײַכטונג פֿון געפֿאַרבטן DNA אין דער אָנוועזנהייט פֿון זויערשטאָף אָקסידירן גואַנין און מיט דער צײַט מאַכן איינשניטן אין די שטרענגען — אַ מעכאַניזם וואָס ווערט פּרטימדיק דערקלערט אין פֿאָרשונג וועגן גואַנין־אָקסידאַציע סענסיטיזירט דורך מעטילען־בלוי. קורצע באַטראַכטונג מיט ווײַס ליכט פֿאַרמײַדט דעם באַקאַנטן UV־שאָדן פֿון קלאַסישע עטידיום־בראָמיד־אַרבעטסגאַנגען, און דער מעלה איז ממשותדיק בײַ פּרעפּאַראַטיווער צוריקגעווינונג. זעעוודיק ליכט איז מילדער, נישט שאָדלאָז. האַלט די באַלײַכטונג קורץ ווען דער DNA וועט ווערן קלאָנירט. פֿאַר דער ברייטערער פֿאָטאָכעמיע הינטער דער וואָרענונג, זעט די צוויי וועגן אין מעטילען־בלוי־פֿאָטאָכעמיע. פֿאַר דעם רעדאָקס־פּאָר און די לאָדונג־צושטאַנדן וואָס דערקלערן פֿאַרוואָס די אָקסידירטע פֿאָרעם בינדט און די רעדוצירטע פֿאָרעם נישט, זעט די כעמיע פֿון מעטילען־בלוי: סטרוקטור און אייגנשאַפֿטן.
ערשטע אויפֿגאַבע: פֿאַרבונג אינעווייניק אין געלס
געל־פֿאַרבונג ענטפֿערט אויף איין פֿראַגע: איז אין דעם באַנד גענוג נוקלעיִנזײַער כּדי אים צו זען מיטן אויג. טאָפּלט־שטרענגיקער DNA אין אַגאַראָז איז דער בעסט־כאַראַקטעריזירטער פֿאַל. די אָריגינעלע מעטילען־בלוי־געל־מעטאָדע פֿון Flores און קאָלעגן האָט וואַלידירט דעם גיכן 0.02־פּראָצענטיקן פּראָטאָקאָל אויף 1־פּראָצענטיקן אַגאַראָז און געוויזן געלונגענע צוריקגעווינונג און קלאָנירונג דערנאָך. דער זעלבער סאַפּלייער־פּראָטאָקאָל דערשײַנט אויף דער IBI Scientific מעטילען־בלוי־פּראָדוקט־זײַט, וואָס לייגט דעם 0.04־פּראָצענטיקן מעמבראַן־רעצעפּט און דעם גיכן געל־וואַריאַנט איינס לעבן צווייטן.
פּראַקטישער אַרבעטסגאַנג:
- פֿירט דעם געל דורך ווי געוויינטלעך. פֿאַרבט נאָך עלעקטראָפֿאָרעזע, נישט בעת איר, סײַדן דער טראַנספֿער אָדער די רעסאָלוציע איז וואַלידירט געוואָרן פֿאַר אַ געענדערטער מעטאָדע.
- טונקט אַרײַן אין 0.02 פּראָצענט w/v מעטילען־בלוי אין דיסטילירט וואַסער, מיט מילדער באַוועגונג, פֿאַר בערך 15 מינוט.
- פֿאַרבּט אָפּ מיט עטלעכע וואַסער־בײַטן, בערך 15 מינוט אין גאַנצן, ביז דער מאַטריץ־הינטערגרונט ווערט שוואַכער און די באַנדן שטעקן אַרויס.
- פֿאָטאָגראַפֿירט גלײַך אויף אַ ווײַס־ליכט־באַלײַכטער.
אַגאַראָז און פּאָליאַקרילאַמיד פֿירן זיך אַנדערש. אַגאַראָז האַלט צוריק פֿאַרבשטאָף אין דער מאַטריץ, דערפֿאַר איז אָפּפֿאַרבונג דער פּאַמעלעכער שריט. דינע פּאָליאַקרילאַמיד־געלס פֿאַרבן זיך גיך, אָבער פֿאַרלירן אויך גיך דעם פֿאַרבשטאָף; דאָס העלפֿט בײַ פּרעפּאַראַטיוון אויסשנײַדן און שטערט אַרכיוו־רעקאָרדן. סינטעטישע אָליגאָנוקלעאָטידן אין פּאָליאַקרילאַמיד קען מען לאָקאַליזירן מיטן זעלבן 0.02־פּראָצענטיקן רעצעפּט אין 20 ביז 30 מינוט, מיט איבערגעחזרטע וואַסער־וואַשונגען, לויט באַפֿעסטיקטע PAGE־מעטאָדן אין נוסח פֿון Current Protocols. זייער פֿאַרדינטע וואַריאַנטן לעבן 0.0002 פּראָצענט אין פֿאַרדינטן TBE זײַנען באַשריבן געוואָרן פֿאַר פּרעפּאַראַטיווע אָליגאָס איבער עטלעכע שעה, אָבער די באַווײַז־באַזע איז שוואַכער.
דער אונטערשייד צווישן DNA און RNA איז וויכטיק. טאָפּלט־שטרענגיקער DNA גיט די שטאַרקסטע סטרוקטורירטע בינדונג. RNA און איין־שטרענגיקער DNA פֿאַרבן זיך, אָבער שוואַכער און ווייניקער פֿאָרויסזעעוודיק. פֿאַר פֿאָרמאַלדעהיד־אַגאַראָז־RNA־געלס לאָזן רובֿ לאַבאָראַטאָריעס אויס די בלויע פֿאַרבונג אין געל און טראַנספֿערירן דעם RNA ערשט אויף אַ מעמבראַן, און פֿאַרבן דאָרט. אַזוי בײַט מען אַ שוואַכן געל־סיגנאַל אויף אַ שאַרפֿערן מעמבראַן־סיגנאַל, צוזאַמען מיט אַ רעקאָרד פֿון דער באַשיקונג.
צווייטע אויפֿגאַבע: פֿאַרבונג אויף מעמבראַנען
מעמבראַן־פֿאַרבונג ענטפֿערט אויף אַן אַנדער פֿראַגע: האָט דער טראַנספֿער געאַרבעט, און זײַנען די לויפֿבאַנען פֿאַרגלײַכבאַר. די קלאַסישע אָנווענדונג איז די רעווערסיבלע Northern־בלאָט־פֿאַרבונג פֿון Herrin און Schmidt: אָריגינעל 0.04 פּראָצענט פֿאַרבשטאָף אין 50 mM נאַטריום־אַצעטאַט בײַ pH 5.0 פֿאַר 2 ביז 3 מינוט, מיט אַ וואַסער־שווענקונג, און אַראָפּנעמבאַר מיט פֿאַרדינטן SDS אין SSPE פֿאַר היברידיזאַציע.
דער ברייט געניצטער מאָדערנער וואַריאַנט גייט אַזוי:
- טראַנספֿערירט RNA אָדער דענאַטורירטן DNA אויף ניילאָן אָדער ניטראָצעלולאָז, און דערנאָך אימאָביליזירט דורך UV־קרײַצבינדונג אָדער היץ־באַהאַנדלונג, כּדי דער מוסטער זאָל נישט פֿאַרלוירן ווערן בעת דער פֿאַרבונג.
- אָפּציאָנעל, אָבער געוויינטלעך: מאַכט די מעמבראַן נאַס אין 5 פּראָצענט עסיקזײַער פֿאַר בערך 15 מינוט.
- פֿאַרבט 5 ביז 10 מינוט אין 0.02 ביז 0.04 פּראָצענט מעטילען־בלוי אין 0.3 ביז 0.5 M נאַטריום־אַצעטאַט לעבן pH 5.2.
- שווענקט און פֿאַרבּט אָפּ אין וואַסער פֿאַר 5 ביז 15 מינוט, דאָקומענטירט, און נעמט דערנאָך אַראָפּ דעם איבערגעבליבענעם פֿאַרבשטאָף פֿאַר היברידיזאַציע.
פּאָזיטיוו געלאָדענער ניילאָן דאָמינירט בײַ Northern־אַרבעט. ניטראָצעלולאָז אַרבעט אויך מיטן זעלבן עסיקזײַער־און־אַצעטאַט־אַרבעטסגאַנג. מען ניצט דאָס בילד צו באַשטעטיקן דעם טראַנספֿער, צו פֿאַרגלײַכן 28S־ און 18S־באַנדן (אָדער 23S און 16S פֿאַר באַקטעריעלן RNA), צו מאַרקירן לאַדערס און סטאַנדאַרטן, און צו האַלטן אַן אומגעפֿערן נאָרמאַליזאַציע־רעקאָרד פֿון גאַנץ RNA. פּובליקירטע Northern־מעטאָדן קוואַנטיפֿיצירן געפֿאַרבטע ריבאָסאָמאַלע באַנדן פֿאַר באַשיקונג־קאָנטראָלן, אַרײַנגערעכנט פֿאָרשונג אין מילכווירטשאַפֿט וואָס האָט געניצט מעטילען־בלוי־ריבאָסאָמאַלע באַנדן פֿאַר נאָרמאַליזאַציע. Southern־מעמבראַנען קען מען וויזואַליזירן אויפֿן זעלבן אופֿן, אָבער דער פֿאַרבשטאָף איז פיל מער באַפֿעסטיקט ווי אַ Northern־באַשיקונג־ און טראַנספֿער־קאָנטראָל. Southern־DNA ווערט דענאַטורירט פֿאַרן טראַנספֿער, דערפֿאַר קען מען נישט גלײַך איבערנעמען די געל־סענסיטיוויטעט־צאָלן.
דעטעקציע־גרענעצן און הינטערגרונט: וווּ בלוי פֿאַרלירט
דער ווײַטערדיקער פֿאַרגלײַך איז בכּיוון אומגעפֿער. די פֿאָרשטעלונג פֿון אַ פֿאַרבשטאָף ווענדט זיך אין געל־פּראָצענט, באַנד־ברייט, אָפּטיק און קאָנסעקווענטער אָפּפֿאַרבונג. באַטראַכט יעדע צאָל ווי אַ גרייס־אָרדענונג, נישט ווי אַ ספּעציפֿיקאַציע.
| פֿאַרבשטאָף און פֿאָרמאַט | אומגעפֿערע דעטעקציע פּער באַנד | באַטײַט |
|---|---|---|
| מעטילען־בלוי, dsDNA אין אַגאַראָז | 40 ביז 250 ng אָפּטימיזירט; 0.5 ביז 1 מיקראָגראַם קאָנסערוואַטיוו | גענוג גוט פֿאַר פּרעפּאַראַטיווע באַשיקונגען און לערן־געלס. שוואַך פֿאַר שפּור־באַנדן. |
| מעטילען־בלוי, קורצער ssDNA אָדער RNA אָדער אָליגאָס אין PAGE | בערך 0.1 ביז 0.5 מיקראָגראַם | אָפּהענגיק פֿון לענג און סטרוקטור. נישטאָ קיין אוניווערסאַלע גרענעץ. |
| עטידיום־בראָמיד, dsDNA־אַגאַראָז | בערך 1 ביז 10 ng | בערך פֿיר מאָל סענסיטיווער ווי אָפּטימיזירט בלוי אינעם פֿאַרגלײַך פֿון Flores. דאַרף UV. |
| SYBR Green I, dsDNA | בערך 60 pg | פֿלואָרעסצענץ־בילד־אויפֿנאַמע איז נייטיק. |
| SYBR Gold, DNA און RNA | בערך 25 pg | מער ווי צען מאָל סענסיטיווער ווי עטידיום־בראָמיד אין עטלעכע פֿאָרמאַטן. |
| זילבער־פֿאַרבונג, PAGE־נוקלעיִנזײַערס | בערך 0.3 ביז 0.9 ng; 100 pg RNA איז געמאָלדן געוואָרן אין אַן אָפּטימיזירטער בלוי־צו־זילבער־סעקווענץ | זייער סענסיטיוו, אָבער כעמיש קאָמפּליצירט און שלעכט פֿאַר צוריקגעווינונג. |
| טאָלוידין־בלוי, PAGE־RNA און אָליגאָס | אַרבעטס־קוואַנטיטעטן פֿון הונדערטער ng, בערך 250 ng דאָקומענטירט | זעעוודיק ליכט ווי בײַ מעטילען־בלוי, אָבער אָן אַ סטאַנדאַרדיזירטער גרענעץ פֿאַרגלײַכבאַר מיט SYBR־ספּעציפֿיקאַציעס. |
הינטערגרונט־קאָנטראָל באַשטימט צי דער באַשיידענער סיגנאַל איז ניצלעך. פֿרײַער פֿאַרבשטאָף האָט אַ שטאַרקע קאָליר, דערפֿאַר קומט קאָנטראַסט פֿון אַראָפּנעמען נישט־געבונדענעם פֿאַרבשטאָף אָן אָפּצורײַסן דעם געבונדענעם. אַ מער קאָנצענטרירטע פֿאַרב־לייזונג לייגט זעלטן צו סענסיטיוויטעט. זי לייגט בעיקר צו אָפּפֿאַרבונג־צײַט. פֿירט דורך אַ פֿאַרדינונג־סעריע אויף פּונקט דעם געל, דער מעמבראַן און דער קאַמערע וואָס איר ניצט, און ניצט בלויז דעם קייט וווּ די אינטעגרירטע דיכטקייט בלײַבט פּראָפּאָרציאָנעל צו דער אַרײַנגעלייגטער קוואַנטיטעט. מעטילען־בלוי דערמעגלעכט האַלב־קוואַנטיטאַטיווע באַשיקונג־נאָרמאַליזאַציע. עס איז נישט קיין קוואַנטיטאַטיווער טעסט מיט אַ הויכן דינאַמישן קייט, ווײַל מעמבראַן־קאַפּאַציטעט, טראַנספֿער־עפֿעקטיווקייט, זעטיקונג און אָפּפֿאַרבונג בײַטן זיך פֿון איין לויפֿבאַן צו דער צווייטער.
קאָמפּאַטיביליטעט־גרענעצן: וואָס בלײַבט ניצלעך נאָך דער פֿאַרבונג
קלאָנירונג נאָך בלויער פֿאַרבונג איז דעמאָנסטרירט געוואָרן. Flores און קאָלעגן האָבן אויסגעשניטן געפֿאַרבטע אַגאַראָז־באַנדן, צוריקגעוווּנען דעם DNA, דורכגעפֿירט ליגאַציע און טראַנספֿאָרמאַציע, און געמאָלדן בעסערע קלאָנירונג ווי נאָך עטידיום־בראָמיד מיט UV. די מסתּמאדיקע סיבה איז ווייניקער פֿאָטאָשאָדן, נישט קיין נוץ פֿון דעם פֿאַרבשטאָף גופֿא. האַלט די אויסשטעלונג צו ווײַס ליכט קורץ און רייניקט דעם צוריקגעוווּנענעם DNA מיט אַ געוויינטלעכן געל־עקסטראַקציע־רייניקונגספּראָצעס.
פֿאַר PCR און סעקווענצירונג איז די באַווײַז־באַזע דינער. איבערגעבליבענער פֿאַרבשטאָף בינדט נוקלעיִנזײַערס, דערפֿאַר פֿאַרבּט אָפּ און רייניקט פֿאַר ענזימאַטישע שריט. מע דערוואַרט אַז געהעריק גערייניקטער DNA פֿון אַ בלויעם געל וועט אַרבעטן, אָבער די טאָלעראַנץ פֿאַר דירעקט איבערגעטראָגענעם פֿאַרבשטאָף בײַ פֿאַרשיידענע פּאָלימעראַזעס און סעקווענצירונג־כעמיעס איז נישט גוט קוואַנטיפֿיצירט. נעמט עס נישט אָן אָן קאָנטראָל.
בלאָט־היברידיזאַציע איז קאָמפּאַטיבל ווען דער סדר ווערט שטרענג געהאַלטן: טראַנספֿערירן, אימאָביליזירן, פֿאַרבן, דאָקומענטירן, אָפּפֿאַרבן, היברידיזירן. די סעקווענץ איז דער פּלאַן פֿון Herrin און Schmidt. פֿאַרבונג פֿאַרן טראַנספֿער, אָדער אויסלאָזן די אָפּפֿאַרבונג, איז אַן אַנדער מעטאָדע און דאַרף אַן אייגענע וואַלידאַציע. נאָך אַראָפּנעמען דעם פֿאַרבשטאָף גייען נאָרמאַלע פּראָבע־אַראָפּנעמונג און ווידערדיקע פּראָבע־באַהאַנדלונג ווײַטער ווי געוויינטלעך. פֿאַר פֿאַרבונג אויף צעל־ניוואָ מיט דער זעלבער פֿאַרבשטאָף־פֿאַמיליע, און פֿאַרוואָס די לאָגיק פֿון אַ פֿיקסירטן שיכט־פּרעפּאַראַט קען מען נישט איבערטראָגן אויף לעבעדיקע צעל־מעטאָדן, זעט דעם מיקראָסקאָפּיע־פֿאַרבונג־אַטלאַס.
באַנד־אויסשנײַדן אַרבעט פֿאַר פּרעפּאַראַטיוון אַגאַראָז און פֿאַר PAGE־אָליגאָס לאָקאַליזירט מיט בלוי, בתּנאי אַז מע פֿאַרמײַדט דעם פּערמאַנענטן פֿיקסאַציע־וואַריאַנט. עלעקטראָעלוציע נאָך אָפּפֿאַרבונג איז כעמיש מסתּמאדיק פֿאַר אַ רעווערסיבלן בינדער, אָבער קאָנטראָלירטע דאַטן וועגן דער צוריקגעוווּנענער קוואַנטיטעט ספּעציפֿיש פֿאַר מעטילען־בלוי זײַנען קנאַפּ. באַזאַלצט אָפּ אָדער פּרעציפּיטירט נאָך עלוציע.
פּראָבלעמען וואָס חזרן זיך איבער
בלאַסע געל־באַנדן מיינען געוויינטלעך צו ווייניק מאַסע פֿאַר אַ קאָלאָרימעטרישער פֿאַרבונג, ספּעציעל בײַ קורצע איין־שטרענגיקע אָדער RNA־צילן. לייגט אַרײַן מער, ניצט פֿרישן פֿאַרבשטאָף, פֿאַרלענגערט די פֿאַרבונג פֿאַרן פֿאַרגרעסערן די קאָנצענטראַציע, און שטעלט אָפּ די אָפּפֿאַרבונג פֿריִער. אַ דורכאויס בלויער געל אָן קאָנטראַסט מיינט געוויינטלעך איבערפֿאַרבונג אָדער צו ווייניק וואַסער־בײַטן. פֿאַרבלאַסנדיקע PAGE־באַנדן זײַנען דערוואַרטע כעמיע, נישט קיין דורכגעפֿאַלענע פֿאַרבונג. פֿאָטאָגראַפֿירט גיך. אַן אומגלײַכמעסיקער מעמבראַן־הינטערגרונט ווײַזט אויף פֿאַלטן, בלאָזן, פֿינגעראָפּדרוקן, אומגלײַכמעסיקער באַוועגונג אָדער פֿלעקיקן טראַנספֿער. לייענט עס נישט ווי אומגלײַכע באַשיקונג אָן אַ היברידיזאַציע־קאָנטראָל. אַ פֿאַרשמירט שוואַכער ריבאָסאָמאַלער מוסטער קען מיינען דערנידערונג, אָבער אויך אומפֿולשטענדיקן טראַנספֿער, צו ווייניק גאַנץ RNA (טיפּישע לויפֿבאַנען טראָגן עטלעכע ביז צענדליקער מיקראָגראַם), אָדער איבעריקע אָפּפֿאַרבונג. דער פֿאַרבשטאָף ווײַזט שעפֿעדיקן ריבאָסאָמאַלן RNA. ער ווײַזט נישט אַ ספּעציפֿישן טראַנסקריפּט. די אַרבעט געהערט דער פּראָבע.
זיכערקייט און באַהאַנדלונג אָן איבערטריבענע טענות
מעטילען־בלוי איז פּשוטער צו באַהאַנדלען ווי עטידיום־בראָמיד, אָבער ער איז נישט שאָדלאָז. אַן איצטיקער MilliporeSigma זיכערקייט־דאַטן־בלאַט קלאַסיפֿיצירט דעם פֿאַרבשטאָף ווי אַקוטע מינדלעכע טאָקסיסיטעט, קאַטעגאָריע 4 — שעדלעך אויב אײַנגעשלונגען — מיט באַזײַטיקונג דורך אַן אָנגענומענעם אָפּפֿאַל־וועג לויט דעם Sigma-Aldrich מעטילען־בלוי SDS. עטידיום־בראָמיד טראָגט שטאַרקערע גענאָטאָקסיסיטעט־וואָרענונגען, אַרײַנגערעכנט פֿאַרדעכטיקטע ווירקונגען אויף קײַם־צעלן אין זײַן Sigma-Aldrich עטידיום־בראָמיד SDS, און זײַנע געלס און לייזונגען ווערן געוויינטלעך אָפּגעזונדערט ווי געפֿערלעכער כעמישער אָפּפֿאַל, ווי באַמערקט אינעם Thermo Fisher נוקלעיִנזײַער־פֿאַרבשטאָף־מדריך. פֿאָלגט דעם SDS און די אינסטיטוציאָנעלע כּללים פֿאַר ביידע. האַלט טרוקענעם פֿאַרבשטאָף גוט פֿאַרמאַכט און טרוקן, ניצט די אַרבעטס־פֿאַרב־לייזונג איבער בלויז ווי דער פּראָטאָקאָל דערלויבט, האַלט געפֿאַרבטע מעמבראַנען טרוקן צווישן פֿילטער־בלעטער, און פֿאָטאָגראַפֿירט געלס איידער די באַנדן צעשפּרייטן זיך דורך דיפֿוזיע.
געדענקט דעם זאַץ בײַם לאַבאָראַטאָריע־טיש. געלס טעסטן זעעוודיקייט בײַ הויכער באַשיקונג אונטער ווײַס ליכט. מעמבראַנען טעסטן טראַנספֿער און באַשיקונג איידער די פּראָבע טוט די סענסיטיווע אַרבעט. איין פֿאַרבשטאָף דינט ביידע, מיט באַשיידענער סענסיטיוויטעט, רעווערסיבלער בינדונג און אַ שטרענגן סדר פֿון אָפּעראַציעס.