
Мәкалә
Метилен зәңгәре һәм NAD+/NADH: күзәнәкнең редокс балансын аңлату
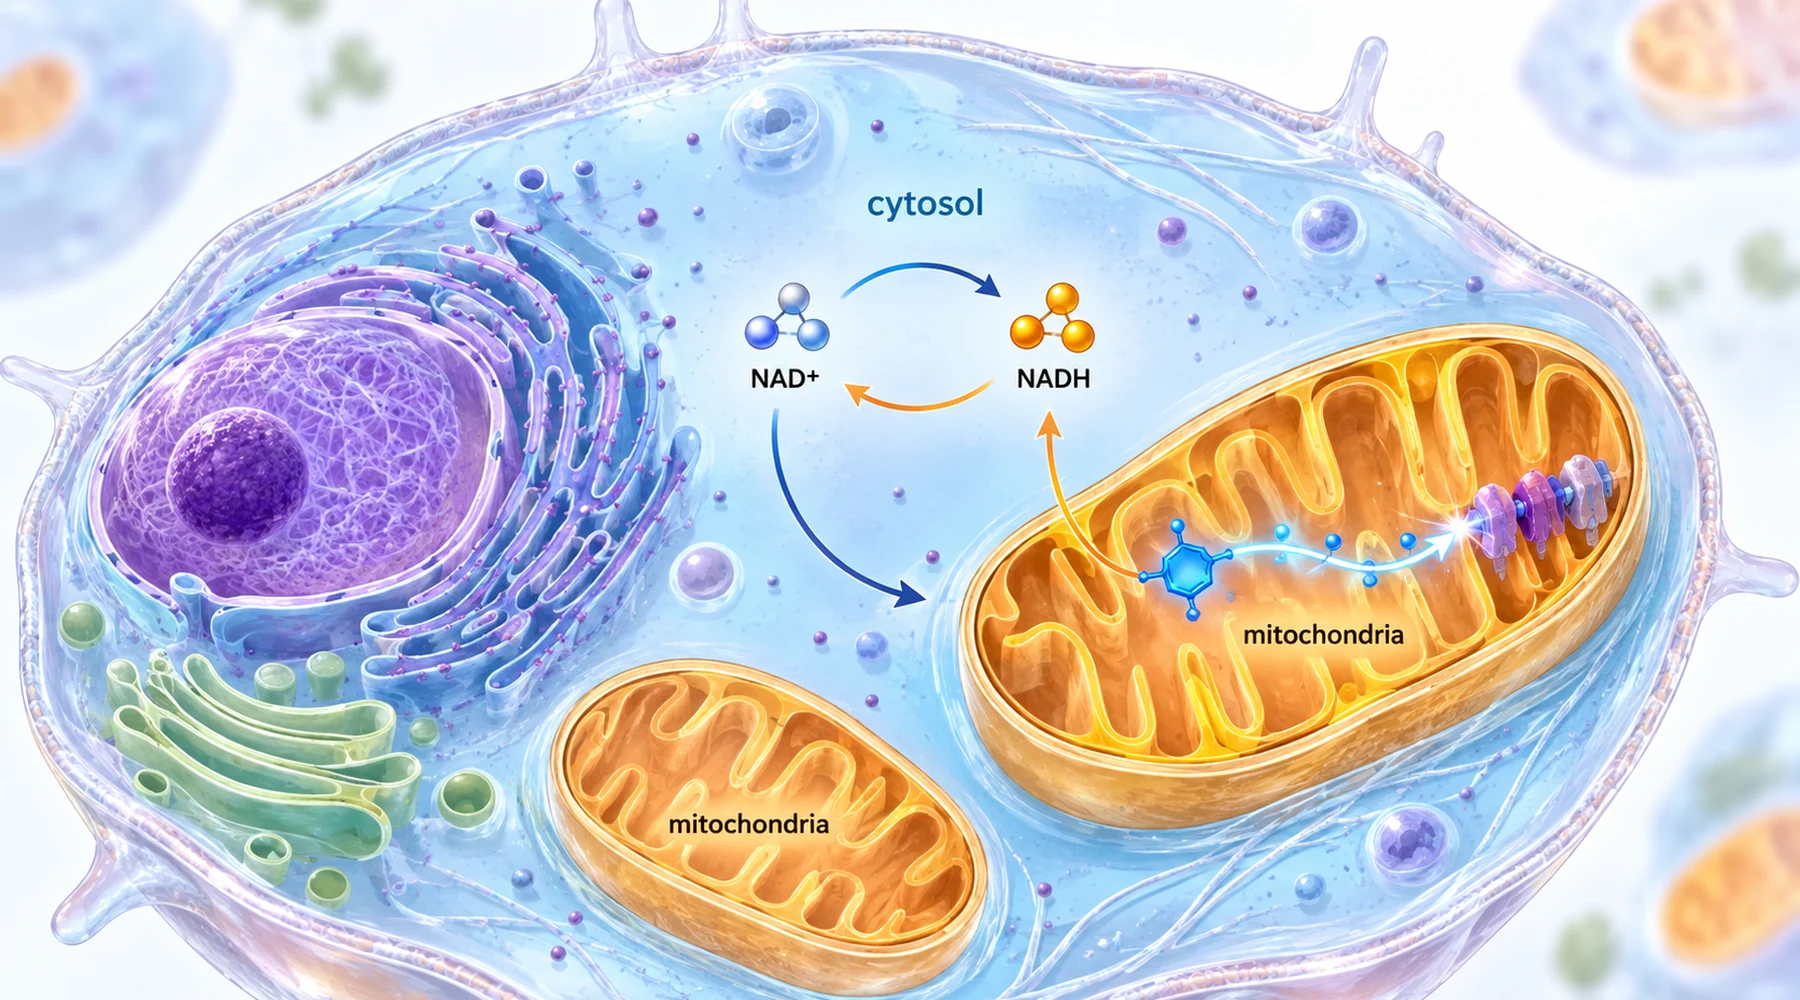
Метилен зәңгәре һәм NAD+ турындагы хәбәрләрдә еш кына өч төрле раслау бергә кушыла. Беренчесе — NAD+ ның NADH ка нисбәте оксидлашкан халәт ягына күчкән. Икенчесе — күзәнәктә гомуми NAD күләме арткан. Өченчесе — энергия җитештерү торгызылган. Болар матдәләр алмашын торгызу турында бер үк хикәя кебек яңгырый. Тәҗрибәләрдә исә алар даими рәвештә бер-берсеннән аерыла, һәм иң кызыклы нәтиҗәләр нәкъ менә аларның бер-берсенә туры килмәгән очракларында күренә.
Бу буталышны аңлап була, чөнки өч күрсәткеч өчен дә бер үк төшенчәләр кулланыла. NAD+ метаболик реакцияләрдә электроннарны кабул итеп, NADH ка әйләнә, аннары митохондрияләр I комплекста NADH ны яңадан NAD+ ка оксидлаштыра һәм бүленеп чыккан энергияне ATP синтезы өчен куллана. Бу электрон юлы турында тулырак митохондрияләрдә электроннар ташылуын аңлаткан мәкаләдә, ә энергия ягы турында ATP һәм энергия алмашы мәкаләсендә язылган. Әмма нисбәт белән запас — төрле нәрсәләр. Нисбәт булган ташучы молекулаларның йөкләнгән һәм буш халәтләр арасында ничек бүленүен күрсәтә. Запас исә андый молекулаларның гомумән күпме булуын күрсәтә. Запас үзгәрмичә нисбәт яхшыруы яңа молекулалар җитештерүне түгел, ә яңадан бүленүне аңлата.
Ике бүлек, ике индикатор
Ялгыш аңлауга китерә торган тагын бер аерма бар. Цитозольдәге һәм митохондрияләрдәге NAD запаслары күбесенчә митохондриянең эчке мембранасы белән аерылган, шуңа күрә һәр бүлек мөстәкыйль рәвештә чагыштырмача оксидлашкан яки кайтарылган халәттә була ала. Бөтен күзәнәк өчен бер генә сан бу аерманы яшерә.

Бавыр тикшеренүләре бүлекләр арасындагы аерманы үлчәргә мөмкинлек бирде. Лактат белән пируват арасындагы тигезләнеш цитозольдәге NAD+ ның NADH ка нисбәтен күрсәтә, чөнки лактатдегидрогеназа бу ике парны бер-берсенә бәйли. 3-гидроксибутират белән ацетоацетат арасындагы тигезләнеш шундый ук бәйләнеш аша митохондрияләрдәге нисбәтне күрсәтә. Күселәргә озак вакыт этанол биреп тукландыру тикшеренүендәге кебек, ике пар да тиз туңдырып фиксацияләнгән тукымадан үлчәнгәндә, бер бавырдан ике редокс күрсәткече алына; бер үк кушылма аларның берсен икенчесенә караганда көчлерәк үзгәртә ала.
Метилен зәңгәре бу системада ягулык түгел, ә электрон ташучы буларак эшли. Ул I комплекс янында NADH тан электроннарны кабул итеп кайтарыла, аннары аларны юлның алдагы өлешендәге цитохром c кебек ташучыларга тапшыра. Нәтиҗәдә NADH гадәти юлны тулысынча үтмичә оксидлаша. Бу механизм аңа кызыксынуны да, аның мөмкинлекләре чиген дә аңлата: ул кайтарылган халәткә бәйле тоткарлыкны җиңеләйтә ала, ләкин зарарланган комплексны яңадан төземи һәм яңа NAD молекулаларын синтезламый.
Биш тикшеренү, нәтиҗәләр аерылуының бер үрнәге
Түбәндәге таблица биш тикшеренүне тукыма, редокс күрсәткече, энергия күрсәткече һәм чынлыкта нәрсә торгызылуы буенча чагыштыра. Соңгы ике багананы бергә укыгыз. Мәкаләнең төп мәгънәсе — шул ике багананы чагыштыруда.
| Тукыма һәм зарарлаучы тәэсир | Метилен зәңгәре кулланылгандагы редокс күрсәткече | Энергия һәм сигнал тапшыру күрсәткече | Функциональ нәтиҗә |
|---|---|---|---|
| Күсе бавыры, озак вакытлы этаноллы рацион | Цитозоль һәм митохондрияләрдәге NAD+/NADH нисбәтләре күбесенчә торгызылган; глицерол 3-фосфат нормальләшкән | Этанол да, тәэсир итү дә ATP ны үзгәртмәгән; соңгы вакыт ноктасында буягыч белән ATP бераз кимегән | Майлы инфильтрация үзгәрмәгән; липидлар һәм триацилглицерол югары дәрәҗәдә калган |
| Гепатоцитлар һәм майга бай рациондагы тычкан бавыры | Күзәнәкләрдә һәм бавырда NAD+/NADH нисбәте һәм NAD+ күләме арткан | SIRT1 арткан, PGC-1alpha деацетилләшкән, митохондрия ДНКсы һәм кислород куллану арткан, AMPK SIRT1 гә бәйле рәвештә активлашкан | Бавырда май туплану һәм стеатогепатит кимегән |
| Диабетлы күсе йөрәге | Аерып алынган митохондрияләрдә субстрат оксидлашканда NADH/NAD+ нисбәте кимегән | SIRT3 активлыгы арткан; 34 аксымның 83 урынында лизин ацетилләшүе кимегән | Йөрәк күләмнәре һәм кан чыгару фракциясе яхшырган; I комплексның үзендәге кимчелек төзәтелмәгән |
| AIF җитешмәгән тычканның күз челтәр катлавы һәм ротенон белән эшкәртелгән фоторецептор күзәнәкләре | Күзәнәкләрдә NADH/NAD+ нисбәте нормальләшкән; оксидлашу стрессы кимегән | Күзәнәкләрдә ATP җитешмәү төзәтелмәгән; митохондрия стресс юлларының активлыгы кимегән | Челтәр катлау калынлыгы һәм фоторецептор маркерлары сакланган; күзәнәкләрнең исән калуы яхшырган |
| Кеше һәм күсенең Ахилл сеңере, оксидлаштыручы һәм коллагеназа белән зарарлау | NAD+ балансы һәм гомуми NAD ның химик халәте контроль дәрәҗәгә таба торгызылган | Торгызылу булган очракларда ATP арткан һәм ROS кимегән | I комплекс турыдан-туры блокланган очрактан тыш, матрикс маркерлары яхшырган; блоклау вакытында химик күрсәткечләр үзгәргән, әмма тукыма яхшырмаган |
Редокс балансын төзәтү тукыманы торгызмаган очраклар
Бу төркемдәге иң иске тикшеренү иң ачык кисәтү булып кала. Энергиянең 36 процентын этанолдан алган күселәрдә, ике индикатор пары аша үлчәнгәнчә, цитозоль һәм митохондрияләрдәге NAD+/NADH нисбәтләре кимегән; рационда көненә һәр kg авырлыкка якынча 42 mg метилен зәңгәре булу бу үзгәрешләрне күбесенчә булдырмаган. Әмма соңгы вакыт ноктасына бавырдагы триацилглицерол, буягыч булса да, булмаса да, якынча өч тапкыр арткан, ә гистологиядә өлешчекләрнең үзәкләре тирәсендә бер үк май туплануы күренгән. Авторлар уңайсыз нәтиҗәне турыдан-туры әйткән: этанол оксидлашуына ияргән редокс үзгәреше үзеннән-үзе бавырда май туплануны китереп чыгармый. Төзәтелгән нисбәтне төзәтелгән орган дип кабул иткән укучы бу мәкаләне дөрес җиткермәс иде. Тулы тәҗрибә схемасы, шул исәптән бер үк күләмдә азык алган контроль төркемнәр һәм исерү иң югары дәрәҗәгә җиткәндә төн уртасында үрнәкләр алу, этанолның бавырга тәэсирен тикшерүдә тасвирланган.
Моны майга бай рациондагы бавыр тикшеренүе белән чагыштырыгыз: анда шундый ук нисбәт үзгәреше тукыманың чын яхшыруы белән туры килгән. Гепатоцитларда һәм авыз аша бирелгәннән соң тычкан бавырында метилен зәңгәре NAD+/NADH нисбәтен арттырган, ә сигнал чылбыры адым саен күзәтелгән: SIRT1 арткан, PGC-1alpha деацетилләшкән, митохондрия биогенезы маркерлары һәм кислород куллану арткан, аннары AMPK, CPT-1 һәм PPARalpha эшкә кушылган; AMPK активлашуының SIRT1 гә бәйле булуы күрсәтелгән. Майга бай рациондагы тычканнарның бавырында азрак май тупланган. Тәкъдим ителгән аңлатма буенча, бу очракта редокс үзгәреше химик балансны гына төзәтмәгән, ә геннарны көйләү юлын эшкә җибәргән; бу SIRT1 һәм AMPK ның бавырдагы ролен тикшерүдә җентекләп тасвирлана. Үлчәүләр этанол тикшеренүендәге кебек үк төргә карый, әмма тукыма буенча нәтиҗә капма-каршы. Аерма нисбәтнең үзендә генә түгел, ә аннан соң эшли торган юлда.
Йөрәк һәм күзнең челтәр катлавы: сиртуиннар, ацетилләшү һәм ATP торгызылмыйча саклану
Диабетлы йөрәк тикшеренүе редокс үзгәрешен башка сиртуин аша аксым ацетилләшүенә бәйли. Диабетлы митохондрияләрдә метаболик ферментларның лизин ацетилләшүе артык була; бу субстратлар арасында күчү сыгылмалылыгының кимүе белән бәйле. Көненә һәр kg авырлыкка 10 mg метилен зәңгәре кулланылган; аерып алынган митохондрияләрдә 6 дан 18 micromolar га кадәр диапазонда ул NADH оксидлашуын дозага бәйле рәвештә җиңеләйткән, SIRT3 активлыгын арттырган һәм ацетилләшүне киң күләмдә киметкән. Шул ук вакытта йөрәк күләмнәре һәм кан чыгару фракциясе яхшырган, гәрчә төп I комплекс бозылуы сакланса да. Мәкаләдә башка әдәбияттагы дозага бәйле үзенчәлек ачык әйтелә: түбән концентрацияләр кайтаручы электрон ташу ролен өстен итә, ә югарырак концентрацияләр электроннарны нәтиҗәсез юлларга юнәлтә ала, шуңа күрә тәэсир монотон түгел, ә горметик. Протеомик күзәтү һәм йөрәк үлчәүләре диабетлы йөрәктә ацетилләшүне тикшерүдә китерелгән. Моның нигезендәге оксидлашу стрессы карашы оксидлашу стрессы һәм ROS ны контрольдә тоту темасына карый.
Күзнең челтәр катлавын тикшерү бу аерылуны тагын да ачыграк күрсәтә. AIF җитешмәгән һәм I комплекс җыелуында кимчелек булган Harlequin тычканнарында метилен зәңгәре челтәр катлау калынлыгын, фоторецепторларның тышкы сегментларын, таякчыклар, колбачалар, Мюллер һәм ганглиоз күзәнәкләр маркерларын саклаган. Ротенон белән эшкәртелгән 661W фоторецептор күзәнәкләрендә буягыч 15 micromolar концентрациясендә NADH ның NAD+ ка нисбәтен нормальләштергән һәм реактив кислород төрләрен киметкән, әмма исән калуны яхшырткан концентрацияләрдә ATP түбән булып калган. Төзелеш һәм исән калу энергия торгызылмыйча сакланган; шул ук вакытта митохондрияләрдә дөрес җыелмаган аксымнарга җавап һәм митофагия активлыгы кимегән. Бу нәтиҗә буягычны энергияне торгызучы түгел, ә кайтарылу һәм оксидлашу стрессын җиңеләйтүче итеп карарга нигез бирә; ул челтәр катлау фоторецепторларын саклау тикшеренүендә документлаштырылган.
Сеңер: химик күрсәткечләр үзгәргән, ә тукыма яхшырмаган тәҗрибә
Ахилл сеңере турындагы эш бер мәкалә эчендә ике төр нәтиҗәне дә үз эченә ала, һәм аны җентекләп укырга кирәк. Һәр тәҗрибә тармагы буенча тулы анализ 2026 елгы Ахилл тендинопатиясе анализында бирелгән. Чирле сеңердә NAD+ кимүе, NAD+ ның NADH ка түбән нисбәте, I комплекс маркерларының зәгыйфьлеге, түбән ATP һәм коллаген төзелешенең бозылуы күзәтелгән. Метилен зәңгәре күсе үрнәкләрендә, кеше эксплантларында һәм күзәнәк препаратларында NAD ның химик халәтен һәм ATP ны торгызган, матрикс маркерларын яхшырткан.
Аннары ике төрле үзгәртү кертелгән. I комплекс ротенон белән блокланганда, буягыч NAD+ ның химик халәтен һәм ATP белән бәйле күрсәткечләрне саклаган, ләкин оксидлаштыручы йөкләнешне җиңеләйтә, коллаген балансын торгыза яки яшәү сәләтен саклый алмаган. AIF экспрессиясе киметелгәндә, I комплекс механизмы фармакологик рәвештә блокланмаган, ә җитәрлек төзелмәгән булган; бу очракта буягыч күп күрсәткечләрне торгызган: NAD балансын, оксидлашу стрессын, мембрана потенциалын һәм коллаген маркерларын. Нәтиҗә төгәл. I комплекс блокланган килеш тә NAD күрсәткечен яхшырак дәрәҗәдә тотып була, әмма бу препаратта тукыманың торгызылуы эшли алырлык I комплекс юлына бәйле булган. Бу очракта нисбәт үзгәреше кирәкле, ләкин җитәрлек булмаган шарт; бу фикер сеңернең редокс тикшеренүендә тулырак үстерелә.
Киләсе редокс раславын ничек укырга
Өч тикшерү соравы күпчелек ялгыш аңлауларны булдырмаска ярдәм итә. Беренчедән, нисбәтнең кайсы бүлеккә каравын һәм аны кайсы индикатор пары биргәнен сорагыз. Цитозольдәге лактат белән пируват нәтиҗәсе митохондрия матриксы турында турыдан-туры берни дә әйтми. Икенчедән, мәкаләдә нисбәт үзгәреше, гомуми запас артуы яки ATP торгызылуы хәбәр ителәме — шуны сорагыз һәм һәркайсын аерым нәтиҗә итеп карагыз. Өченчедән, нәрсәнең бозылган килеш калуын сорагыз: төзәтелмәгән май туплануы, I комплексның төзәтелмәгән кимчелеге яки төзәтелмәгән ATP җитешмәве бу мәкаләләрдә чын редокс яхшыруы белән янәшә очрый.
Боларның берсе дә дозалау кулланмасы түгел. Биш тикшеренүнең барысы да хайваннарда, күзәнәкләрдә яки тукыма препаратларында контрольдә тотылган зарарлаучы тәэсирләр белән үткәрелгән: сыек этаноллы рационнар, стрептозотоцин белән китереп чыгарылган диабет, I комплексның генетик кимчелекләре, ротенон, пероксид, коллагеназа. Лаборатория савытларындагы концентрацияләрне гади генә карап авыз аша кабул итү дозаларына күчереп булмый, һәм бу мәкаләләрдә бер генә кеше дә редокс балансы өчен метилен зәңгәре кабул итмәгән. Редокс фармакологиясе һәм дозалау өчен уртак нәтиҗә теләсә нинди протоколдан таррак, әмма файдалырак: метилен зәңгәре NADH ны оксидлаштыра һәм үлчәнгән нисбәтне үзгәртә, кайбер тукымаларда сиртуиннар бу үзгәрешне деацетилләшүгә һәм метаболик яңадан программалашуга әверелдерә, ә тукыманың моңа иярү-иярмәве буягыч алыштыра алмаган механизмнарга бәйле.