
Мәкалә
ДНК һәм РНКны буяу өчен метилен зәңгәре: гельләрдә һәм мембраналарда куллану
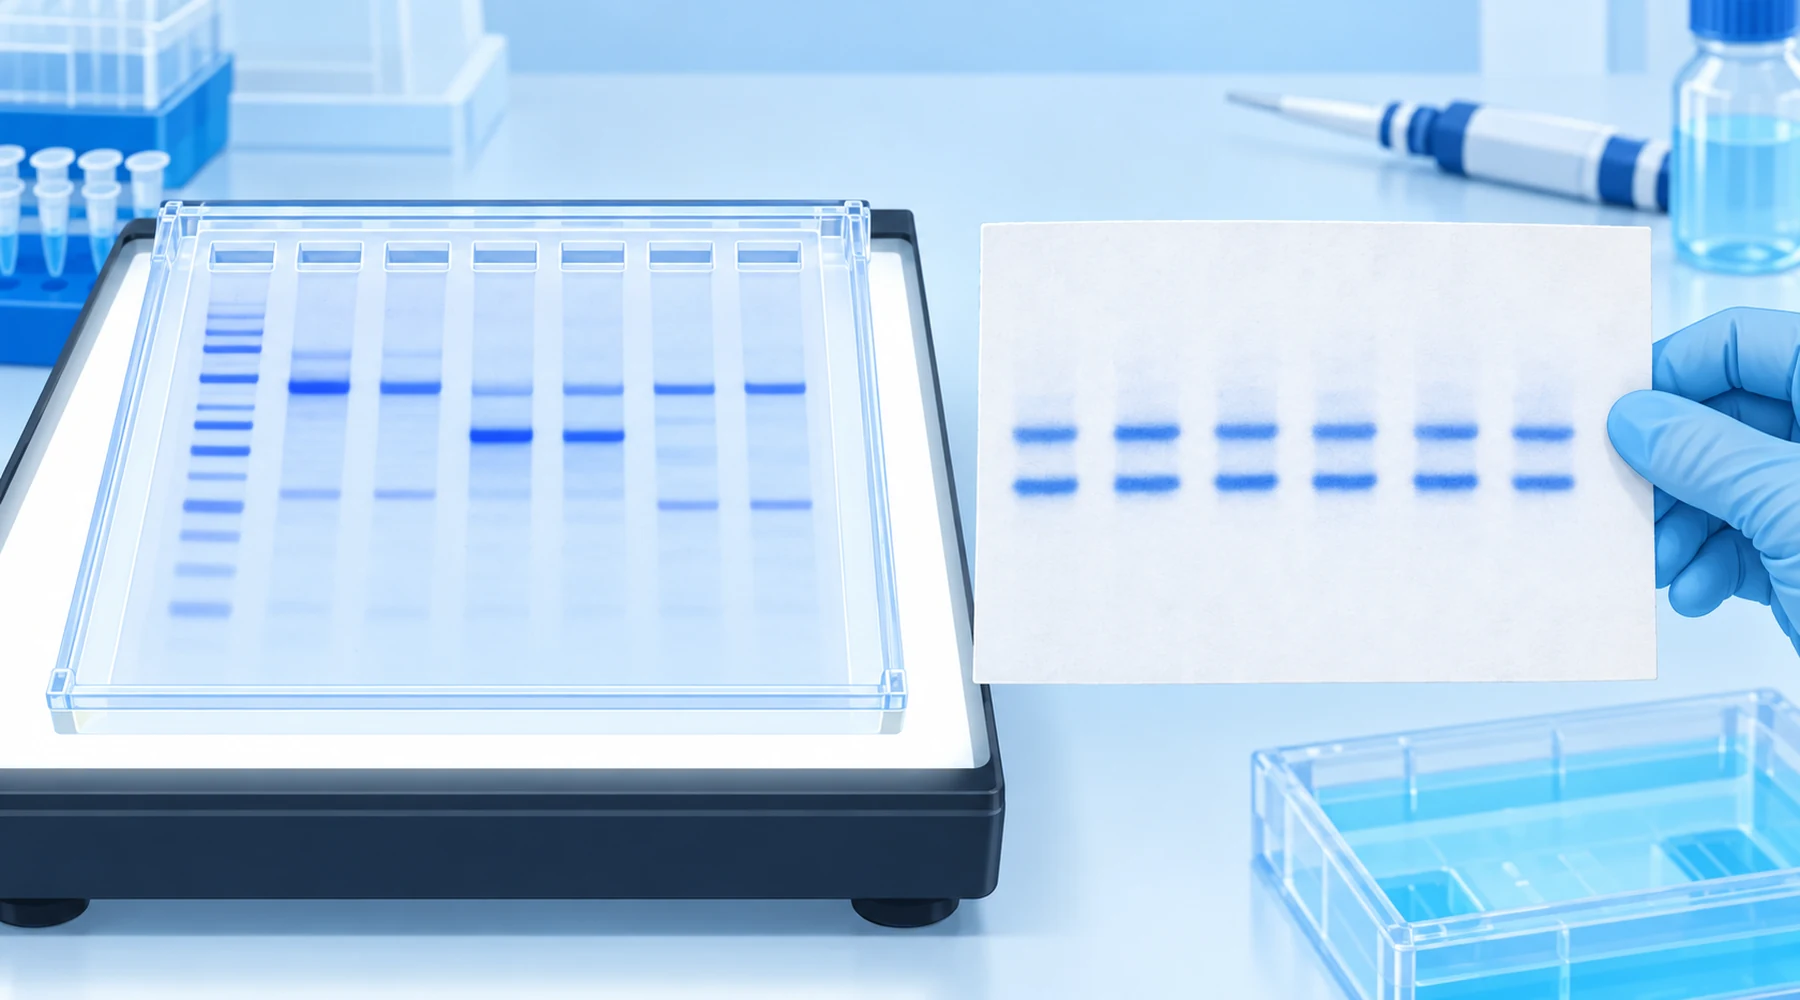
Студент агароза гелендә электрофорез үткәрә, аны метилен зәңгәре белән буйый, ләкин ачык полоса көтелгән урында бернәрсә дә күрми. Күрше эш урынында постдок шул ук зәңгәр сыекчалы шешәдән файдаланып, Northern мембранасын буйый һәм өч минут эчендә ачык рибосомаль полосалар ала. Студент гель белән тәҗрибә уңышсыз булды дигән нәтиҗәгә килә. Әмма гель белән тәҗрибә уңышсыз булмаган. Бу ике эшнең максатлары төрле булган, һәм бер үк буягыч аларда төрле сизгерлек, төрле фон һәм алдагы эш өчен төрле кагыйдәләр белән нәтиҗә бирә.
ДНКны һәм РНКны метилен зәңгәре белән буяуның химиясе бер үк, әмма максаты төрле. Гельдә буягыч күзәнәкле матрица эчендә күпме нуклеин кислотасы барлыгын күрсәтә. Мембранада ул күчерүнең уңышлы булуын һәм юлларга үрнәкләрнең тигез күләмдә салынуын күрсәтә. Бу аерма аңлашылгач, протоколлар, ачыклау чикләре һәм ярашлылык чикләре дә үз урынына баса.
Кыска җавап
Метилен зәңгәре — нуклеин кислоталары белән ковалент булмаган һәм кире кайтарылучан рәвештә бәйләнүче яссы катион буягыч. Бу бәйләнеш фосфатка электростатик тартылу, нигез парлары арасына интеркаляция һәм кече улак белән бәйләнеш кушылмасы аша барлыкка килә. Нәкъ шул кире кайтарылучанлык мөһим. Полосаларны буяп, күренә торган яктылыкта күзәтеп, теркәп була; аннары клонлау, гибридлаштыру яки зонд белән кабат тикшерү өчен буягычны юдырып бетерергә яки үрнәкне чистартырга мөмкин.
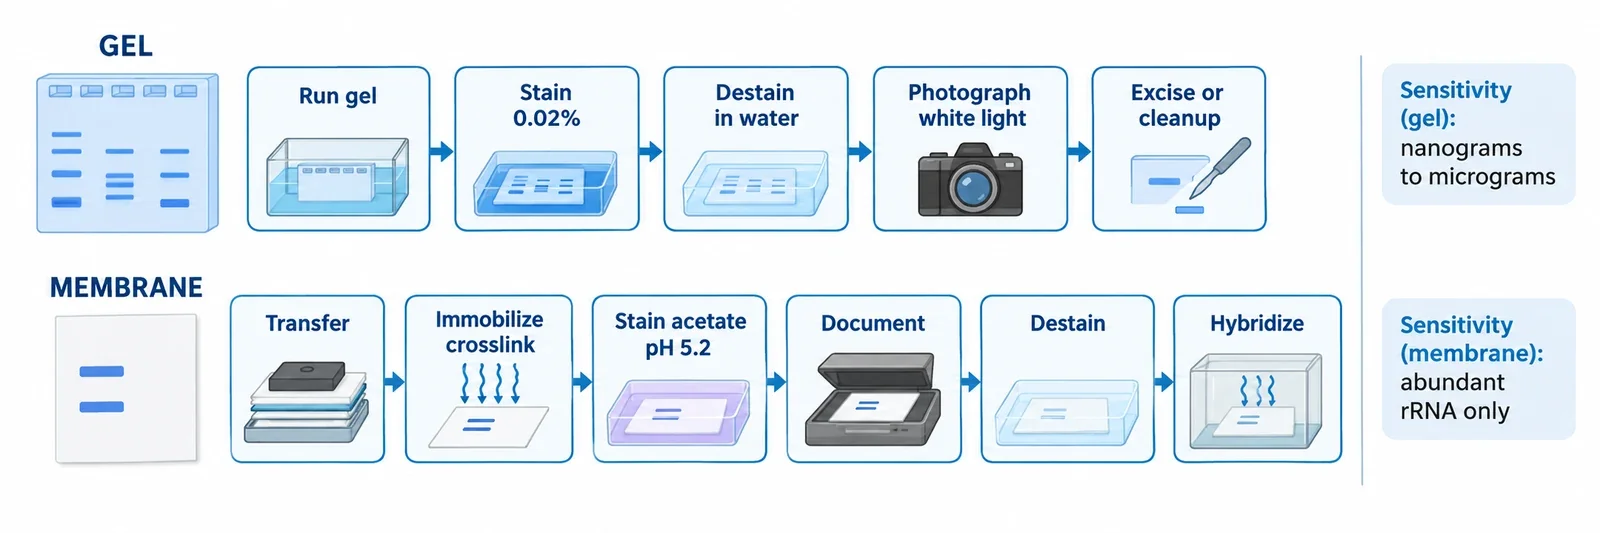
Ике чылбырлы ДНКны агароза гелендә метилен зәңгәре белән буяу өчен стандарт тиз рецепт — судагы 0.02 процент w/v (бер mLга 200 микрограмм): якынча 15 минут буяу һәм аннан соң якынча 15 минут суда буягычны юдыру; нәтиҗәне ак яктылыклы карау җайланмасында күзәтәләр. Мембраналар өчен классик Northern блот рецепты — pH 5.2 тирәсендә натрий ацетатындагы 0.02–0.04 процент буягыч: күчерү һәм иммобилизациядән соң берничә минут буяу, аннары су белән чайкау һәм гибридлаштыру алдыннан буягычны тулысынча юдырып бетерү. Сизгерлек уртача: яхшы шартларда бер гель полосасына дистәләрдән йөзләрчә нанограммга кадәр, ә сакчылрак күрсәтмәләрдә 0.5–1 микрограмм күрсәтелә. Бу — этидий бромиды һәм SYBR буягычлары белән чагыштырганда берничә зурлык тәртибенә күбрәк масса. Мембраналарда аерым транскрипт өчен бердәм файдалы ачыклау чиге юк, чөнки буяу нигездә күп күләмдәге рибосомаль РНКны һәм салынган материалның гомуми күләмен күрсәтә. Ике рецептның берсендә дә ваклап сатыла торган өстәмә чара эремәсен кулланмагыз. Тикшереп расланган ысуллар аналитик чисталыктагы буягычны, төгәл билгеләнгән буферларны һәм РНК белән эшләгәндә RNase булмаган шартларны күздә тота.
Бәйләнү ничек эшли һәм кайда ялгыш нәтиҗәгә китерә
Файдалы модель өч өлештән тора. Беренчедән, уңай корылган боҗралар системасы тискәре корылган фосфат скелетына тартыла. Спектроскопик тикшеренүләр тоз аз булганда бу электростатик өлешнең өстен булуын күрсәтә; шул ук вакытта модельләштерү һәм молекуляр динамика ике чылбырлы ДНК өчен интеркаляцияне һәм кече улакка бәйләнүне тотрыклы бәйләнү төрләре дип күрсәтә. Бу метилен зәңгәренең ДНКга бәйләнүен спектроскопик тикшерүдә гомумиләштерелгән. Икенчедән, GCга билгеле бер өстенлек бар: модельләштерү CpG һәм GpC адымнарына өстенлек бирә, ә метилен зәңгәренең интеркаляция өстенлекләре турындагы эштә тәҗрибәләр GCга бай дуплекслар белән өстенлекле бәйләнешне күрсәтә. Әмма AT дуплекслары да бәйләнә. Гадәти буяу билгеле бер эзлеклелеккә генә хас түгел. Өченчедән, бер чылбырлы ДНК һәм РНК нигездә электростатик тәэсирләр, ачык нигезләр һәм дуплекс өлкәләре белән стекинг аша бәйләнә. Шуңа күрә буяу көче озынлыкка, эзлеклелеккә һәм икенчел структурага карап үзгәрә.
Моннан ике нәтиҗә килеп чыга. Бәйләнеш ковалент булмаганга, буягыч юылып чыга. Полиакриламид полосалары махсус беркетелмәсә, тиз төссезләнә; гадәти буяу вакытлы булганга күрә, даими беркетүнең аерым варианты эшләнгән. Ул Soto һәм Draper тарафыннан PAGE гельләре өчен тасвирланган. Буягыч фотосенсибилизатор булганга, буялган ДНКны кислород барында көчле яктылыкта озак тоту гуанинны оксидлаштырырга һәм ахыр чиктә чылбырларда киселүләр барлыкка китерергә мөмкин. Бу механизм метилен зәңгәре сенсибилизацияләгән гуанин оксидлашуы турындагы эштә җентекләп аңлатылган. Ак яктылыкта кыска вакыт карау этидий бромиды белән эшләүнең классик тәртибендә яхшы билгеле булган UV зарарлануыннан саклый; препарат алу өчен ДНКны кире бүлеп чыгарганда бу өстенлек чыннан да мөһим. Күренә торган яктылык йомшаграк тәэсир итә, әмма бөтенләй зарарсыз түгел. ДНК клонлау өчен кулланылачак булса, яктырту вакытын кыска тотыгыз. Бу саклык артындагы киңрәк фотохимия турында метилен зәңгәре фотохимиясендәге ике юлны карагыз. Оксидлашкан форманың ни өчен бәйләнүен, ә кайтарылган форманың бәйләнмәвен аңлатучы редокс-пара һәм корылма халәтләре турында метилен зәңгәренең төзелеше һәм үзлекләре химиясен карагыз.
Беренче бурыч: гель эчендә буяу
Гельдә буяу бер сорауга җавап бирә: бу полосада күз белән күрерлек күләмдә нуклеин кислотасы бармы? Агарозадагы ике чылбырлы ДНК — иң яхшы өйрәнелгән очрак. Flores һәм хезмәттәшләренең метилен зәңгәре белән гель буяуның башлангыч ысулы 1 процентлы агарозада 0.02 процентлы тиз протоколны тикшереп раслаган һәм аннан соң ДНКны уңышлы кире бүлеп алуны һәм клонлауны күрсәткән. Шул ук тәэмин итүче протоколы IBI Scientific метилен зәңгәре продукт битендә дә бирелгән: анда мембраналар өчен 0.04 процентлы рецепт һәм гель өчен тиз вариант янәшә күрсәтелә.
Практик эш тәртибе:
- Гельдә электрофорезны гадәттәгечә үткәрегез. Буяуны электрофорездан соң башкарыгыз, аның вакытында түгел; үзгәртелгән ысул өчен күчерү яки аеру сәләте тикшереп расланган очрак кына искәрмә булып тора.
- Дистилляцияләнгән судагы 0.02 процент w/v метилен зәңгәренә батырыгыз һәм якынча 15 минут җиңелчә селкетеп торыгыз.
- Суны берничә тапкыр алыштырып, матрица фоны кимегәнче һәм полосалар аерылып күренгәнче, барлыгы якынча 15 минут буягычны юдырыгыз.
- Ак яктылыклы яктырткычта тиз арада фотога төшерегез.
Агароза белән полиакриламид үзләрен төрлечә тота. Агароза буягычны матрицада тотып кала, шуңа күрә буягычны юдыру — иң акрын этап. Юка полиакриламид гельләре тиз буяла, ләкин буягычны да тиз югалта; бу препарат әзерләү өчен кисеп алуга ярдәм итә, әмма архив өчен теркәүне кыенлаштыра. Полиакриламидтагы синтетик олигонуклеотидларны шул ук 0.02 процентлы рецепт белән, су белән кабат-кабат юып, 20–30 минутта табарга мөмкин; моның өчен Current Protocols стилендәге билгеле PAGE ысулларына иярәләр. Препарат алу өчен олигонуклеотидлар белән берничә сәгать эшләгәндә сыекландырылган TBEдагы якынча 0.0002 процентлы бик сыек вариантлар турында хәбәр ителгән, әмма аларның дәлилләр базасы зәгыйфьрәк.
ДНК белән РНК арасындагы аерма мөһим. Ике чылбырлы ДНК иң көчле структуралашкан бәйләнеш бирә. РНК һәм бер чылбырлы ДНК да буяла, әмма көчсезрәк һәм нәтиҗәне алдан әйтү кыенрак. Формальдегидлы агароза РНК гельләре өчен күпчелек лабораторияләр гель эчендә зәңгәр буягыч белән буяуны үткәрми: башта РНКны мембранага күчерә, аннары шунда буйый. Бу адым гельдәге көчсез сигнал урынына мембранадагы ачыграк сигнал һәм салынган үрнәк күләмен теркәү мөмкинлеге бирә.
Икенче бурыч: мембранада буяу
Мембранада буяу башка сорауга җавап бирә: күчерү уңышлы булдымы һәм юлларны чагыштырып буламы? Классик кулланылыш — Herrin һәм Schmidtның Northern блотын кире кайтарылучан буяу ысулы. Башлангыч вариантта pH 5.0 булган 50 mM натрий ацетатында 0.04 процент буягыч белән 2–3 минут буяганнар һәм су белән чайкаганнар; гибридлаштыру алдыннан буягычны SSPEдагы сыекландырылган SDS белән юдырып бетергәннәр.
Киң кулланыла торган хәзерге вариант түбәндәгечә башкарыла:
- РНКны яки денатурацияләнгән ДНКны нейлонга яки нитроцеллюлозага күчерегез, аннары буяу вакытында үрнәк югалмасын өчен UV ярдәмендә аркылы бәйләү яки җылытып беркетү белән иммобилизацияләгез.
- Мәҗбүри түгел, әмма еш кулланыла: мембрананы 5 процентлы серкә кислотасында якынча 15 минут чылатыгыз.
- pH 5.2 тирәсендәге 0.3–0.5 M натрий ацетатында 0.02–0.04 процент метилен зәңгәре белән 5–10 минут буягыз.
- Су белән чайкагыз һәм 5–15 минут буягычны юдырыгыз, нәтиҗәне теркәгез, аннары гибридлаштыру алдыннан калган буягычны бетерегез.
Northern эшләрендә уңай корылган нейлон өстенлек итә. Нитроцеллюлоза да шул ук серкә кислотасы һәм ацетат кулланыла торган тәртип белән эшли. Сурәт күчерүне раслау, 28S һәм 18S полосаларын чагыштыру (яки бактерия РНКсы өчен 23S һәм 16S), маркерларны һәм стандартларны билгеләү, шулай ук гомуми РНК күләменә карап якынча нормальләштерү язмасын саклау өчен кулланыла. Басылган Northern ысулларында салынган үрнәк күләмен тикшерү өчен буялган рибосомаль полосалар санча бәяләнә. Моңа сөтчелек фәне өлкәсендә нормальләштерү өчен метилен зәңгәре белән буялган рибосомаль полосаларны кулланган эш тә керә. Southern мембраналарын да шул ук рәвештә күренерлек итәргә мөмкин, әмма буягыч Northernда үрнәк салуны һәм күчерүне тикшерү чарасы буларак күпкә киңрәк урын алган. Моннан тыш, Southern өчен ДНК күчерү алдыннан денатурацияләнә, шуңа күрә гель өчен сизгерлек саннарын монда турыдан-туры кулланып булмый.
Ачыклау чикләре һәм фон: зәңгәр буягыч кайда оттыра
Түбәндәге чагыштыру махсус рәвештә якынча бирелгән. Буягычның эш нәтиҗәсе гель процентына, полоса киңлегенә, оптикага һәм буягычны юдыруның төгәллегенә бәйле. Һәр санны төгәл спецификация түгел, ә зурлык тәртибе итеп кабул итегез.
| Буягыч һәм формат | Бер полоса өчен якынча ачыклау чиге | Нәтиҗәне аңлату |
|---|---|---|
| Метилен зәңгәре, агарозада dsDNA | Оптимальләштерелгәндә 40–250 ng; сакчыл бәяләүдә 0.5–1 микрограмм | Препарат алу өчен салынган күләмнәр һәм укыту гельләре өчен җитәрлек. Эз күләмдәге полосалар өчен көчсез. |
| Метилен зәңгәре, PAGEда кыска ssDNA яки РНК яки олигонуклеотидлар | Якынча 0.1–0.5 микрограмм | Озынлыкка һәм структурага бәйле. Универсаль чик юк. |
| Этидий бромиды, агарозада dsDNA | Якынча 1–10 ng | Flores чагыштыруында оптимальләштерелгән зәңгәр буягычтан якынча дүрт тапкыр сизгеррәк. UV кирәк. |
| SYBR Green I, dsDNA | Якынча 60 pg | Флуоресценция сурәтен алу кирәк. |
| SYBR Gold, ДНК һәм РНК | Якынча 25 pg | Берничә форматта этидий бромидыннан ун тапкырдан да күбрәк сизгеррәк. |
| Көмеш белән буяу, PAGEда нуклеин кислоталары | Якынча 0.3–0.9 ng; зәңгәр буягычтан соң көмеш белән буяуның оптимальләштерелгән эзлеклелегендә 100 pg РНК турында хәбәр ителгән | Бик сизгер, әмма химик яктан катлаулы һәм үрнәкне кире бүлеп алу өчен уңайсыз. |
| Толуидин зәңгәре, PAGEда РНК һәм олигонуклеотидлар | Эш өчен йөзләрчә ng, якынча 250 ng документлаштырылган | Метилен зәңгәре кебек үк күренә торган яктылыкта күзәтелә, әмма SYBR спецификацияләре белән чагыштырырлык стандартлаштырылган чик юк. |
Фонны контрольдә тоту уртача көчтәге сигналның кулланырлык булу-булмавын хәл итә. Ирекле буягычның төсе бик көчле, шуңа күрә контраст бәйләнгән буягычны югалтмыйча, бәйләнмәгәнен бетерү аша барлыкка килә. Концентрациясе югарырак буягыч сизгерлекне сирәк арттыра. Ул нигездә буягычны юдыру вакытын гына озайта. Нәкъ шул гельдә, мембранада һәм камера белән эзлекле сыекландыруларны сынагыз һәм интеграль тыгызлык салынган күләмгә пропорциональ булып калган диапазонны гына кулланыгыз. Метилен зәңгәре салынган үрнәк күләмен ярымсанча нормальләштерергә мөмкинлек бирә. Ул киң динамик диапазонлы санча анализ түгел, чөнки мембрана сыйдырышлыгы, күчерү нәтиҗәлелеге, туену һәм буягычны юдыру юлдан юлга үзгәрә.
Ярашлылык чикләре: буяудан соң нәрсә эшли ала
Зәңгәр буягыч белән буяганнан соң клонлау мөмкинлеге күрсәтелгән. Flores һәм хезмәттәшләре агарозадагы буялган полосаларны кисеп алган, ДНКны кире бүлеп чыгарган, аннары аны лигирләгән һәм трансформацияләгән; алар этидий бромиды һәм UV кулланганнан соңгыга караганда яхшырак клонлау нәтиҗәләре турында хәбәр иткән. Моның ихтимал сәбәбе — буягычның үзеннән килгән файда түгел, ә фотозарарлануның азрак булуы. Ак яктылык тәэсирен кыска тотыгыз һәм кире бүлеп алынган ДНКны гельдән экстракцияләүнең гадәти чистарту этабы аша үткәрегез.
PCR һәм секвенирлау өчен дәлилләр азрак. Калдык буягыч нуклеин кислоталарына бәйләнә, шуңа күрә ферментатив этаплар алдыннан буягычны юдырыгыз һәм үрнәкне чистартыгыз. Зәңгәр буягыч белән буялган гельдән тиешенчә чистартылган ДНК эшләргә тиеш дип көтелә, әмма төрле полимеразаларның һәм секвенирлау химияләренең турыдан-туры күчкән буягыч калдыгына чыдамлыгы санча яхшы билгеләнмәгән. Моңа үзеннән-үзе ышанмагыз.
Блот гибридлаштыруы тәртип төгәл үтәлгәндә яраша: күчерү, иммобилизация, буяу, теркәү, буягычны юдыру, гибридлаштыру. Бу эзлеклелек — Herrin һәм Schmidt ысулының нигезе. Күчерү алдыннан буяу яки буягычны юдыруны төшереп калдыру — башка ысул, һәм ул аерым тикшереп раслауны таләп итә. Буягыч бетерелгәннән соң, стандарт зондны алып ташлау һәм зонд белән кабат тикшерү гадәттәгечә башкарыла. Шул ук буягычлар гаиләсе белән күзәнәк дәрәҗәсендә буяу һәм фиксацияләнгән мазокка караган логиканың ни өчен тере күзәнәк ысулларына күчмәве турында микроскопик буяу атласын карагыз.
Даими беркетү варианты кулланылмаса, полосаларны кисеп алу препарат әзерләү өчен агарозада да, зәңгәр буягыч белән табылган PAGE олигонуклеотидлары өчен дә эшли. Буягычны юдырганнан соң электроэлюция кире кайтарылучан бәйләнүче матдә өчен химик яктан мөмкин, әмма нәкъ метилен зәңгәренә кагылышлы контрольдә алынган чыгыш мәгълүматлары аз. Элюциядән соң тозларны бетерегез яки үрнәкне утыртыгыз.
Кабатлана торган уңышсызлыклар
Гельдәге тонык полосалар гадәттә колориметрик буяу өчен масса җитмәвен аңлата, аеруча кыска бер чылбырлы яки РНК мишеньнәре өчен. Күбрәк үрнәк салыгыз, яңа буягыч кулланыгыз, концентрацияне арттырганчы буяу вакытын озайтыгыз һәм буягычны юдыруны иртәрәк туктатыгыз. Контрастсыз, тоташ зәңгәр гель гадәттә артык буяуны яки суны җитәрлек алыштырмауны аңлата. PAGE полосаларының төссезләнүе — көтелгән химик күренеш, уңышсыз буяу түгел. Тиз фотога төшерегез. Мембранадагы тигез булмаган фон бөкләнүләргә, күбекләргә, бармак эзләренә, тигез булмаган селкетүгә яки өлешчә генә күчерүгә ишарә итә. Гибридлаштыру контроленнән башка моны үрнәкләрнең тигез салынмавы дип аңлатмагыз. Җәелгән һәм көчсез рибосомаль сурәт таркалуны аңлатырга мөмкин, ләкин шулай ук тулы булмаган күчерүдән, гомуми РНК күләменең аз булуыннан (гадәти юлларда берничәдән дистәләрчә микрограммга кадәр була) яки буягычны артык юдырудан да килеп чыгарга мөмкин. Буягыч күп күләмдә булган рибосомаль РНКны күрсәтә. Ул аерым транскриптны күрсәтми. Бу эшне зонд башкара.
Артык раслауларсыз куркынычсызлык һәм эшләү тәртибе
Метилен зәңгәре белән эшләү этидий бромидына караганда гадирәк, әмма ул зарарсыз түгел. MilliporeSigmaның гамәлдәге куркынычсызлык паспорты буягычны авыз аша кергәндә кискен агулылык буенча 4 категориягә кертә: йотканда зарарлы. Sigma-Aldrich метилен зәңгәре SDSы нигезендә аны расланган калдык утильләштерү юлы аша чыгару кирәк. Этидий бромидының генотоксиклык турында кисәтүләре катгыйрак, шул исәптән аның Sigma-Aldrich этидий бромиды SDSында җенес күзәнәкләренә шикләнелгән тәэсирләр күрсәтелә. Аның гельләре һәм эремәләре гадәттә куркыныч химик калдыклар буларак аерым җыела; бу Thermo Fisher нуклеин кислоталарын буяу кулланмасында да искәртелә. Икесе өчен дә SDSны һәм оешмагыз кагыйдәләрен үтәгез. Коры буягычны тыгыз ябылган килеш һәм коры урында саклагыз, эш буягычын протокол рөхсәт иткән очракта гына кабат кулланыгыз, буялган мембраналарны фильтр кәгазе битләре арасында коры килеш саклагыз һәм полосалар диффузияләнеп таралганчы гельләрне фотога төшерегез.
Лаборатория өстәле янында истә тотасы җөмләне онытмагыз. Гельләр ак яктылыкта күп үрнәк салынганда күренүчәнлекне тикшерә. Мембраналар, зонд сизгер эшне башкарганчы, күчерүне һәм салынган үрнәк күләмен тикшерә. Бер буягыч икесенә дә хезмәт итә: сизгерлеге уртача, бәйләнүе кире кайтарылучан, ә эш этапларының тәртибе катгый.