
บทความ
การวัดชนิดออกซิเจนที่ไวต่อปฏิกิริยาในการทดลองเมทิลีนบลู
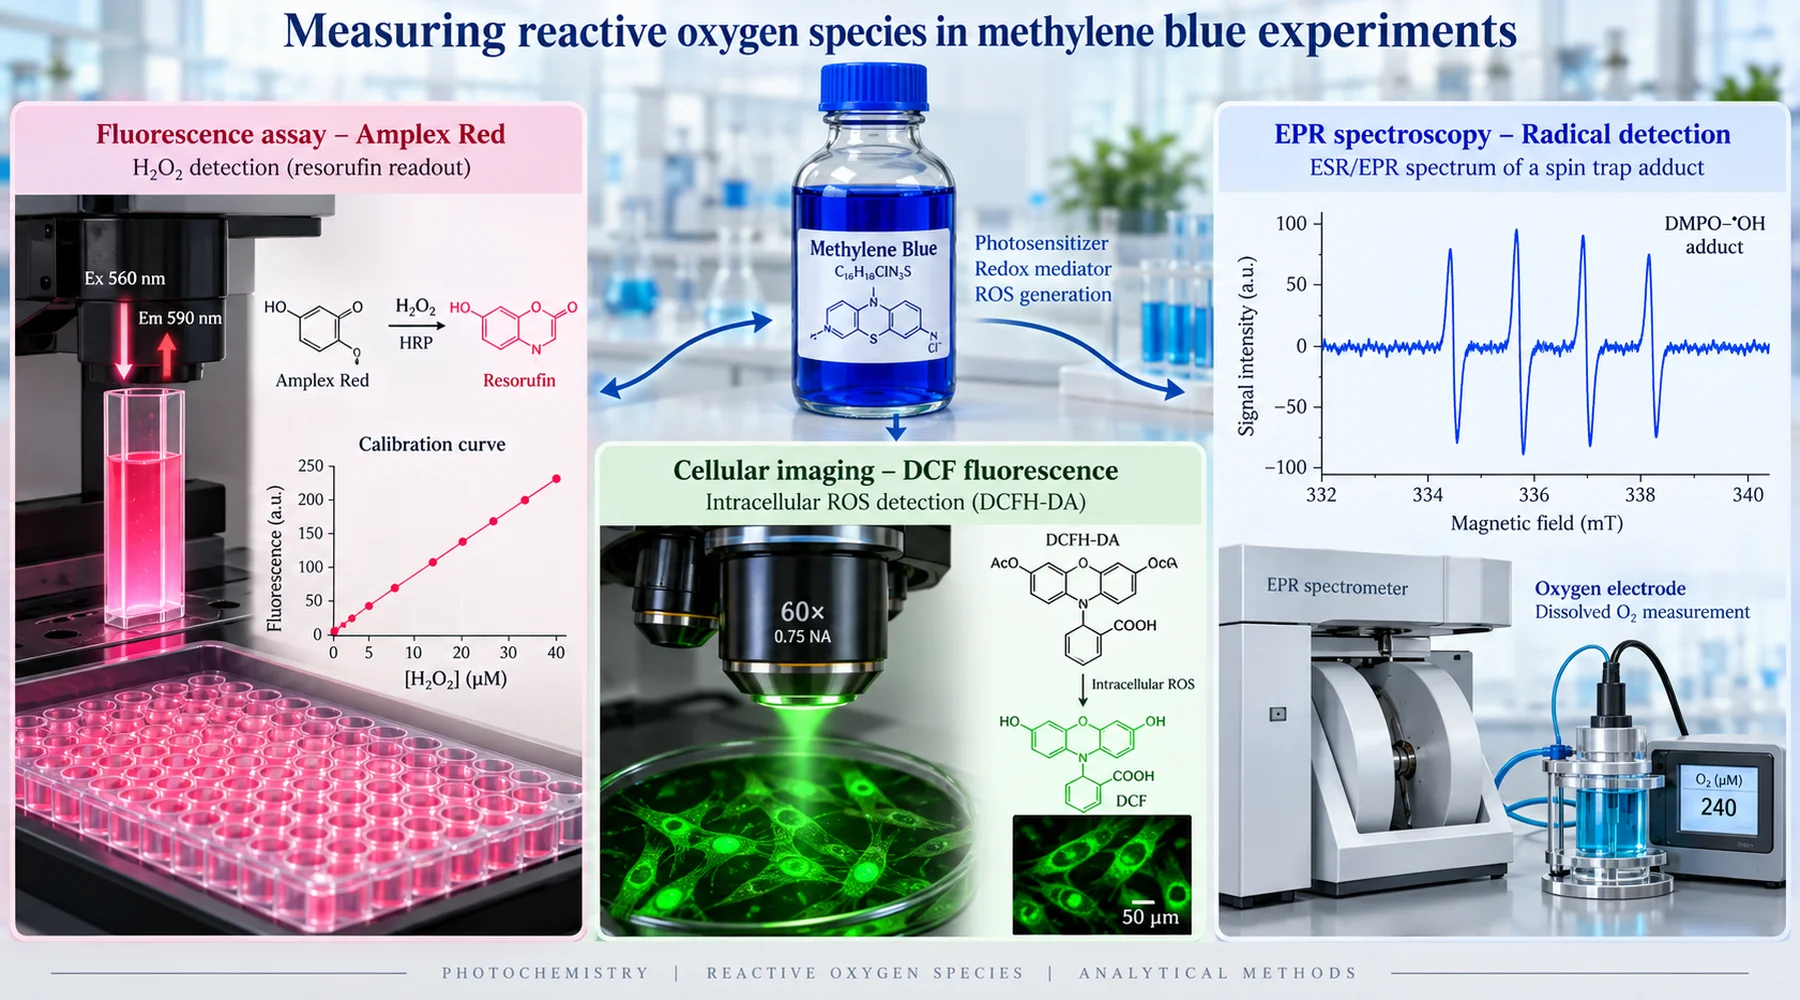
ห้องปฏิบัติการสองแห่งทำสิ่งที่แต่ละแห่งเรียกว่าการทดลองฤทธิ์ต้านออกซิเดชันของเมทิลีนบลู แห่งหนึ่งรายงานว่าสีย้อมนี้ลดชนิดออกซิเจนที่ไวต่อปฏิกิริยา อีกแห่งรายงานว่ามันสร้างสารเหล่านั้น ทั้งสองแห่งแสดงกราฟการตอบสนองต่อปริมาณที่ชัดเจน ทั้งสองแห่งรายงานอย่างจริงใจ ความแตกต่างไม่ได้เกิดจากการทุจริตหรือความไร้ความสามารถ แต่เกิดจากการที่ทั้งสองกลุ่มวัดคนละสิ่งภายใต้สภาพแสงที่ต่างกัน ใช้โพรบที่ตอบคำถามคนละข้อ แล้วเรียกคำตอบทั้งสองด้วยคำเดียวกันว่า ROS
เมทิลีนบลูเป็นโมเลกุลที่วัดอย่างแม่นยำได้ยาก เพราะมันมีส่วนร่วมในปฏิกิริยาเคมีที่ควรจะเป็นเพียงสิ่งที่ถูกสังเกต ในความมืด มันถ่ายโอนอิเล็กตรอนระหว่างตัวให้และตัวรับ แล้วกลับคืนสู่รูปเริ่มต้น พร้อมวนรอบอีกครั้ง เมื่อได้รับแสง มันกลายเป็นสารไวแสง เข้าสู่สถานะทริปเลตที่ถูกกระตุ้น ซึ่งสามารถถ่ายโอนพลังงานให้ออกซิเจนเพื่อสร้างออกซิเจนซิงเกลต หรือถ่ายโอนอิเล็กตรอนเพื่อสร้างอนุมูลและไฮโดรเจนเปอร์ออกไซด์ โพรบใดก็ตามที่ใส่ลงในระบบนี้อาจถูกออกซิไดซ์ ถูกรีดิวซ์ สีซีดจาง หรือถูกสีย้อมเองบดบังสัญญาณทางแสง ดังนั้นคำถามแรกต่อผลอ่าน ROS จึงไม่ใช่ว่าค่าที่ได้คือเท่าไร แต่คือวิธีตรวจวัดนั้นตรวจพบอะไรจริง ๆ และสีย้อมส่งผลอย่างไรต่อวิธีตรวจวัด
Amplex Red: วิธีตรวจวัดไฮโดรเจนเปอร์ออกไซด์ที่ผ่านการสอบเทียบ
การใช้ เมทิลีนบลูร่วมกับ Amplex Red เป็นการจับคู่ที่มีหลักฐานรองรับหนักแน่นที่สุดในวรรณกรรมกลุ่มนี้ เมื่อจัดระบบอย่างถูกต้อง ปฏิกิริยาเคมีมีความจำเพาะ: เอนไซม์ฮอร์สแรดิชเปอร์ออกซิเดสใช้ไฮโดรเจนเปอร์ออกไซด์ออกซิไดซ์สารตั้งต้น Amplex ให้เป็นผลิตภัณฑ์เรืองแสงคือรีโซรูฟิน ด้วยอัตราส่วนปริมาณสัมพันธ์ประมาณหนึ่งต่อหนึ่ง เปอร์ออกไซด์จากตัวอย่างจึงเปลี่ยนเป็นสัญญาณเรืองแสงที่เครื่องตรวจจับอ่านได้ ไม่มีสารอื่นในกลุ่ม ROS ที่ยอมรับกันทั่วไปขับเคลื่อนปฏิกิริยานี้โดยตรง
ข้อได้เปรียบสำคัญคือการสอบเทียบ ผู้ทดลองที่รอบคอบจะทดสอบสารมาตรฐานเปอร์ออกไซด์ที่ทราบปริมาณในบัฟเฟอร์เดียวกัน ใช้ความเข้มข้นของเปอร์ออกซิเดสและสารตั้งต้นเท่ากัน ระยะเวลาบ่มเท่ากัน และการตั้งค่าทางแสงเหมือนกัน แล้วอ่านค่าตัวอย่างเทียบกับกราฟนั้น ในการศึกษาไมโทคอนเดรียที่แยกจากสมองซึ่งเป็นหลักอ้างอิงของวิธีนี้ ผู้เขียนทำเช่นนั้นจริง โดยเติมเปอร์ออกไซด์ในปริมาณที่ทราบเมื่อสิ้นสุดการทดสอบแต่ละครั้ง และรายงานค่าเป็นอัตราในหน่วยพิโคโมลต่อนาทีต่อมิลลิกรัมโปรตีน แทนหน่วยความเข้มการเรืองแสงที่กำหนดขึ้นเอง นี่คือสิ่งที่เปลี่ยนการเรืองแสงให้เป็นการวัด
รายละเอียดสามข้อจากการศึกษานั้นควรนำมาปฏิบัติตาม ข้อแรก ผู้เขียนตรวจสอบสัญญาณด้วยคะตาเลส ซึ่งสลายเปอร์ออกไซด์ การเพิ่มขึ้นของการเรืองแสงที่เกิดจากเมทิลีนบลูหยุดลงเมื่อเติมคะตาเลส ยืนยันว่าสัญญาณมาจากเปอร์ออกไซด์ ไม่ใช่สัญญาณลวงทางแสง ข้อที่สอง พวกเขาทดสอบผลของแสงโดยตรงด้วยการใช้ชัตเตอร์ควบคุมลำแสงกระตุ้น ให้ตัวอย่างได้รับปริมาณแสงเพียงหนึ่งในแปดของปกติ และสัญญาณลดลงเพียงเก้าเปอร์เซ็นต์ เปอร์ออกไซด์มากกว่าเก้าสิบเปอร์เซ็นต์ที่รายงานจึงไม่ได้ขึ้นอยู่กับแสงที่ใช้ในการวัด ข้อที่สาม พวกเขาวัดการกำจัดเปอร์ออกไซด์แยกต่างหากด้วยอิเล็กโทรด และพบว่าสีย้อมทั้งเพิ่มการสร้างและชะลอการกำจัด โพรบที่รายงานเพียงการเรืองแสงสุทธิจะรวมผลทั้งสองนี้เข้าด้วยกันจนแยกไม่ออก
วิธีตรวจวัดนี้ยังมีจุดที่อาจให้ผลผิดพลาด และเมทิลีนบลูทำให้เกิดปัญหาได้หลายจุด สีย้อมดูดกลืนแสงเป็นช่วงกว้างในบริเวณสีแดงเดียวกับที่รีโซรูฟินปล่อยแสง ดังนั้นเมื่อความเข้มข้นของสีย้อมสูง ตัวอย่างอาจบดบังสัญญาณของตัวเองผ่านปรากฏการณ์ตัวกรองภายใน สารมาตรฐานจึงควรมีความเข้มข้นของสีย้อมเท่ากับตัวอย่าง นอกจากนี้ Amplex Red ยังเกิดโฟโตออกซิเดชันได้ด้วยตัวเอง และผลิตภัณฑ์รีโซรูฟินอาจเข้าสู่วัฏจักรโฟโตรีดอกซ์ที่สร้างซูเปอร์ออกไซด์และเปอร์ออกไซด์ ซึ่งมีความสำคัญมากเมื่อการทดลองนั้นให้แสงแก่สารไวแสงด้วย วิธีแก้ในทางปฏิบัติคือฉายแสงให้ตัวอย่างเมทิลีนบลูก่อน แล้วนำส่วนย่อยของตัวอย่างมาตรวจด้วยสารรีเอเจนต์ Amplex ในความมืด แทนการให้แสงแก่สีย้อมและโพรบพร้อมกัน สุดท้าย ซูเปอร์ออกไซด์ดิสมิวเทสไม่ได้เพียงลดสัญญาณ Amplex เท่านั้น: การเปลี่ยนซูเปอร์ออกไซด์เป็นเปอร์ออกไซด์อาจเพิ่มสัญญาณได้ ชุดควบคุม SOD ที่ทำให้การเรืองแสงเพิ่มขึ้นไม่ได้ล้มเหลว แต่ระบุว่าซูเปอร์ออกไซด์เป็นสารตั้งต้นในเส้นทางก่อนหน้า
DCFDA: ตัวบ่งชี้การออกซิเดชันที่ไม่จำเพาะ
การใช้ เมทิลีนบลูร่วมกับ DCFDA เป็นที่มาของความสับสนส่วนใหญ่ DCFH-DA เป็นสารตั้งต้นสำหรับนำโพรบเข้าสู่เซลล์ เอนไซม์เอสเทอเรสภายในเซลล์ตัดหมู่อะซีเตตออก เหลือ DCFH ที่ไม่เรืองแสง และการออกซิเดชันของ DCFH ให้ DCF ที่เรืองแสง สารที่ออกซิไดซ์มันได้มีรายการยาว ได้แก่ อนุมูลไฮดรอกซิล สารมัธยันตร์ของเปอร์ออกซิเดสและฮีม ไนโตรเจนไดออกไซด์ กรดไฮโปคลอรัส และอนุมูลที่เกิดจากเปอร์ออกซีไนไตรต์ ไฮโดรเจนเปอร์ออกไซด์เพียงอย่างเดียวไม่ได้ออกซิไดซ์มันโดยตรงในอัตราที่ใช้งานได้ การเรืองแสงที่ขึ้นกับเปอร์ออกไซด์โดยทั่วไปต้องมีเหล็ก โปรตีนฮีม หรือปฏิกิริยาเคมีของเปอร์ออกซิเดสร่วมอยู่ในกระบวนการ
ข้อวิจารณ์ที่ส่วนวิธีการของทุกงานควรอ้างอิงมาจากการวิเคราะห์ DCFH ในฐานะโพรบโดย Kalyanaraman และคณะ ซึ่งสรุปไว้ใน การศึกษาไมโทคอนเดรียจากสมองที่ปฏิเสธการใช้ DCFDA ด้วยเหตุผลนี้ การวิเคราะห์ดังกล่าวแสดงว่าสีย้อมนี้ทำปฏิกิริยาช้า มีอัตราส่วนปริมาณสัมพันธ์ที่ยังไม่ได้ระบุชัดเจน ไม่มีการสอบเทียบที่ใช้ได้ และทำปฏิกิริยากับสารที่ไม่ใช่ ROS ด้วย โพรบยังขยายสิ่งที่มันวัด: การออกซิเดชัน DCFH แบบเสียอิเล็กตรอนหนึ่งตัวสร้างอนุมูล DCF ซึ่งทำปฏิกิริยากับออกซิเจนให้ซูเปอร์ออกไซด์ จากนั้นซูเปอร์ออกไซด์เกิดปฏิกิริยาดิสมิวเทชันให้เปอร์ออกไซด์เพิ่มขึ้น กระบวนการอ่านผลจึงสร้างปฏิกิริยาเคมีที่มันรายงานขึ้นเองบางส่วน
ทั้งหมดนี้ไม่ได้ทำให้ DCFDA ไร้ประโยชน์ แต่ทำให้มันเป็นเครื่องมือคัดกรอง ไม่ใช่เครื่องมือระบุชนิด การเรืองแสงของ DCF ที่เพิ่มขึ้นหมายถึงการออกซิเดชันของโพรบที่ขึ้นกับสารออกซิไดซ์เพิ่มขึ้น ไม่ได้หมายความว่าเปอร์ออกไซด์เพิ่มขึ้น และยิ่งไม่ได้หมายความว่า ROS ทั้งหมดเพิ่มขึ้น เพราะไม่มีโพรบตัวใดตัวเดียววัดปริมาณนั้นได้ งานเมทิลีนบลูยุคก่อนที่อาศัยการออกซิเดชันของ DCF ที่ความเข้มข้นมากกว่าหนึ่งไมโครโมลาร์รายงานผลส่งเสริมการออกซิเดชัน ขณะที่ระบบอื่นในยุคเดียวกันรายงานการป้องกันการตายของเซลล์ที่เกิดจากเปอร์ออกไซด์ ข้อสังเกตทั้งสองอาจเป็นจริงสำหรับสีย้อมชนิดเดียวกันในบริบทรีดอกซ์ที่ต่างกัน และผล DCF เพียงอย่างเดียวบอกไม่ได้ว่าสารออกซิไดซ์ชนิดใดเป็นต้นทางของสัญญาณ ความสำคัญของงานไมโทคอนเดรียจากสมองก่อนหน้านั้นคือการเปลี่ยนจากการคัดกรองนี้มาเป็นการวัดเปอร์ออกไซด์ที่ผ่านการสอบเทียบ และตรวจพบภาระเปอร์ออกไซด์โดยตรง: แม้สีย้อมเพียงหนึ่งร้อยนาโนโมลาร์ก็เพิ่มการปล่อยเปอร์ออกไซด์หลายเท่าในทุกสารตั้งต้นและทุกสภาวะการหายใจที่ทดสอบ
DCFDA ยังมีกับดักอีกข้อที่จำเพาะต่อเมทิลีนบลู สีย้อมนี้มีสีเข้มและมีความไวต่อปฏิกิริยารีดอกซ์ จึงอาจทำให้การเรืองแสงซีดจาง ดับการปล่อยแสง หรือออกซิไดซ์สารในระบบโพรบได้โดยไม่ขึ้นกับ ROS ของเซลล์ ชุดควบคุมที่มีสีย้อมร่วมกับโพรบแต่ไม่มีเซลล์จึงไม่ใช่เพียงส่วนประกอบเสริมที่เลือกละได้ แต่เป็นการทดลองที่บอกว่าสีย้อมมีปฏิสัมพันธ์กับโพรบหรือไม่
การดักจับสปินและการใช้ออกซิเจน: ชนิดของสารและฟลักซ์
ขณะที่โพรบเรืองแสงรายงานว่ามีบางสิ่งที่ทำให้เกิดการออกซิเดชันปรากฏขึ้น อิเล็กตรอนสปินเรโซแนนซ์ร่วมกับสารดักจับสปินให้ข้อมูลที่ใกล้เคียงกับการระบุว่าสิ่งนั้นคืออะไร การศึกษาเคมีแสงของเมทิลีนบลูชิ้นคลาสสิกใช้ ESR ตรวจหาอนุมูลแอสคอร์เบตจากสีย้อม แอสคอร์เบต และแสง จากนั้นแสดงการเกิดเปอร์ออกไซด์ในการทดลองการใช้ออกซิเจน และการเกิดอนุมูลไฮดรอกซิลที่มีเหล็กเป็นตัวเร่งในการทดลองดักจับสปิน แต่ละเทคนิคตอบคำถามที่เทคนิคอื่นตอบไม่ได้: ESR ระบุชนิดของอนุมูล การใช้ออกซิเจนให้ฟลักซ์ของปฏิกิริยาโดยไม่ขึ้นกับโพรบเรืองแสงใด ๆ และเมื่อใช้ร่วมกันก็แสดงว่าทั้งเส้นทางออกซิเจนซิงเกลตและเส้นทางอนุมูลทำงานอยู่ในระบบที่ได้รับแสงเดียวกัน
ผลจากปี 1984 นั้นยังคงอ่านได้ราวกับป้ายเตือน เมื่อมีแสงและสารรีดิวซ์ สีย้อมสร้างเปอร์ออกไซด์ และเมื่อมีเหล็ก ระบบสร้างอนุมูลไฮดรอกซิล ซึ่งเป็นสารที่ไวต่อปฏิกิริยามากที่สุดในกลุ่มนี้ ผู้เขียนเชื่อมโยงเรื่องนี้กับแอสคอร์เบตในดวงตา และตั้งคำถามต่อการใช้ทางจักษุโดยไม่ระมัดระวัง ผู้อ่านในปัจจุบันควรสังเกตเงื่อนไขให้ชัด: แสงร่วมกับสารรีดิวซ์และเหล็ก เมื่อตัดสิ่งใดสิ่งหนึ่งออก เส้นทางนั้นจะอ่อนลงหรือหายไป
อิเล็กโทรดออกซิเจนมีคุณค่าด้วยเหตุผลที่ต่างออกไป อิเล็กโทรดชนิดคลาร์กวัดการใช้ออกซิเจนสุทธิ ซึ่งยืนยันว่าปฏิกิริยารีดอกซ์ที่ขับเคลื่อนโดยสีย้อมกำลังใช้ออกซิเจนระดับโมเลกุล และให้ข้อมูลจลนพลศาสตร์ที่สัญญาณลวงจากการเรืองแสงไม่อาจเลียนแบบได้ แต่มันไม่ได้ระบุผลิตภัณฑ์ การเกิดเปอร์ออกไซด์ ซูเปอร์ออกไซด์ น้ำ และกระบวนการสลายตัวของออกซิเจนซิงเกลตล้วนเกี่ยวข้องกับการใช้ออกซิเจน ฟลักซ์ที่ไม่ระบุชนิดของสารไม่สมบูรณ์พอ ๆ กับการระบุชนิดที่ไม่มีฟลักซ์ นี่จึงเป็นเหตุผลที่งานวิจัยที่มีหลักฐานหนักแน่นจับคู่อิเล็กโทรดกับวิธีตรวจวัดเปอร์ออกไซด์ที่ผ่านการสอบเทียบหรือสารดักจับ
เหตุใดผลด้านการต้านออกซิเดชันจึงขัดแย้งกัน
เมื่อนำผลอ่านทั้งสามแบบมาเทียบกัน ความขัดแย้งที่ดูเหมือนมีในวรรณกรรมเมทิลีนบลูก็อธิบายได้ด้วยความแตกต่างของวิธีการร่วมกับข้อเท็จจริงทางชีววิทยาสามข้อ
ข้อแรก สีย้อมเป็นทั้งตัวถ่ายโอนอิเล็กตรอนและแหล่งกำเนิดเปอร์ออกไซด์ การเบี่ยงอิเล็กตรอนออกจากตำแหน่งในกระบวนการหายใจที่ออกซิเจนอาจเปลี่ยนเป็นซูเปอร์ออกไซด์ ทำให้มันลด ROS ชนิดหนึ่งได้ ขณะเดียวกันรูปที่ถูกรีดิวซ์ของมันก็รีดิวซ์ออกซิเจนโดยตรงเป็นเปอร์ออกไซด์ ทำให้ ROS อีกชนิดเพิ่มขึ้น ห้องปฏิบัติการที่ศึกษา เคมีรีดอกซ์ของไมโทคอนเดรียและบทบาทในการสร้างเส้นทางลัด จึงควรคาดว่าคำตอบจะขึ้นกับโพรบ: ผลอ่านที่ไวต่อซูเปอร์ออกไซด์ลดลง ขณะที่ผลอ่านเปอร์ออกไซด์เพิ่มขึ้นในคิวเวตเดียวกัน
ข้อที่สอง เปอร์ออกไซด์ในปริมาณต่ำเป็นสัญญาณ ไม่ใช่เพียงตัวก่อความเสียหาย การศึกษาไมโทคอนเดรียจากสมองหนูที่ตามมาจากงานก่อนหน้านั้นพบ การสร้างเปอร์ออกไซด์จากสีย้อมเพียงห้าสิบนาโนโมลาร์ โดยไม่พบความเสียหายต่อดีเอ็นเอของไมโทคอนเดรียที่ระดับความเข้มข้นเพื่อการรักษา และพบการป้องกันความเสียหายที่เกิดจากโรทีโนนหลังการให้สีย้อมล่วงหน้า สีย้อมทำให้ชิ้นส่วนดีเอ็นเอบางชิ้นเสียหายเฉพาะที่ความเข้มข้นหนึ่งร้อยไมโครโมลาร์ ซึ่งสูงกว่าช่วงเพื่อการรักษามาก ส่วนแสงสีแดงร่วมกับสีย้อมยี่สิบไมโครโมลาร์สร้างออกซิเจนซิงเกลตที่ทำให้ชิ้นส่วนทั้งหมดที่ทดสอบเสียหาย กลไกที่เสนอคือฮอร์มีซิส: การสร้างเปอร์ออกไซด์เล็กน้อยกระตุ้นการป้องกันการออกซิเดชันที่เชื่อมโยงกับ Nrf2 และการสร้างไมโทคอนเดรียใหม่ ดังนั้นผลอ่านที่แสดงการส่งเสริมการออกซิเดชันในระยะสั้นจึงเกิดก่อนผลต้านออกซิเดชันในระยะยาว การตรวจวัดที่อ่านผลเมื่อหนึ่งชั่วโมงกับการตรวจวัดที่อ่านผลเมื่อหนึ่งวันอาจไม่สอดคล้องกัน เพราะชีววิทยาเปลี่ยนไปในระหว่างนั้น
ข้อที่สาม แสงเป็นตัวกำหนดด้วยซ้ำว่ามีโมเลกุลชนิดใดอยู่ การให้แสงทำให้สีย้อมสูญเสียหมู่เมทิลและเปลี่ยนไปเป็น Azure B และผลิตภัณฑ์ที่เกี่ยวข้อง แสงจากหลอดไฟกล้องจุลทรรศน์ที่ส่องเหนือจานก็เพียงพอที่จะกระตุ้นกระบวนการไวแสงของมัน การทดลองในความมืดและการทดลองที่ได้รับแสงเป็นคนละการทดลอง และส่วน การควบคุมแสงและการจัดการสีย้อม ในแนวทางการทดลองทุกฉบับควรปฏิบัติต่อทั้งสองแบบเช่นนั้น
ชุดควบคุมขั้นต่ำและวิธีอ่านข้อกล่าวอ้างใด ๆ
ตารางเปรียบเทียบด้านล่างเป็นสื่ออ้างอิงต้นฉบับที่จัดทำขึ้นสำหรับบทความนี้ ก่อนยอมรับผล ROS ของเมทิลีนบลูใด ๆ ให้ตรวจว่าผู้เขียนทำชุดควบคุมแถวใดและข้ามแถวใดไป
| ชุดควบคุม | สิ่งที่ช่วยแยกออก | วิธีดำเนินการ |
|---|---|---|
| ความมืดเทียบกับการให้แสงที่กำหนดไว้ | การปะปนกันระหว่างผลรีดอกซ์ในสถานะพื้นกับเคมีแสง | ใช้สีย้อมเดียวกัน เมทริกซ์เดียวกัน กลุ่มหนึ่งอยู่ในความมืด อีกกลุ่มได้รับปริมาณแสงที่วัดไว้ |
| โพรบร่วมกับแสง ไม่มีสีย้อม | เคมีแสงของโพรบ | ให้แสงแก่โพรบเพียงอย่างเดียว สัญญาณใด ๆ ที่เกิดขึ้นคือค่าพื้นฐานของสัญญาณลวง |
| สีย้อมร่วมกับแสง ไม่มีเซลล์หรือสารตั้งต้น | ROS จากเซลล์เทียบกับ ROS ที่เกิดจากสีย้อมเอง | ใช้เมทริกซ์ที่ไม่มีเซลล์ เพื่อระบุว่าสีย้อมสร้างอะไรได้ด้วยตัวเอง |
| คะตาเลส | สัญญาณที่ไม่ได้มาจากเปอร์ออกไซด์ในการตรวจด้วย Amplex | สัญญาณควรลดลง โปรดสังเกตว่าสีย้อมที่ได้รับแสงอาจทำให้คะตาเลสเองเสียหายได้ |
| SOD | การมีส่วนร่วมของซูเปอร์ออกไซด์ | สัญญาณ Amplex ที่เพิ่มขึ้นบ่งชี้ว่ามีซูเปอร์ออกไซด์ในเส้นทางก่อนหน้า ไม่ใช่ความล้มเหลวของวิธีตรวจวัด |
| สารคีเลตเหล็ก เช่น ดีเฟอรอกซามีน | ปฏิกิริยาเคมีไฮดรอกซิลแบบเฟนตัน | ทดสอบว่าเหล็กที่มีความไวต่อปฏิกิริยารีดอกซ์เป็นต้นทางของสัญญาณ DCFH หรือสัญญาณจากสารดักจับหรือไม่ |
| สารมาตรฐานเปอร์ออกไซด์ในเมทริกซ์ครบองค์ประกอบ | การเรืองแสงที่ไม่ได้สอบเทียบ | เติมเปอร์ออกไซด์ในปริมาณที่ทราบ โดยใช้ความเข้มข้นสีย้อมและเงื่อนไขทางแสงเหมือนกัน |
จากนี้จึงได้หลักการอ่านผลที่ใช้ได้จริง Amplex ที่ใช้ร่วมกับเปอร์ออกซิเดส ผ่านการสอบเทียบ และตรวจสอบด้วยคะตาเลส เป็นหลักฐานเกี่ยวกับเปอร์ออกไซด์ DCFDA เป็นหลักฐานเกี่ยวกับการออกซิเดชันของโพรบที่ไม่จำเพาะเท่านั้น การดักจับสปินร่วมกับชุดควบคุมสารกำจัดอนุมูลเป็นหลักฐานเกี่ยวกับชนิดของอนุมูล การใช้ออกซิเจนเป็นหลักฐานเกี่ยวกับฟลักซ์ ประโยคที่กล่าวอ้างเกินกว่าสิ่งที่วิธีตรวจวัดรองรับได้ ไม่ว่าจะเขียนอย่างมั่นใจเพียงใด ก็เป็นประโยคเกี่ยวกับโพรบ ไม่ใช่เกี่ยวกับสีย้อม การอภิปรายที่เกี่ยวข้องเรื่องการขึ้นกับปริมาณและช่วงฮอร์มีซิส การไหลของอิเล็กตรอนในไมโทคอนเดรีย การรบกวนวิธีตรวจวัดในตัวอย่างที่ย้อมสี และสัญญาณลวงจากแสงในการใช้กล้องจุลทรรศน์ ช่วยขยายประเด็นเหล่านี้ และแต่ละประเด็นยังคงใช้ได้เมื่อแทนที่รายการอ้างอิงชั่วคราวของมันด้วยรายการจริง