
Članek
Metilensko modrilo in dušikov oksid: NOS, cGMP in žilno signaliziranje
Vprašanje se zdi preprosto: ali metilensko modrilo zavira dušikov oksid? V laboratoriju se odgovor razdeli na štiri ločena vprašanja, za vsako pa je potreben drugačen eksperimentalni preizkus. Njihovo zamenjevanje je glavni razlog, da so besedila o metilenskem modrilu in dušikovem oksidu videti samozavestna, a ostajajo nejasna.
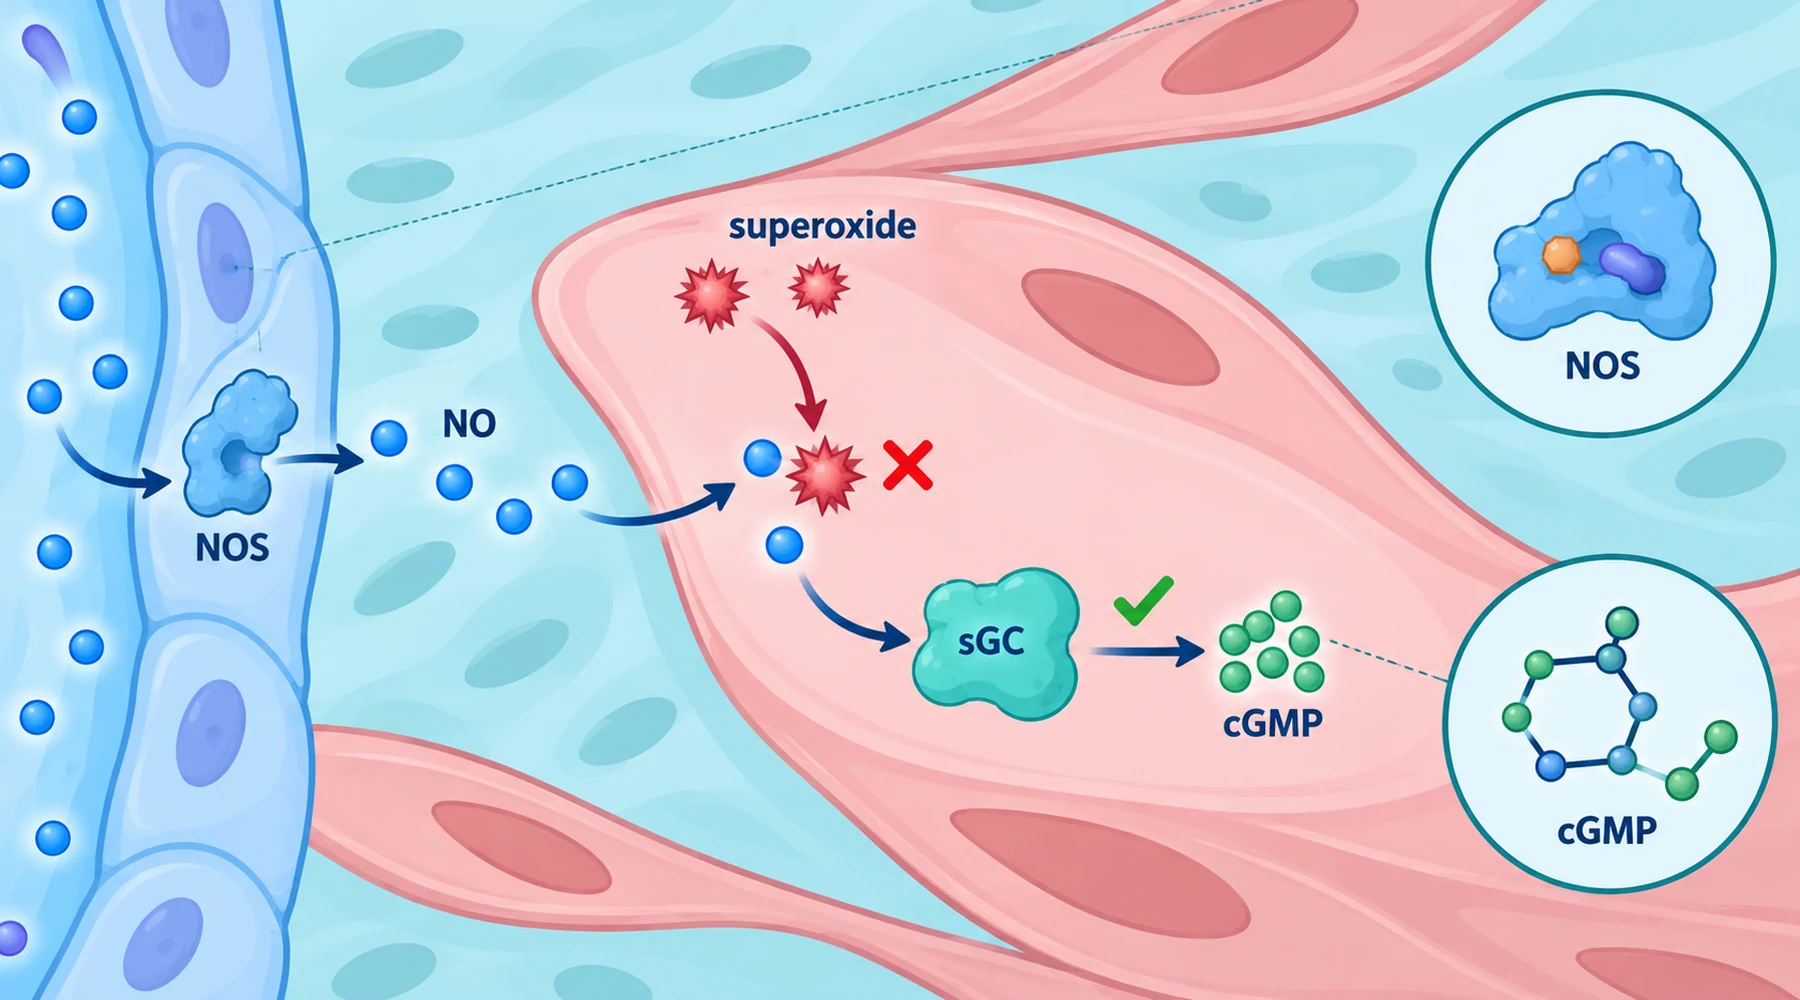
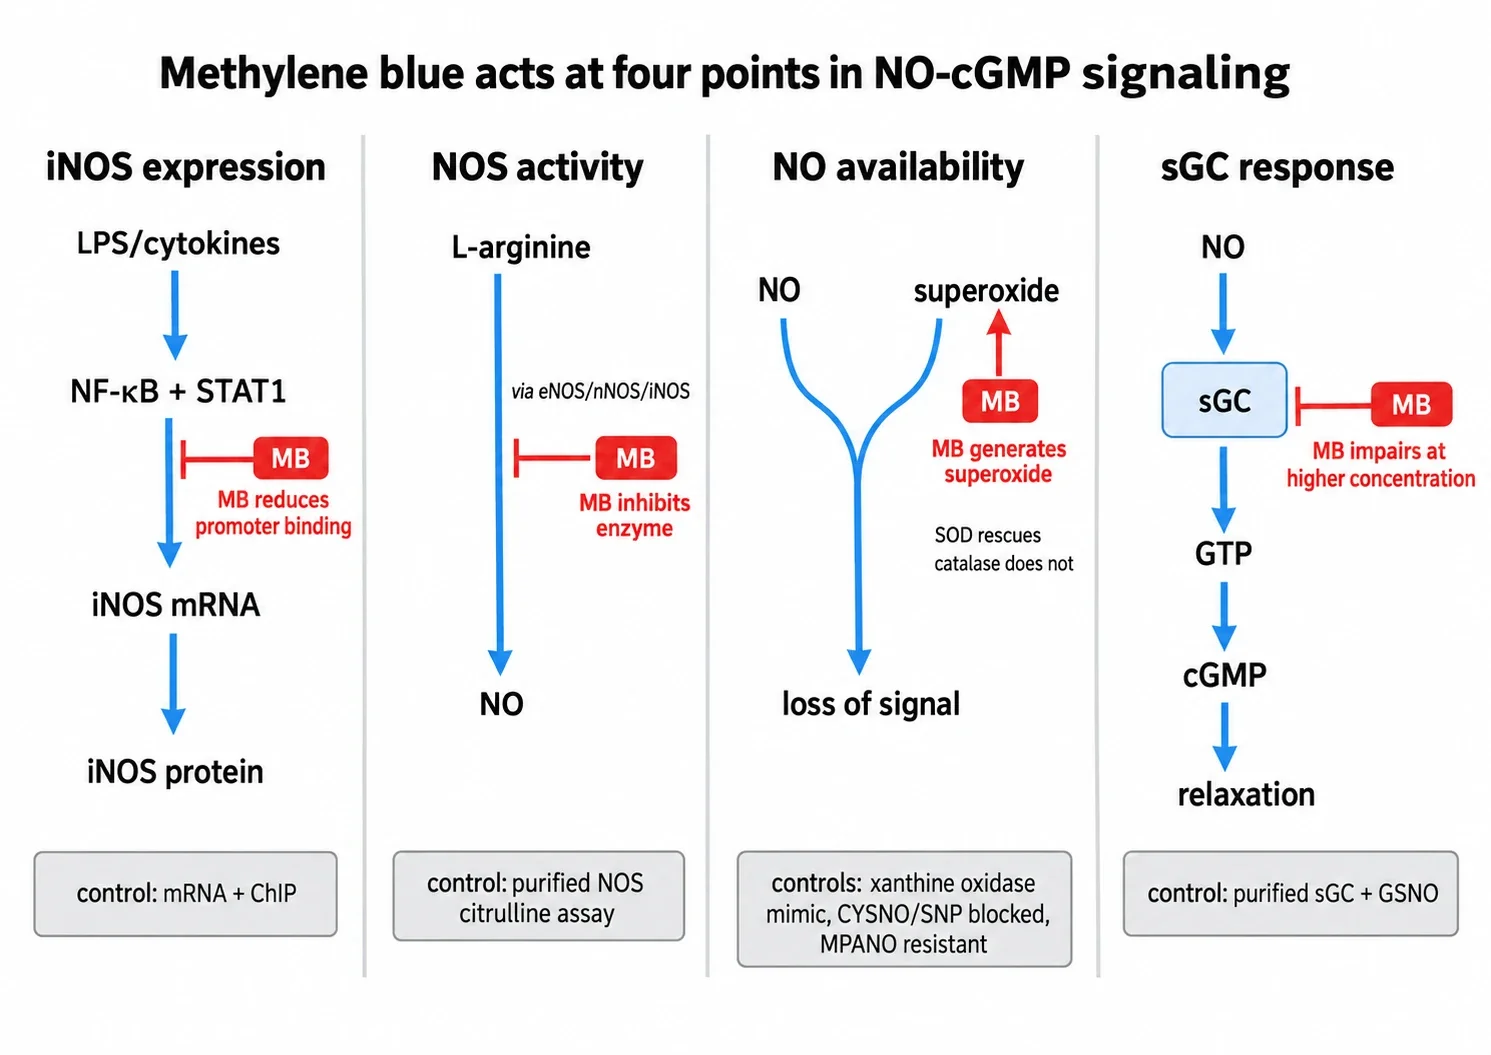
Signal dušikovega oksida si predstavljajte kot verigo s štirimi členi. Gen se prepiše, da nastane sintaza dušikovega oksida. Encim pretvori arginin v dušikov oksid. Plin difundira do svoje tarče, preden reagira s čim drugim. Topna gvanilat ciklaza ga zazna in tvori ciklični GMP. Za metilensko modrilo so objavljeni učinki na vsakem členu, vendar dokazi izhajajo iz različnih eksperimentalnih sistemov, različnih koncentracij in različnih izooblik. Rezultat pri enem členu ne dokazuje delovanja pri drugem.
Kanonična veriga, razložena preprosto
V steni krvne žile običajno zaporedje poteka takole. Dražljaj deluje na endotelijsko celico. Endotelijska sintaza dušikovega oksida, imenovana eNOS ali NOS3, ustvari majhen pulz dušikovega oksida. Plin difundira v sosednjo gladkomišično celico, se veže na hem z reduciranim železom v topni gvanilat ciklazi in pospeši pretvorbo GTP v ciklični GMP. Ciklični GMP aktivira proteinsko kinazo G, ravnanje celice s kalcijem se spremeni in mišica se sprosti.
Obstaja še druga veriga, ki jo je smiselno obravnavati ločeno. Med okužbo ali izpostavljenostjo citokinom celice prepisujejo gen za drug encim, inducibilno sintazo dušikovega oksida oziroma iNOS, imenovano tudi NOS2. Ta ustvarja večje in dolgotrajnejše tokove dušikovega oksida kot eNOS. Tretja izooblika, nevronska NOS oziroma nNOS, sodi v še drug kontekst. Kadar članek omenja sintazo dušikovega oksida, ne da bi navedel izoobliko, se ustavite in preverite, katero so merili. Pregled tega, kako metilensko modrilo prenaša elektrone, poudarja enako za redoks tarče na splošno: prenašalec sam po sebi ne naredi ničesar, izid pa določa partner na vsakem koncu.
Tudi izmerjeni ciklični GMP je skupni odčitek, ne neposredni encimski test. Njegova raven odraža sintezo s ciklazo, zmanjšano za razgradnjo s fosfodiesterazami, zlasti PDE5 v žilni gladki mišičnini. Padec cikličnega GMP torej pomeni, da je do detektorja prispelo manj signala. Sam po sebi pa ne pove, kateri člen je odpovedal.
Člen 1: nastane manj encima iNOS
V mišjih makrofagih, stimuliranih z bakterijskim lipopolisaharidom, interferonom gama ali obema, je metilensko modrilo preprečilo pričakovani porast beljakovine iNOS in močno zavrlo informacijsko RNA za iNOS v poskusih prepisovanja v makrofagih. Povedno je, kaj se ni spremenilo. Razgradnja zaviralca I kapa B alfa, fosforilacija NF kapa B in STAT1 ter premik teh dejavnikov v jedro so ostali večinoma nespremenjeni. Zmanjšala se je njihova vezava na DNA, kar je potrdila kromatinska imunoprecipitacija, ki je pokazala manjšo zasedenost promotorja iNOS.
To je učinek uravnavanja genov, ki nastopi pred spremembo količine encima, ne akutna blokada že obstoječega encima. Sodi v vnetno signaliziranje, pri katerem se morajo transkripcijski dejavniki vezati na promotor, preden nastane beljakovina. Neposredno ne pove ničesar o konstitutivni eNOS v mirujoči žili in tako ga je treba tudi opisati.
Člen 2: obstoječi encim NOS deluje počasneje
Raziskava na podganah je preizkusila drugo raven. Budni podganji samci so intravensko prejeli lipopolisaharid, nato pa tri ure pozneje intravensko še fiziološko raztopino ali metilensko modrilo v količini 3 mg na kg. Aktivnost sintaze dušikovega oksida v medialnem bazalnem hipotalamusu so merili s pretvorbo označenega arginina v citrulin v raziskavi aktivnosti hipotalamične NOS. Že stres skupaj s fiziološko raztopino je povzročil nekaj aktivnosti, neodvisne od kalcija, lipopolisaharid pa jo je povečal na približno desetkratno kontrolno raven. Metilensko modrilo je odpravilo obe inducirani komponenti. Konstitutivna aktivnost, odvisna od kalcija, se v tem tkivu pri tem odmerku in v tej časovni točki ni spremenila.
Ta rezultat berite natanko tako, kot je zapisan: v teh pogojih je bila izmerjena aktivnost tipa iNOS zavrta. To ni meritev izražanja genov in tudi ne dokaz stalne selektivnosti za iNOS v primerjavi z eNOS ali nNOS. Delo s prečiščenimi encimi še poudari potrebo po previdnosti. V neposrednih testih prečiščene sintaze dušikovega oksida je metilensko modrilo pri 30 mikromolarnih koncentracijah povsem blokiralo nastajanje citrulina, koncentracija za polovično zaviranje pa je bila približno 5.3 mikromolarna brez superoksidne dismutaze in 9.2 mikromolarna z njo, kot poroča primerjava prečiščene NOS in gvanilat ciklaze. Ločena raziskava prečiščene nNOS je pokazala na vlogo oksidacije hema, vezanega na encim. Praktični nauk je, da je neposredno zaviranje NOS v izoliranih sistemih resnično, vendar rezultata iz hipotalamusa ni mogoče razširiti v splošno trditev, da metilensko modrilo povsod ohranja vse konstitutivne NOS nedotaknjene.
Člen 3: dušikov oksid se izgubi, preden prispe
Najjasnejši dokaz, da lahko padec cikličnega GMP pojasni tudi nekaj drugega kot blokada encima, izhaja iz gojenih gladkomišičnih celic pljučnih arterij kuncev. Zasnova poskusa je povsem obšla endogeno NOS z neposrednim dodajanjem donorjev dušikovega oksida, nato pa preverila, ali metilensko modrilo še vedno zavira odziv cikličnega GMP v raziskavi superoksida v žilni gladki mišičnini.
Preizkusili so tri donorje pri koncentracijah od 1 do 100 mikromolarnih: S-nitrozo-L-cistein, natrijev nitroprusid in stabilen deaminiran analog, imenovan MPANO. Vsi so povečali ciklični GMP za približno 1.5- do 12-krat. Metilensko modrilo pri 10 mikromolarni koncentraciji je zavrlo učinek prvih dveh za 51 do 100 odstotkov, odziv na MPANO pa je ostal nespremenjen. Če bi metilensko modrilo preprosto blokiralo katalitično mesto ciklaze, bi bilo takšno selektivnost glede na donor težko pojasniti, saj vsi trije delujejo prek istega encima v nadaljevanju poti.
Trije kontrolni poskusi so nato mehanizem povezali s superoksidom. Prvič, nastajanje zunajceličnega superoksida s ksantinom in ksantin oksidazo je ponovilo isti vzorec: učinka CYSNO in nitroprusida sta bila blokirana, učinek MPANO pa ohranjen. Drugič, metilensko modrilo je v gladkomišičnih celicah povzročilo od odmerka in časa odvisno nastajanje superoksida, merjeno z redukcijo citokroma c. Tretjič, superoksidna dismutaza je zaviranje povsem preprečila, katalaza pa ne, kar v tem eksperimentalnem sistemu kaže na superoksid in ne na vodikov peroksid kot neposredno odgovorno zvrst.
Vredno je opisati tudi različico poskusa s sokulturo, ker prostorsko umesti učinek. Endotelijske celice na krovnih stekelcih so kratek čas gojili skupaj z gladkomišičnimi celicami, tako da je bazalno sproščeni endotelijski dejavnik povečal ciklični GMP v gladki mišičnini za tri- do osemkrat. Predhodna obdelava katerega koli od obeh celičnih predelkov z metilenskim modrilom je zmanjšala ta signal, superoksidna dismutaza pa je delno odpravila učinek predhodne obdelave endotelijskih celic. Z drugimi besedami, metilenskemu modrilu sploh ni treba delovati znotraj gladkomišične celice, ki zaznava signal. Signal lahko zmanjša tako, da odstrani prenašalno molekulo med potjo. Vodnik za branje raziskav metilenskega modrila to obravnava kot splošno pravilo: pred navedbo molekularne tarče navedite predelek, v katerem je bil izveden poseg.
To bi bilo napačno imenovati zaviranje NOS. Za delovanje donorjev korak s sintazo ni bil potreben, a je signal kljub temu upadel.
Člen 4: sam detektor se odziva manj
Neposredni učinki na topno gvanilat ciklazo obstajajo, vendar so koncentracije pomembne. V zgoraj navedeni primerjavi prečiščenih encimov je ciklaza, stimulirana z dušikovim oksidom, za polovično zaviranje potrebovala približno 60 mikromolarno koncentracijo metilenskega modrila, medtem ko je bila koncentracija za polovično zaviranje NOS približno 5 do 9 mikromolarna; celo 1 milimolarna koncentracija je povzročila le delno maksimalno blokado. To je približno šest- do enajstkratna razlika. Celičnega poskusa pri nizkih mikromolarnih koncentracijah, ki zmanjša ciklični GMP, zato ni mogoče označiti za selektivno zaviranje ciklaze zgolj na podlagi vrednosti cikličnega GMP.
Poznejša redoks raziskava je dodala še drugo opozorilo: metilensko modrilo je deaktiviralo ciklazo, aktivirano z dušikovim oksidom, po mehanizmu, ki se razlikuje od preproste oksidacije železa v hemu na zraku. Detektor je torej lahko prizadet, vendar kemijsko dogajanje še ni pojasnjeno, razlika v koncentracijah pa pomeni, da je pri izpostavljenosti nizkim mikromolarnim koncentracijam najprej smiselno izključiti učinke superoksida in NOS. Sem sodi tudi preverjanje vloge fosfodiesteraz. Če razgradnja ni bila izmerjena ali blokirana, je zmanjšano kopičenje cikličnega GMP skladno z manjšo sintezo, hitrejšo razgradnjo ali obojim.
Zakaj tega ni mogoče skrčiti na eno trditev o krvnem tlaku
Vsak člen je bil potrjen v drugačnem sistemu. Prepisovanje v makrofagih ni encimska aktivnost v hipotalamusu. Hipotalamična aktivnost po lipopolisaharidu ni endotelijski tonus v mirovanju. Bazalno sproščeni endotelijski dejavnik v sokulturi ni vazodilatacija, stimulirana z agonistom. Gojene celice pljučnih arterij pri 10 mikromolarni koncentraciji metilenskega modrila niso človeški krvni obtok. Če vse to združimo v trditev, kot je, da metilensko modrilo zviša krvni tlak z blokiranjem dušikovega oksida, zavržemo prav tiste razlike, ki naj bi jih kontrolni poskusi ohranili.
Tri preverjanja ohranjajo razlago korektno. Prvič, navedite izoobliko: eNOS za žilni tonus v mirovanju, iNOS za inducirani vnetni tok ter nNOS za nevronske sisteme in nekatere poskuse s prečiščenimi encimi. Drugič, navedite način dovajanja signala dušikovega oksida: endogena sinteza, bazalno endotelijsko sproščanje ali določen donor, kot so CYSNO, nitroprusid ali MPANO, saj je bil stabilni donor odporen proti metilenskemu modrilu, labilni pa ne. Tretjič, navedite koncentracijo in način odprave učinka: odprava učinka s superoksidno dismutazo kaže na vlogo superoksida, neučinkovitost katalaze govori proti vlogi vodikovega peroksida v tem eksperimentalnem sistemu, posnemanje učinka s ksantin oksidazo kaže, da ta mehanizem zadošča, testi s prečiščenimi encimi pa ločijo neposredne učinke na katalizo od izgub med prenosom.
Strnjen povzetek je naslednji. Metilensko modrilo je bolje obravnavati kot snov, ki na več mestih posega v signalno pot od dušikovega oksida do cikličnega GMP, kot pa kot selektivni zaviralec ciklaze. Glede na eksperimentalni sistem in koncentracijo lahko zmanjša vezavo transkripcijskih dejavnikov za iNOS, neposredno zavira encime NOS, z nastajanjem superoksida zmanjša razpoložljivost dušikovega oksida in oslabi delovanje ciklaze, aktivirane z dušikovim oksidom. Vloga signaliziranja s cikličnim GMP v žilnih raziskavah in primerjava donorjev dušikovega oksida, uporabljenih v celičnih testih podrobneje obravnavata vsaka po eno od teh vej, metode za ločevanje redoks učinkov od učinkov na encime pa pojasnjujejo, zakaj se v tej literaturi tako pogosto pojavlja kombinacija superoksidne dismutaze, katalaze in kontrolnega poskusa s stabilnim donorjem.
Nizka vrednost cikličnega GMP po metilenskem modrilu kaže na pretrgano verigo. Le kontrolni poskusi povedo, kateri člen se je pretrgal.