
Статья
Метиленовый синий для окрашивания ДНК и РНК: гели и применение на мембранах
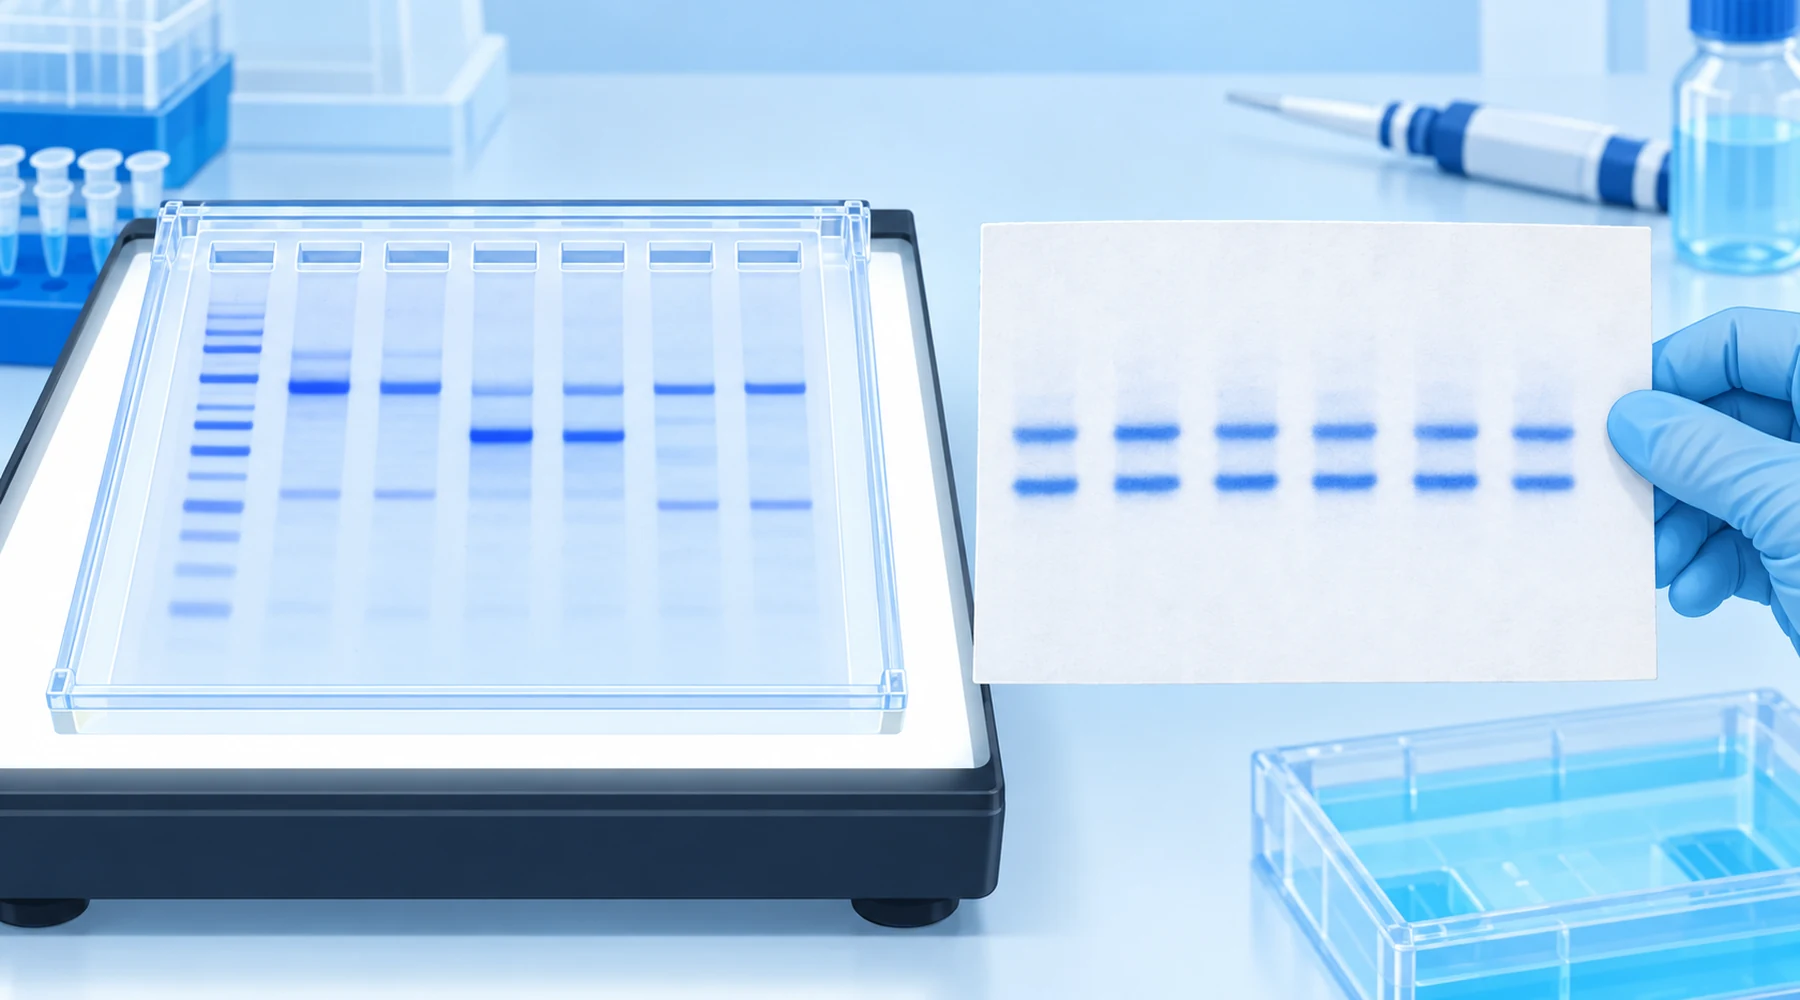
Студент запускает агарозный гель, окрашивает его метиленовым синим и не видит ничего там, где ожидалась яркая полоса. В соседней зоне постдок окрашивает той же синей бутылкой Northern-мембрану и получает четкие рибосомальные полосы за три минуты. Студент делает вывод, что гель не сработал. Гель не был неисправен. Задачи были разными, и один и тот же краситель отвечает на них с разной чувствительностью, разным фоном и разными правилами дальнейших действий.
Окрашивание ДНК метиленовым синим и окрашивание РНК метиленовым синим используют одинаковую химию, но имеют разные цели. В геле краситель показывает, сколько нуклеиновой кислоты находится внутри пористой матрицы. На мембране он показывает, прошел ли перенос и были ли дорожки загружены равномерно. После понимания этого различия протоколы, пределы обнаружения и ограничения совместимости становятся понятными.
Краткий ответ
Метиленовый синий — это плоский катионный краситель, который нековалентно и обратимо связывается с нуклеиновыми кислотами через сочетание электростатического притяжения к фосфатам, интеркаляции между парами оснований и ассоциации с малой бороздкой. Обратимость является ключевым свойством. Полосы можно окрасить при видимом свете, задокументировать, а затем обесцветить или очистить для клонирования, гибридизации или повторного зондирования.
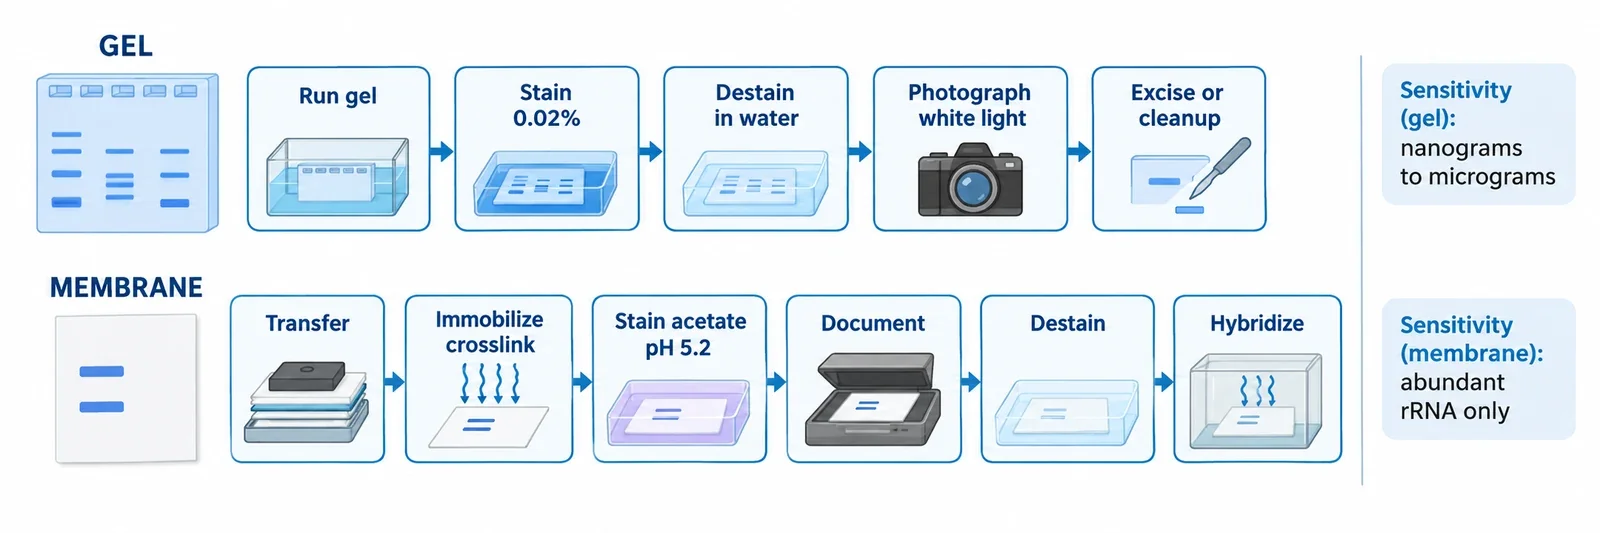
Для окрашивания агарозного геля метиленовым синим с двухцепочечной ДНК стандартный быстрый рецепт — 0,02 процента мас./об. (200 микрограммов на мЛ) в воде, около 15 минут окрашивания и около 15 минут обесцвечивания водой, с просмотром на белом световом столе. Для мембран классический рецепт Northern-блота — 0,02–0,04 процента красителя в ацетате натрия около pH 5,2, несколько минут окрашивания после переноса и иммобилизации, затем промывка водой и полное обесцвечивание перед гибридизацией. Чувствительность умеренная: десятки–сотни нанограммов на полосу геля при хороших условиях, а консервативные руководства указывают 0,5–1 микрограмм. Это на порядки выше, чем у этиленбромида и красителей SYBR. На мембранах не существует единого полезного предела обнаружения отдельного транскрипта, поскольку окрашивание в основном показывает обильную рибосомальную РНК и общий загруженный материал. Не заменяйте ни один из этих рецептов раствором добавки для розничной продажи. Валидированные методы предполагают аналитический класс красителя, определенные буферы и условия без РНКаз, когда используется РНК.
Как работает связывание и где оно может вводить в заблуждение
Полезная модель состоит из трех частей. Во-первых, положительно заряженная кольцевая система притягивается к отрицательно заряженному фосфатному остову. Спектроскопические исследования показывают, что этот электростатический компонент доминирует при низкой концентрации соли, тогда как моделирование и молекулярная динамика сохраняют интеркаляцию и связывание с малой бороздкой как стабильные режимы для двухцепочечной ДНК, что описано в спектроскопическом исследовании связывания метиленового синего с ДНК. Во-вторых, существует некоторая предпочтительность к GC, причем моделирование указывает на предпочтение шагов CpG и GpC, а эксперименты сообщают о преимущественной ассоциации с GC-богатыми дуплексами в работе о предпочтениях интеркаляции метиленового синего, однако AT-дуплексы также связываются. Обычное окрашивание не является специфичным к последовательности. В-третьих, одноцепочечная ДНК и РНК связываются главным образом посредством электростатики и стекинга с доступными основаниями и участками дуплексов, поэтому интенсивность окрашивания зависит от длины, последовательности и вторичной структуры.
Следуют два вывода. Поскольку связывание нековалентное, краситель вымывается. Полосы в полиакриламидном геле быстро бледнеют, если их специально не фиксировать, и отдельный вариант постоянной фиксации существует именно потому, что обычное окрашивание является временным, как описано Soto и Draper для PAGE-гелей. Поскольку краситель является фотосенсибилизатором, длительное яркое освещение окрашенной ДНК в присутствии кислорода может окислять гуанин и в конечном итоге разрывать цепи — механизм подробно описан в работе о окислении гуанина, сенсибилизированном метиленовым синим. Краткий просмотр при белом свете позволяет избежать хорошо известного повреждения УФ-светом в классических протоколах с этиленбромидом, и это преимущество действительно важно для препаративного выделения. Видимый свет мягче, но не безвреден. Сокращайте время освещения, если ДНК будет клонироваться. О более широкой фотохимии, лежащей в основе этого предупреждения, см. два пути фотохимии метиленового синего. О редокс-паре и состояниях заряда, объясняющих, почему окисленная форма связывается, а восстановленная — нет, см. химию структуры и свойств метиленового синего.
Задача первая: окрашивание внутри гелей
Окрашивание геля отвечает на один вопрос: достаточно ли нуклеиновой кислоты в этой полосе, чтобы ее увидеть невооруженным глазом. Двухцепочечная ДНК в агарозе — наиболее изученный случай. Оригинальный метод окрашивания агарозного геля метиленовым синим Флореса и коллег подтвердил быстрый протокол с 0,02 процента на 1-процентном агарозном геле и показал успешное последующее выделение и клонирование. Тот же протокол поставщика приведен на странице продукта метиленового синего IBI Scientific, где рецепты для мембран с 0,04 процента и быстрого окрашивания геля представлены рядом.
Практический рабочий процесс:
- Запустите гель обычным способом. Окрашивайте после электрофореза, а не во время него, если перенос или разрешение не были валидированы для измененного метода.
- Погрузите в 0,02 процента мас./об. метиленового синего в дистиллированной воде при мягком перемешивании примерно на 15 минут.
- Обесцвечивайте несколькими сменами воды, около 15 минут всего, пока фон матрицы не уменьшится и полосы не станут заметными.
- Немедленно сфотографируйте на белом световом источнике.
Агароза и полиакриламид ведут себя по-разному. Агароза удерживает краситель в матрице, поэтому обесцвечивание является медленным этапом. Тонкие полиакриламидные гели окрашиваются быстро, но также быстро теряют краситель, что помогает препаративному вырезанию и ухудшает архивное хранение. Синтетические олигонуклеотиды в полиакриламиде можно обнаруживать тем же рецептом 0,02 процента за 20–30 минут с повторными промывками водой, следуя установленным методам PAGE в стиле Current Protocols. Очень разбавленные варианты около 0,0002 процента в разбавленном TBE были описаны для препаративных олигонуклеотидов в течение нескольких часов, но база доказательств слабее.
ДНК и РНК имеют значение. Двухцепочечная ДНК дает наиболее сильное структурированное связывание. РНК и одноцепочечная ДНК окрашиваются, но слабее и менее предсказуемо. Для РНК-гелей с формальдегидом большинство лабораторий пропускают окрашивание синим внутри геля и сначала переносят РНК на мембрану. Это заменяет слабый сигнал в геле на более четкий сигнал на мембране плюс контроль загрузки.
Задача вторая: окрашивание на мембранах
Окрашивание мембраны отвечает на другой вопрос: прошел ли перенос и сопоставимы ли дорожки. Классическое применение — обратимое окрашивание Northern-блота по Herrin и Schmidt, изначально 0,04 процента красителя в 50 мМ ацетата натрия при pH 5,0 в течение 2–3 минут с промывкой водой, удаляемое разбавленным SDS в SSPE перед гибридизацией.
Широко используемый современный вариант выглядит так:
- Перенесите РНК или денатурированную ДНК на нейлон или нитроцеллюлозу, затем иммобилизуйте УФ-сшиванием или запеканием, чтобы образец не потерялся во время окрашивания.
- Необязательно, но часто используется: смочите мембрану в 5 процентах уксусной кислоты примерно на 15 минут.
- Окрасьте в течение 5–10 минут в 0,02–0,04 процента метиленового синего в 0,3–0,5 M ацетате натрия около pH 5,2.
- Промойте и обесцветьте в воде 5–15 минут, задокументируйте, затем удалите остаточный краситель перед гибридизацией.
Положительно заряженный нейлон доминирует в Northern-работе. Нитроцеллюлоза также работает с тем же протоколом уксусной кислоты и ацетата. Изображение используется для подтверждения переноса, сравнения полос 28S и 18S (или 23S и 16S для бактериальной РНК), маркировки лестниц и стандартов, а также ведения приблизительной записи нормализации общей РНК. Опубликованные методы Northern количественно оценивают окрашенные рибосомальные полосы для проверки загрузки, включая работу в области молочной науки, где использовались рибосомальные полосы метиленового синего для нормализации. Southern-мембраны можно визуализировать таким же способом, но краситель гораздо более распространен как проверка загрузки и переноса в Northern-анализе, а Southern-ДНК денатурируется перед переносом, поэтому показатели чувствительности геля не переносятся напрямую.
Пределы обнаружения и фон: где синий проигрывает
Сравнение ниже намеренно является приблизительным. Эффективность окрашивания зависит от процента геля, ширины полос, оптики и качества обесцвечивания. Рассматривайте каждое число как порядок величины, а не как спецификацию.
| Краситель и формат | Приблизительное обнаружение на полосу | Интерпретация |
|---|---|---|
| Метиленовый синий, dsDNA в агарозе | 40–250 нг при оптимизации; 0,5–1 микрограмм консервативно | Достаточно для препаративных загрузок и учебных гелей. Слаб для следовых полос. |
| Метиленовый синий, короткая ssDNA или РНК или олигонуклеотиды в PAGE | Примерно 0,1–0,5 микрограмма | Зависит от длины и структуры. Универсального предела нет. |
| Этиленбромид, dsDNA в агарозе | Около 1–10 нг | Примерно в четыре раза чувствительнее оптимизированного синего метода в сравнении Флореса. Требуется УФ. |
| SYBR Green I, dsDNA | Около 60 пг | Требуется флуоресцентная визуализация. |
| SYBR Gold, ДНК и РНК | Около 25 пг | Более чем в десять раз чувствительнее этиленбромида в нескольких форматах. |
| Серебряное окрашивание, PAGE нуклеиновых кислот | Около 0,3–0,9 нг; сообщалось о 100 пг РНК в оптимизированной последовательности от синего к серебряному окрашиванию | Очень чувствительно, но химически сложное и плохо подходит для выделения. |
| Толуидиновый синий, PAGE РНК и олигонуклеотиды | Сотни нг рабочих количеств, около 250 нг документировано | Видимый свет, как у метиленового синего, но без стандартизированного предела, сопоставимого со спецификациями SYBR. |
Контроль фона определяет, будет ли умеренный сигнал пригоден. Свободный краситель имеет интенсивный цвет, поэтому контраст достигается удалением несвязанного красителя без удаления связанного. Более концентрированное окрашивание редко повышает чувствительность. Оно в основном увеличивает время обесцвечивания. Проведите серию разведений на конкретном геле, мембране и камере и используйте только диапазон, где интегральная плотность остается пропорциональной входному количеству. Метиленовый синий поддерживает полуколичественную нормализацию загрузки. Это не количественный анализ с широким динамическим диапазоном, поскольку емкость мембраны, эффективность переноса, насыщение и обесцвечивание различаются между дорожками.
Ограничения совместимости: что сохраняется после окрашивания
Клонирование после окрашивания синим продемонстрировано. Флорес и коллеги вырезали окрашенные полосы агарозного геля, извлекали ДНК и лигировали и трансформировали ее, сообщая о лучшем клонировании по сравнению с этиленбромидом и УФ. Вероятная причина — меньшее фотоповреждение, а не преимущество самого красителя. Сокращайте воздействие белого света и пропускайте выделенную ДНК через обычную очистку из геля.
Для ПЦР и секвенирования доказательств меньше. Остаточный краситель связывается с нуклеиновыми кислотами, поэтому перед ферментативными этапами проводите обесцвечивание и очистку. Ожидается, что правильно очищенная ДНК из синего геля будет работать, но переносимость остатков между различными полимеразами и химиями секвенирования изучена недостаточно.