
Статья
Метиленовый синий и аутофагия: AMPK, mTOR и эксперименты с нейронами
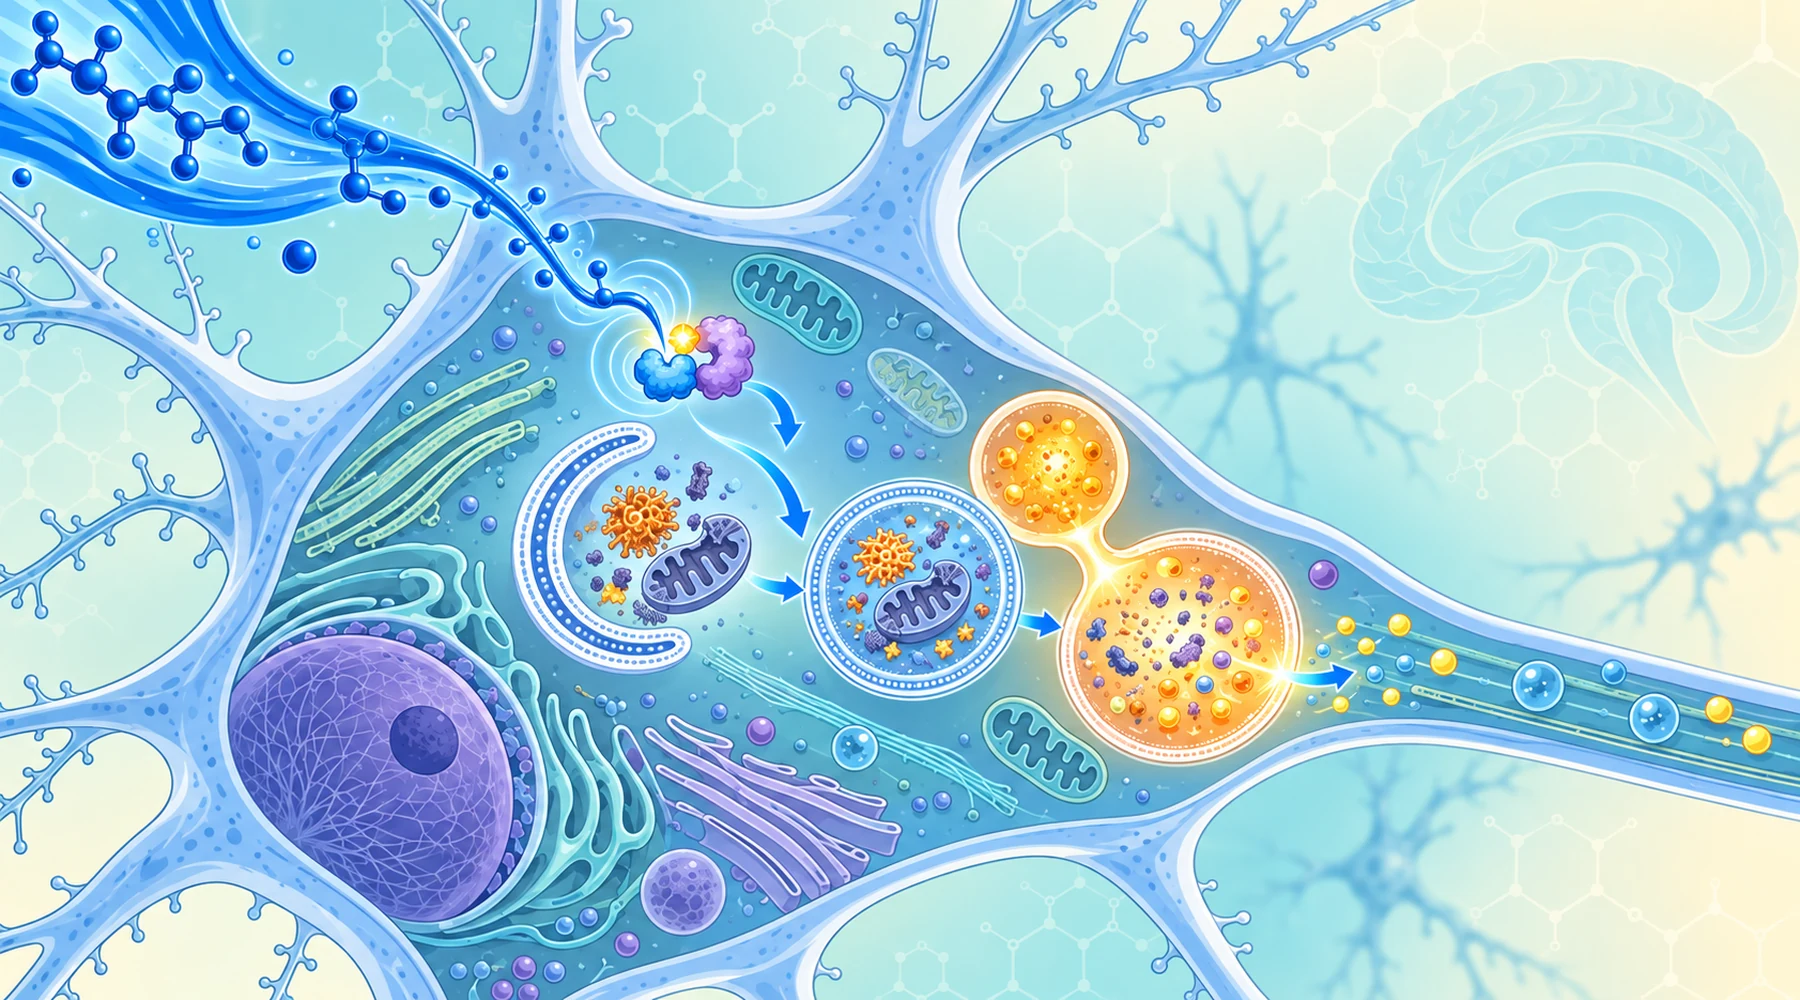
Представьте, что вы проводите клеточный эксперимент, добавляете метиленовый синий и видите, что белковая полоса под названием LC3-II становится темнее на вашем блоте. Возникает соблазн заявить, что соединение «усиливает аутофагию», и на этом остановиться. Такая интерпретация преждевременна. Более темная полоса LC3-II может означать, что клетка создает больше везикул очистки, или же что эти везикулы накапливаются из-за нарушения этапа утилизации. Эти две интерпретации указывают в противоположных направлениях, и литература по метиленовому синему в нейронах содержит примеры обоих типов данных. В этой статье рассматривается, что именно измерялось в каждом анализе.
Макроаутофагия, форма аутофагии, изучаемая здесь, — это концепция массовой переработки клеточных компонентов. Мембранный мешок под названием фагофор растет вокруг изношенных белков и органелл, замыкается в аутофагосому, сливается с лизосомой, а его содержимое разрушается и высвобождается для повторного использования. Нейроны зависят от этого процесса, поскольку они не делятся и не могут разбавлять поврежденные компоненты путем деления. Когда переработка останавливается, отходы накапливаются. Когда она работает, клетка восстанавливает строительные блоки в условиях стресса.
Что показал один эксперимент с гиппокампом
Основное исследование индукции использовало клетки гиппокампа мыши HT22, подвергнутые стрессу из-за лишения сыворотки в течение 24 часов — условия, при котором удаляются факторы роста и трофические сигналы, что запускает как апоптоз, так и аутофагию. Исследователи сообщили, что метиленовый синий снижал гибель клеток в зависимости от дозы, и что эта защита сопровождалась признаками макроаутофагии.
Цепочка маркеров была специфичной. Диффузное окрашивание LC3B перераспределялось в перинуклеарные точки примерно начиная с 20 нМ метиленового синего, при этом наиболее сильная реакция LC3-I и LC3-II наблюдалась около 1 мкМ. Уровни LC3B-I и LC3B-II повышались зависимо от дозы и времени. Важно, что команда пошла дальше статического блот-анализа LC3. Они добавили 10 мкМ хлорохина, который блокирует лизосомный клиренс, и обнаружили более высокий уровень LC3-II вместе со стабилизированным p62 в клетках, обработанных метиленовым синим. Такой паттерн поддерживает лизосомозависимый оборот, а не простое накопление. Они также показали, что хлорохин частично обращал антиапоптотический эффект, что связывает защиту с путем аутофагии и лизосом в этой модели.
Результат, связанный с передачей сигналов, чаще всего цитируется неточно. Сигнализация AMPK, определяемая по фосфорилированному AMPK и его нижестоящей мишени — фосфорилированному ACC, повышалась через 12 и 24 часа зависимо от дозы. Ингибитор AMPK Compound C, применяемый в концентрации 20 мкМ в течение последних 4 часов, снижал как фосфорилирование ACC, так и активацию LC3. Фосфорилированный mTOR, напротив, не демонстрировал обнаружимого подавления. Таким образом, в стрессированных клетках гиппокампа результатом была индукция, связанная с AMPK, через, по-видимому, независимый от mTOR путь. Та же закономерность наблюдалась у живых мышей, где лечение метиленовым синим индуцировало маркеры макроаутофагии в коре и гиппокампе.
Индукция не является завершенным потоком
Здесь различие между понятиями наиболее важно. Индукция означает, что вышестоящий клеточный механизм создает больше аутофагосом. Поток означает, что содержимое проходит весь путь: захват, созревание, слияние с лизосомой, разрушение и переработку. Любое повышение LC3-II является утверждением об индукции до тех пор, пока тест потока не подтвердит остальные этапы процесса.
Стандартный тест потока измеряет LC3-II с кратковременной лизосомной блокадой, например с использованием бефиломицина A1 или хлорохина, и без нее. Если лечение действительно ускоряет образование, блокирование разрушения должно привести к еще большему повышению LC3-II. Тандемный репортер mCherry-GFP-LC3 дает дополнительный угол анализа: структуры светятся желтым до слияния с лизосомой и только красным после того, как кислота подавляет сигнал GFP, поэтому увеличение количества только красных точек поддерживает переход в кислые аутофаголизосомы. Снижение уровня белка p62 может подтверждать оборот содержимого, с оговоркой, что транскрипция p62 сама реагирует на стресс и должна проверяться на уровне мРНК.
Ниже приведен список, сопоставляющий каждый анализ, использованный в этой литературе, с тем, что он измеряет и что не может доказать сам по себе. Читатели могут применять его к любому будущему утверждению о макроаутофагии, включая аргументы о голодании и долголетии, которые используют эти маркеры.
| Анализ | Что он измеряет | Что он не может доказать сам по себе |
|---|---|---|
| Уровень LC3B-I | Размер пула цитозольного предшественника, доступного для липидирования | Активность аутофагии; синтез и обработка также изменяют его |
| Уровень LC3B-II | Количество мембранно-связанного LC3 на аутофагических структурах | Завершенный поток; повышение может означать более быстрое образование или блокирование очистки |
| Точки LC3 и перинуклеарная агрегация | Перераспределение LC3 в везикулярные структуры | Направление изменения; статические изображения не могут отличить ускорение от затора |
| LC3-II с хлорохином или бефиломицином A1 и без них | Продолжают ли образовываться новые аутофагосомы при блокировании очистки | Полное разрушение содержимого; требуется кратковременное оптимизированное воздействие ингибитора |
| Уровень белка p62 | Оборот адаптера содержимого, который обычно разрушается в аутофаголизосомах | Чистый поток; стрессовые пути также регулируют транскрипцию p62 |
| Тандемный репортер mCherry-GFP-LC3 | Переход в кислые аутофаголизосомы (сдвиг от желтого к только красному) | Полное разрушение каждого типа содержимого |
| Фосфо-AMPK и фосфо-ACC | Включение сенсора энергетического стресса и его выходного сигнала | Что аутофагия вызвала эффект выживания; AMPK контролирует множество метаболических ветвей |
| Фосфо-mTOR, p70S6K, 4EBP1 | Активность пути передачи сигналов роста, который ограничивает аутофагию | Поток; это вышестоящие сигналы разрешения, а не показатели утилизации |
Обратите внимание на одну ловушку в формулировках, которую предотвращает таблица. Фосфорилированный ACC является ферментативно ингибированной формой. Его повышение демонстрирует активность AMPK, а не активацию ACC.
Фраза «ингибирование макроаутофагии устранило нейропротекцию» требует такой же точности. В модели HT22 это означает, что вмешательство в путь аутофагии и лизосом устранило преимущество метиленового синего для выживания при лишении сыворотки. Это поддерживает роль аутофагии как необходимого или способствующего фактора в этой чашке клеток. Это не доказывает, что аутофагия является единственным защитным механизмом соединения, не доказывает, что хлорохин действует исключительно через аутофагию, и для усиления причинного вывода потребовались бы генетические вмешательства в ATG5, ATG7 или ULK1.
Два пути к одному механизму
Упрощенная карта помогает понять процесс. Энергетический стресс повышает AMPK, AMPK активирует комплекс ULK1, и начинается аутофагия. Факторы роста и питательные вещества повышают mTORC1, mTORC1 ингибирует ULK1, и аутофагия остается выключенной. Ниже ULK1 комплекс Beclin-1 и VPS34 инициирует образование фагофора, LC3-I липидируется до LC3-II, аутофагосома замыкается, сливается с лизосомой, а содержимое разрушается с оборотом p62.

Диаграмма размещает каждый результат исследования метиленового синего на этой карте: результат с гиппокампом рядом с ветвью AMPK, результат с клетками-предшественниками рядом с ветвью mTOR.
Такое представление устраняет кажущееся противоречие со вторым исследованием Xie. В пролиферирующих нейральных клетках-предшественниках крысы отдельный эксперимент показал, что 5 мкМ метиленового синего подавляли пролиферацию и способствовали переходу в состояние покоя, при этом количество Ki67-положительных клеток снижалось на 1-й и 3-й дни, тогда как сохраненная нейрональная дифференцировка оставалась неизменной. Там механизм проходил через подавление сигнализации mTOR: снижение общего mTOR и фосфорилированного mTOR вместе с более низкой экспрессией p70S6K и 4EBP1, а также снижением регуляции циклинов E1, B1, D1 и D2. Доминирующим фенотипом было состояние покоя клеток-предшественников, которое авторы связали с задержанной сенесценцией, а не с восстановлением стрессированных клеток гиппокампа.
Противоречия между двумя статьями нет. AMPK и mTOR являются контекстно-зависимыми интеграторами, а не фиксированными переключателями. Клетка, похожая на нейрон и находящаяся в состоянии стресса, может активировать AMPK без измеримого подавления mTOR, тогда как клетка-предшественник, стимулированная митогенами, может реагировать на то же соединение снижением mTOR-зависимого механизма роста. Тип клетки, контекст стресса, концентрация и временная точка определяют, какая ветвь становится доминирующей. Поэтому митохондриальные энергетические и окислительно-восстановительные эффекты метиленового синего также относятся к общей картине: как описывает механистический обзор нейропротекции, соединение действует как альтернативный переносчик электронов, участвует в антиоксидантной и антиапоптотической сигнализации, ингибирует MAO и NOS и связано с обновлением митохондрий через биогенез и аутофагию. Аутофагия является одной из ветвей плейотропного профиля, а не всей историей.
Что эксперименты не показывают
Лишение сыворотки моделирует трофический и метаболический стресс в чашке. Оно не моделирует голодание всего организма: глюкоза, аминокислоты и соли остаются в базовой среде, а пищевое поведение отсутствует. Клеточные концентрации от 20 нМ до 5 мкМ нельзя переводить в человеческие дозы путем простого расчета, поскольку всасывание, связывание с белками, окислительно-восстановительное состояние, метаболизм, накопление в тканях и время воздействия различаются.
Ни одно клиническое исследование на людях не было разработано для демонстрации индуцированного метиленовым синим потока аутофагии у пациентов. Механистические данные остаются на уровне клеточных, ex vivo и животных исследований, а обзоры по-прежнему описывают трансляционные данные как предварительные. Поэтому эти исследования не показывают, что метиленовый синий воспроизводит голодание, увеличивает продолжительность жизни человека через аутофагию или завершает поток аутофагии в человеческом мозге. Утверждения о миметиках голодания и долголетии требуют собственных клинических данных, а исследования метиленового синего у людей по другим показаниям не становятся исследованиями аутофагии только из-за связи с этой темой. Исследования моделей стресса питательных веществ и долголетия следует рассматривать с учетом этого ограничения.
В следующей статье применяйте этот список проверки по порядку. Сначала спросите, какая ветвь изменилась: AMPK, mTOR или ни одна из них. Затем проверьте, был ли результат LC3 подтвержден тестом потока или остается самостоятельным наблюдением. После этого выясните, устранило ли блокирование пути наблюдаемый эффект и каким методом. Исследование, отвечающее на все три вопроса, обеспечивает сильное механистическое утверждение. Исследование, отвечающее только на первый вопрос, показало лишь сигнал разрешения, а остальные этапы процесса остаются не изученными.