
Artykuł
Błękit metylenowy i hormeza: dlaczego krzywe dawka–odpowiedź mogą zmieniać kierunek
Jeden szczur otrzymuje 4 miligramy błękitu metylenowego na kilogram po nauce rozpoznawania przedmiotu i następnego dnia go pamięta. Inny otrzymuje 50 i ledwie porusza swoim kołem do biegania. Cząsteczka jest ta sama. Kierunek działania — nie. Każdy, kto przeczytał więcej niż kilka publikacji o błękicie metylenowym, zetknął się z takim odwróceniem efektu. Ma ono nazwę: hormeza, czyli dwufazowa odpowiedź, w której mała i duża ekspozycja zmieniają ten sam punkt końcowy w przeciwnych kierunkach.
Ta nazwa jest przydatna tylko wtedy, gdy wiadomo, co oznacza, a czego nie obiecuje. W tym artykule omawiamy cztery opublikowane zbiory danych dotyczących błękitu metylenowego, każdy z własnym punktem końcowym, zakresem stężeń i układem doświadczalnym, oraz pokazujemy, dlaczego chemia tego barwnika pozwala oczekiwać takich odwróceń. Na koniec przedstawiamy ostrzeżenie, które jednoznacznie wynika z danych: krzywa osiągająca maksimum w jednym eksperymencie jest opisem tego eksperymentu, a nie metodą wyboru indywidualnej dawki.
Ten wzorzec ma nazwę, a jej znaczenie jest węższe, niż się wydaje
Termin hormeza wprowadzili w 1943 roku Southam i Ehrlich, a jego współczesną postać ilościową nadali mu Calabrese i Baldwin: adaptacyjna odpowiedź dwufazowa, powstająca bezpośrednio lub w wyniku kompensacji po zaburzeniu homeostazy. Warto zauważyć, czego w tej definicji brakuje. Nie ma w niej słowa „korzystna”. Hormeza oznacza, że krzywa zmienia kierunek — i nic więcej.
Widoczny kształt zależy od tego, jaki punkt końcowy znajduje się na osi pionowej. Gdy jest nim pozytywna funkcja, taka jak aktywność enzymu, zużycie tlenu czy wynik testu pamięci, pobudzenie przy małej dawce, po którym następuje hamowanie przy dużej, tworzy odwrócone U. Gdy punkt końcowy jest czymś niepożądanym, na przykład częstością występowania choroby, ograniczenie przy małej dawce, po którym następuje nasilenie przy dużej, tworzy J lub U. Ta sama zależność, inna rzędna. Większość badań nad błękitem metylenowym mierzy pozytywne funkcje, dlatego w tym artykule mowa o krzywych w kształcie odwróconego U, przy czym użyta litera alfabetu wynika ze sposobu przedstawienia danych na wykresie.
Przegląd z 2008 roku, w którym zebrano odpowiedzi hormetyczne na błękit metylenowy, konkretyzuje skalę tego zjawiska. W badaniach zachowania, fizjologii i biochemii odpowiedzi w strefie pobudzenia osiągają około 130 do 160 procent wartości kontrolnej, średnio blisko 140, po czym wraz z dalszym wzrostem dawki spadają do poziomu kontrolnego, a następnie poniżej niego. Ten zakres jest podsumowaniem wielu eksperymentów, a nie właściwością cząsteczki. Każda z poniższych krzywych ma własne maksimum wyrażone we własnych jednostkach.
Dlaczego właśnie ta cząsteczka może odwracać kierunek działania
Błękit metylenowy nie jest prostym donorem elektronów. Jest odwracalnym przenośnikiem. Utleniona, niebieska forma przyjmuje elektrony i staje się bezbarwną formą zredukowaną, a forma zredukowana może przekazywać te elektrony dalej. Przekazywanie elektronów stojące za tymi krzywymi opisano w omówieniu tego, jak błękit metylenowy przenosi elektrony. Właśnie ten mechanizm przenoszenia jest tutaj kluczowy.
Przy małych stężeniach taki cykl zapewnia oddychaniu alternatywną drogę. Zredukowany barwnik może ulegać utlenieniu przy udziale oksydazy cytochromowej, końcowego enzymu łańcucha transportu elektronów, zwiększając szybkość jej reakcji wraz ze zużyciem tlenu i zdolnością oddechową. Przy większych stężeniach ta sama chemiczna skłonność do przyjmowania elektronów zaczyna konkurować z normalnym łańcuchem, zamiast go wspomagać: kieruje elektrony poza ich zwykłą drogę, bezpośrednio zużywa tlen i wytwarza reaktywne formy tlenu zamiast użytecznej energii. Niewielka ilość katalitycznego przenośnika — większy przepływ; nadmiar konkurencyjnego odbiorcy — mniejszy. Chemia sprawia, że zmiana kierunku jest prawdopodobna, choć nie gwarantuje, gdzie jakikolwiek konkretny punkt końcowy osiągnie maksimum.
Niezależnych dowodów na zależność od stężenia dostarczają komórki, które w ogóle nie mają mitochondriów. W eksperymentach z erytrocytami z 1976 roku małe stężenie 1 mikromola na litr pobudzało szlak monofosforanów heksoz mechanizmem silnie zależnym od oksyhemoglobiny, natomiast stukrotnie większe stężenie 0.1 milimola na litr było niemal niewrażliwe na obecność oksyhemoglobiny i wytwarzało nadtlenek wodoru, co wykazały wszystkie trzy zastosowane metody oznaczania. Ten sam barwnik, dwa mechanizmy rozdzielone stężeniem. Erytrocyty nie mogą prowadzić oddychania, więc nie jest to krzywa mitochondrialna, ale pokazuje, że chemia redoks barwnika zmienia charakter wraz ze wzrostem stężenia — a tego właśnie wymaga wyjaśnienie dotyczące mitochondriów.
Cztery krzywe, cztery układy doświadczalne
Poniższa ilustracja przedstawia na nowo cztery zbiory danych obok siebie. Każdy panel zachowuje własne osie i warunki, ponieważ nałożenie ich na jedną skalę byłoby pierwszym przekłamaniem w tym artykule. Rysunek jest schematyczny; dokładne wartości i warunki podano w tekście.
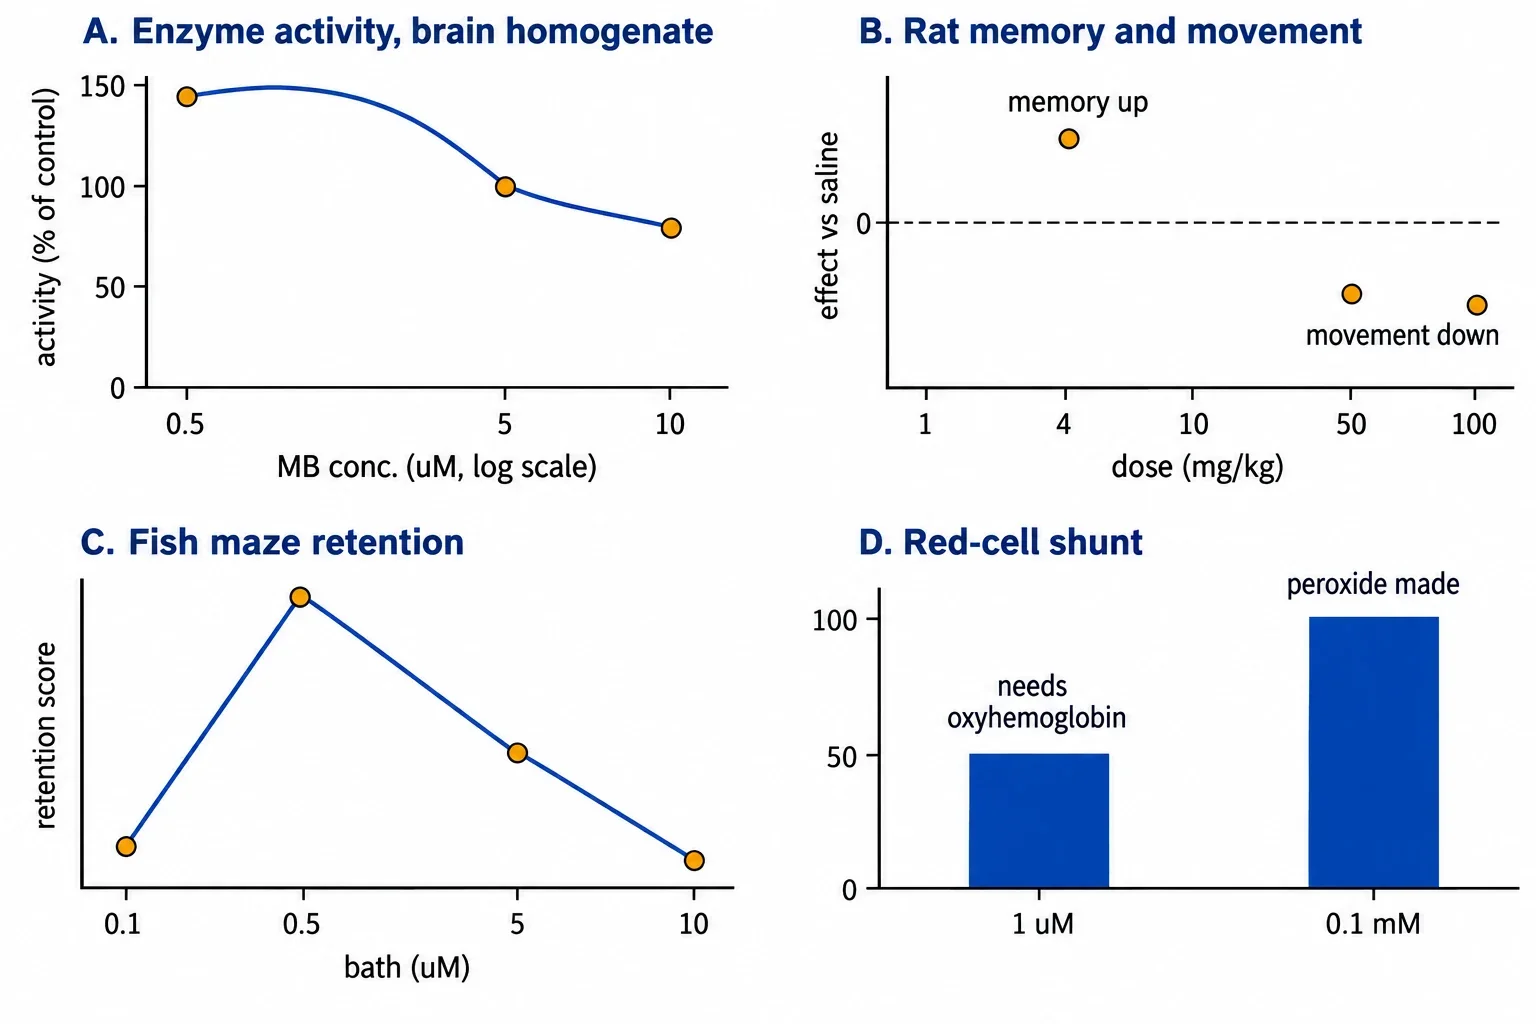
Panel A: oksydaza cytochromowa w homogenacie mózgu szczura. Najbardziej jednoznaczna krzywa mitochondrialna pochodzi ze źródła wtórnego: przedstawiono ją w przeglądzie na podstawie danych z homogenatu mózgu szczura. Aktywność wynosi około 138 procent wartości kontrolnej przy 0.5 mikromola na litr, wraca do poziomu kontrolnego przy około 5 mikromolach na litr i spada poniżej poziomu wyjściowego przy około 10 mikromolach na litr, gdzie — jak sugerują autorzy — barwnik odbiera elektrony normalnym kompleksom łańcucha. Homogenat, mikromole na litr, oznaczenie spektrofotometryczne. To zdanie zawiera cały kontekst, poza którym krzywa niczego nie mówi.
Panel B: pamięć szczurów i bieganie w kole. W badaniu pamięci szczurów po pojedynczych wstrzyknięciach wykonanych po treningu przeprowadzano testy 24 godziny później. Dawki od 1 do 10 miligramów na kilogram nie powodowały różnic w aktywności ruchowej ani pobieraniu pokarmu względem soli fizjologicznej, natomiast dawki od 50 do 100 miligramów na kilogram gwałtownie ograniczały bieganie w kole (mediana 35 wobec 279 obrotów), a najwyższa dawka powodowała stroszenie sierści, nieskoordynowane ruchy i jeden zgon. Dawka 4 miligramów na kilogram poprawiała habituację i rozpoznawanie przedmiotów: szczury, którym ją podano, poświęcały nowemu przedmiotowi niemal 10 sekund więcej. Zużycie tlenu w mózgu wzrastało zarówno w homogenacie poddanym działaniu zredukowanego barwnika w małym stężeniu mikromolowym, jak i w mózgach pobranych 24 godziny po podaniu in vivo 1 miligrama na kilogram. Warto rozdzielić te wyniki: w badaniu zachowania stosowano dawki ogólnoustrojowe po treningu, a w badaniu zużycia tlenu — stężenia w homogenacie oraz jedną dawkę in vivo. To dwa eksperymenty, a nie jedna krzywa.
Panel C: danio pręgowany w labiryncie T. W badaniu danio pręgowanego wytrenowane ryby zanurzano na 12 godzin po treningu w kąpieli o nominalnych stężeniach 0.1, 0.5, 5.0 lub 10.0 mikromola na litr, z niebieskim barwnikiem spożywczym jako kontrolą. Grupa 0.5 mikromola na litr osiągała najlepsze wyniki, grupa 5.0 odpowiadała kontroli, a grupa 10.0 wypadała gorzej niż grupy z mniejszymi dawkami. Z tym panelem wiążą się dwa zastrzeżenia. Stężenie w mikromolach na litr w kąpieli nie jest stężeniem w mikromolach na litr we krwi ani w mózgu; między wodą w zbiorniku a tkanką zachodzą dystrybucja i kumulacja. Ponadto dowody statystyczne są słabsze, niż sugeruje kształt: grupa z dużą dawką różniła się od grup z mniejszymi dawkami, ale nie zgłoszono innych istotnych różnic między grupami. Krzywa jest rzeczywista, lecz zarysowana zgrubnie.
Panel D: szlak monofosforanów heksoz w erytrocytach. Metz i współpracownicy porównali 1 mikromol na litr z 0.1 milimola na litr w ludzkich erytrocytach w atmosferze powietrza, tlenku węgla oraz mieszaniny powodującej niemal całkowite przekształcenie hemoglobiny w karboksyhemoglobinę przy fizjologicznym ciśnieniu tlenu. Pobudzenie przy małej dawce załamywało się bez oksyhemoglobiny; pobudzenie przy dużej dawce prawie nie reagowało na jej brak. Nadtlenek pojawiał się tylko przy dużej dawce. Ten panel należy zestawić z pozostałymi jako przykład chemii, a nie jako czwarty punkt na jakiejś wspólnej krzywej: brak mitochondriów, stukrotna różnica stężeń, manipulowane mieszaniny gazowe.
Dlaczego maksima się nie pokrywają — i nie powinny
Cztery maksima przypadają na 0.5 mikromola na litr w homogenacie, 4 miligramy na kilogram podane we wstrzyknięciu po treningu, 0.5 mikromola na litr w wodzie zbiornika oraz parę małego i dużego stężenia różniących się stukrotnie w erytrocytach. Traktowanie dowolnych dwóch z nich jako tej samej wartości jest błędem kategorialnym. Każdy punkt końcowy ma własną krzywą: optimum dla pamięci nie musi odpowiadać optimum dla aktywności oksydazy, zużycia tlenu, aktywności ruchowej czy wytwarzania nadtlenku. Każda jednostka stężenia oznacza coś innego: mikromole na litr w homogenacie, nominalne mikromole na litr w kąpieli, ogólnoustrojowe miligramy na kilogram oraz stężenia w osoczu, mózgu i mitochondriach to różne wielkości, a skłonność błękitu metylenowego do kumulacji w mitochondriach i mózgu podtrzymuje te różnice. Każdy model wnosi własną farmakokinetykę: gatunek, droga podania i czas decydują, do której tkanki dociera jaka ilość barwnika i na jak długo.
W tym miejscu znaczenie ma także rola dawki i drogi podania w bezpieczeństwie błękitu metylenowego, ponieważ skutki dużych dawek opisane w tych publikacjach — ograniczenie aktywności ruchowej, nieskoordynowane ruchy, jeden martwy szczur, wytwarzanie nadtlenku — są sygnałami toksyczności w konkretnych układach doświadczalnych, a nie marginesami bezpieczeństwa dla kogokolwiek innego. Każdy, kto chciałby przeliczyć 4 miligramy na kilogram u szczura na schemat stosowania u człowieka, powinien najpierw przeczytać, jak wyniki badań na zwierzętach odnoszą się do dowodów dotyczących ludzi: proste przeliczanie miligramów na kilogram między gatunkami jest niewystarczające.
Błąd, którego należy unikać
Odwrócone U kusi, ponieważ wygląda jak pokrętło dawkowania z zaznaczonym optymalnym punktem. Nie jest nim. Hormeza opisuje to, co stało się z jednym punktem końcowym w jednym układzie doświadczalnym. Zestawienie czterech takich opisów daje cztery maksima w czterech układach jednostek, czyli przeciwieństwo pokrętła. Rzetelne wykorzystanie tych krzywych polega na porównywaniu i zachowaniu ostrożności: należy oczekiwać, że efekty będą się odwracać wraz ze stężeniem, że każdy punkt końcowy będzie zmieniał kierunek w innym miejscu, oraz nie ufać twierdzeniom, które zapożyczają maksimum z jednego eksperymentu, by uzasadnić dawkę dla innego gatunku, drogi podania, tkanki lub celu. Rozróżnienie między wzorcami doświadczalnymi a decyzjami dotyczącymi indywidualnego dawkowania jest sednem całego artykułu — powtórzonym raz jeszcze, aby nie umknęło.
Jak czytać kolejną publikację o zależności dawka–odpowiedź
Cztery pytania pasują do niemal każdej krzywej dotyczącej błękitu metylenowego, z którą się zetkniesz. Jaki punkt końcowy znajduje się na osi pionowej i czy odwrócenie jego kierunku utworzyłoby U, czy J? Jakie stężenie faktycznie przedstawia oś pozioma: nominalne w kąpieli, w homogenacie, w osoczu, oszacowane w mózgu czy podaną dawkę ogólnoustrojową? W jakim modelu i w jakich ramach czasowych uzyskano wynik: w homogenacie, w hodowli komórkowej przy włączonym lub wyłączonym świetle, u wytrenowanych zwierząt otrzymujących substancję przed treningiem lub po nim — i kiedy przeprowadzono test? Co stanowiło kontrolę: sól fizjologiczna, niebieski barwnik spożywczy, nośnik — i czy statystyka w publikacji potwierdza każde twierdzenie o różnicy między parami grup, czy tylko ogólny kształt? Publikacja, która odpowiada na wszystkie cztery pytania, jest warta twojego czasu. Ta, która podaje maksimum bez tych informacji, daje liczbę bez adresu.