
Artikkel
Måling av reaktive oksygenforbindelser i metylenblått-eksperimenter
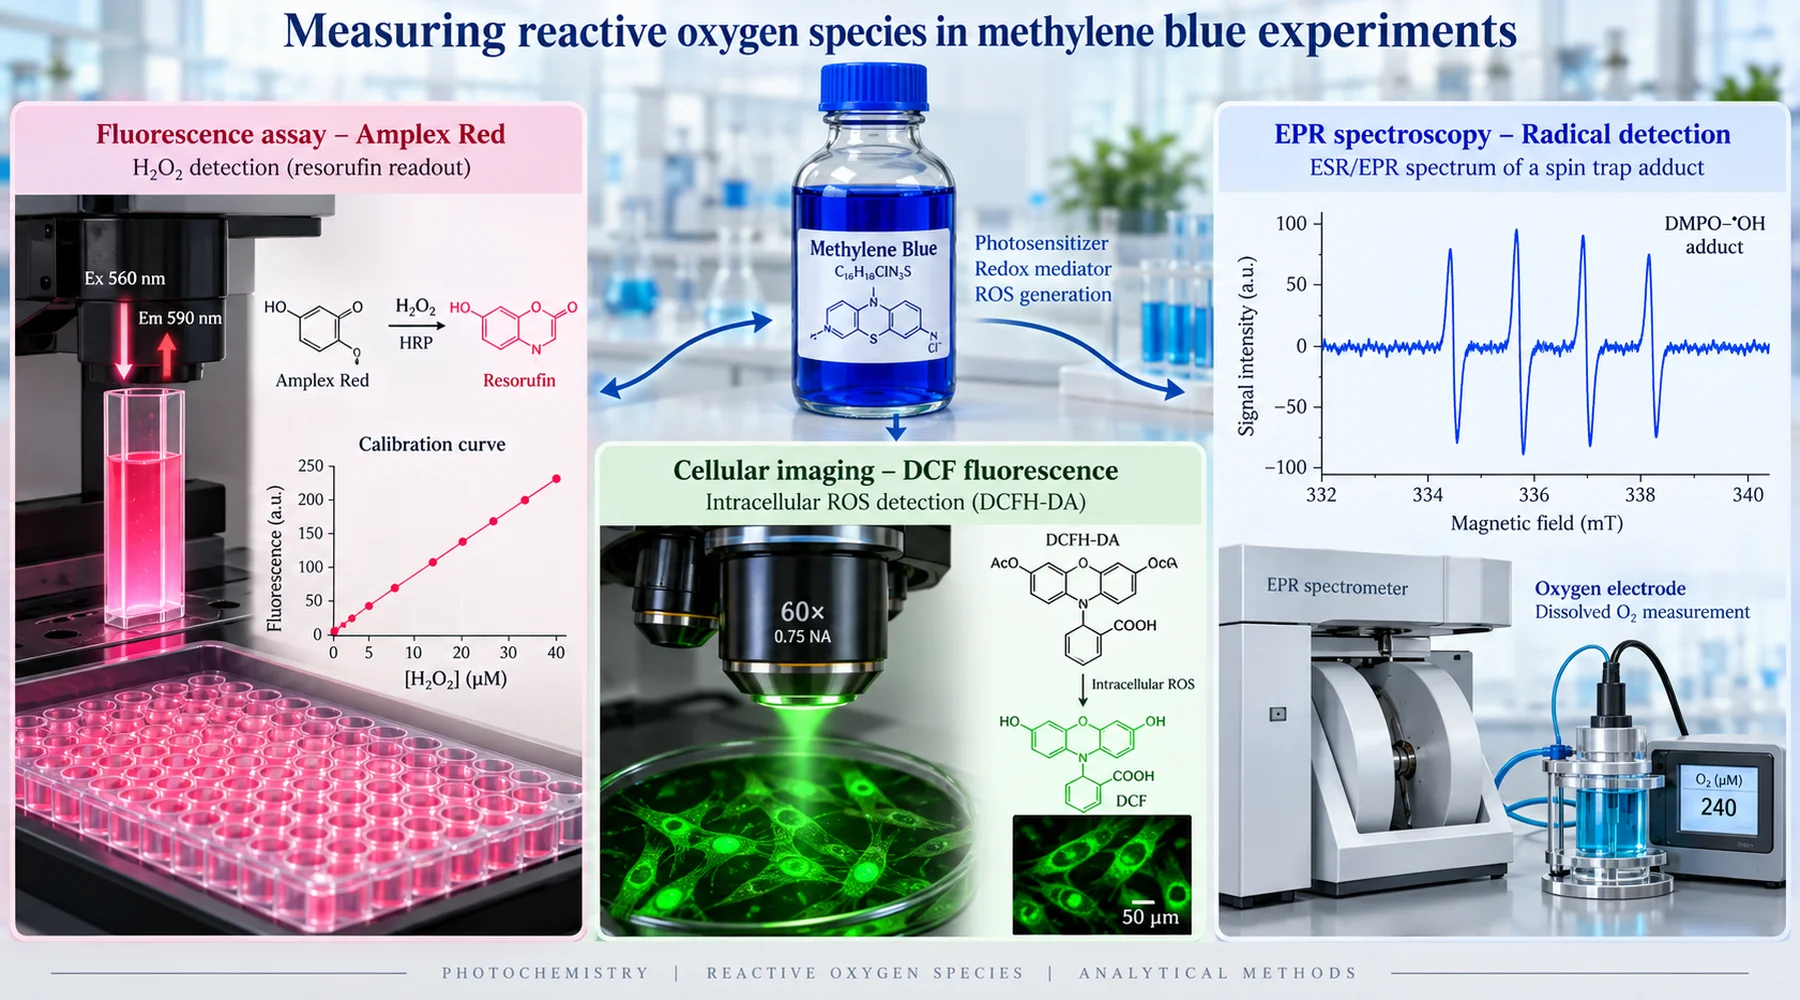
To laboratorier gjennomfører det begge kaller et antioksidanteksperiment med metylenblått. Det ene rapporterer at fargestoffet hemmer reaktive oksygenforbindelser. Det andre rapporterer at det danner dem. Begge viser tydelige dose–respons-kurver. Begge er oppriktige. Forskjellen skyldes verken svindel eller inkompetanse. De to gruppene målte ulike ting under ulik belysning, med prober som besvarer ulike spørsmål, og beskrev deretter begge svarene med samme ord: ROS.
Metylenblått er et vanskelig molekyl å måle nettopp fordi det deltar i kjemien det er ment å observere. I mørket transporterer det elektroner mellom donorer og akseptorer og vender tilbake til utgangsformen, klart til å gå gjennom syklusen igjen. Under belysning blir det en fotosensibilisator som når en eksitert triplettilstand. Derfra kan det overføre energi til oksygen og danne singlettoksygen, eller overføre elektroner og danne radikaler og hydrogenperoksid. Enhver probe som tilsettes dette systemet, kan oksideres, reduseres, blekes eller maskeres optisk av selve fargestoffet. Det første spørsmålet ved enhver ROS-måling er derfor aldri hva tallet er. Det er hva analysen faktisk påviser, og hva fargestoffet gjør med analysen.
Amplex Red: en kalibrert hydrogenperoksidanalyse
Kombinasjonen metylenblått og Amplex Red er den mest faglig forsvarlige i denne litteraturen, når den settes opp riktig. Kjemien er spesifikk: pepperrotperoksidase bruker hydrogenperoksid til å oksidere Amplex-substratet til et fluorescerende produkt, resorufin, med omtrent én-til-én-støkiometri. Peroksid fra prøven blir til fluorescens i detektoren. Ingen andre forbindelser i den vanlige ROS-familien driver denne reaksjonen direkte.
Den avgjørende fordelen er kalibrering. En grundig forsker kjører kjente peroksidstandarder i samme buffer, med samme peroksidase- og substratkonsentrasjoner, samme inkubasjonstid og samme optiske innstillinger, og avleser deretter prøvene mot denne kurven. I studien av isolerte hjernemitokondrier som ligger til grunn for denne metoden, gjorde forfatterne nettopp dette. De tilsatte kjente mengder peroksid ved slutten av hver kjøring, og tallene rapporteres som hastigheter i pikomol per minutt per milligram protein, ikke som vilkårlige fluorescensenheter. Det er dette som gjør et lyssignal til en måling.
Tre detaljer fra denne studien fortjener å bli gjentatt. For det første bekreftet forfatterne signalet med katalase, som bryter ned peroksid. Den metylenblått-induserte økningen i fluorescens stoppet da katalase ble tilsatt. Det bekreftet at signalet skyldtes peroksid og ikke en optisk artefakt. For det andre testet de belysningen direkte ved å avskjerme eksitasjonsstrålen med en lukker, slik at prøvene fikk en åttedel av den vanlige lysdosen. Signalet falt bare med ni prosent. Mer enn nitti prosent av peroksidet de rapporterte, var uavhengig av målelyset. For det tredje målte de peroksideliminering separat med en elektrode og fant at fargestoffet både økte produksjonen og bremset fjerningen. En probe som bare rapporterer netto fluorescens, ville ha blandet sammen disse to effektene.
Analysen har likevel feilkilder, og metylenblått utløser flere av dem. Fargestoffet absorberer bredt i det samme røde området der resorufin emitterer. Ved høye fargestoffkonsentrasjoner kan prøven derfor maskere sitt eget signal gjennom indre filtereffekter. Standardene bør derfor inneholde samme fargestoffkonsentrasjon som prøvene. Amplex Red kan også fotooksidere på egen hånd, og produktet resorufin kan inngå i fotoredokssykluser som danner superoksid og peroksid. Dette har stor betydning når eksperimentet også belyser en fotosensibilisator. Den praktiske løsningen er å bestråle metylenblått-prøvene først og analysere delprøver med Amplex-reagenser i mørket, i stedet for å belyse fargestoff og probe sammen. Til slutt: superoksiddismutase demper ikke nødvendigvis et Amplex-signal. Omdanning av superoksid til peroksid kan øke det. En SOD-kontroll som øker fluorescensen, har ikke mislyktes. Den har identifisert superoksid som en forbindelse oppstrøms i reaksjonskjeden.
DCFDA: en uspesifikk oksidasjonsindikator
Kombinasjonen metylenblått og DCFDA er kilden til det meste av forvirringen. DCFH-DA er en forløper som tas opp i celler. Esteraser inne i cellen fjerner acetatgruppene, slik at ikke-fluorescerende DCFH blir igjen. Oksidasjon av DCFH gir fluorescerende DCF. Listen over det som oksiderer det, er lang: hydroksylradikaler, peroksidase- og hem-intermediater, nitrogendioksid, hypoklorsyre og radikaler avledet fra peroksynitritt. Hydrogenperoksid alene oksiderer det ikke direkte med noen praktisk nyttig hastighet. Peroksidavhengig fluorescens krever vanligvis at jern, hemproteiner eller peroksidasekjemi inngår i reaksjonsforløpet.
Kritikken enhver metodedel bør vise til, kommer fra Kalyanaraman og kollegers analyse av DCFH som probe, slik den oppsummeres i studien av hjernemitokondrier som avviste DCFDA av denne grunnen. De viste at fargestoffet reagerer langsomt, med ukarakterisert støkiometri, uten gyldig kalibrering og med forbindelser som ikke er ROS. Proben forsterker også det den måler: énelektronoksidasjon av DCFH danner et DCF-radikal som reagerer med oksygen og danner superoksid. Dette dismuterer til ytterligere peroksid. Målingen skaper dermed delvis selv den kjemien den rapporterer.
Ingenting av dette gjør DCFDA ubrukelig. Det gjør den til en screeningmetode, ikke en identifikasjonsmetode. En økning i DCF-fluorescens betyr at oksidantavhengig oksidasjon av proben har økt. Det betyr ikke at peroksid har økt, og det betyr absolutt ikke at total ROS har økt, en størrelse ingen enkeltprobe måler. Tidligere arbeid med metylenblått som bygget på DCF-oksidasjon ved konsentrasjoner over én mikromolar, rapporterte prooksidante effekter. Andre systemer i samme periode viste beskyttelse mot peroksidindusert celledød. Begge observasjonene kan være riktige for samme fargestoff i ulike redokskontekster, og DCF-resultatet alene kan ikke si hvilken oksidant som ga signalet. Betydningen av det tidligere arbeidet med hjernemitokondrier ligger i at det erstattet denne screeningen med en kalibrert peroksidmåling og påviste belastningen direkte: selv hundre nanomolar fargestoff økte peroksidfrigjøringen flere ganger ved alle testede substrater og respirasjonstilstander.
DCFDA har enda en felle som er spesifikk for metylenblått. Fargestoffet er sterkt farget og redoksaktivt. Det kan derfor bleke fluorescens, slukke emisjon eller oksidere proben uavhengig av cellulære ROS. En cellefri kontroll med fargestoff og probe, men uten celler, er ikke valgfri pynt. Det er eksperimentet som forteller deg om fargestoffet påvirker proben.
Spinnfanging og oksygenopptak: identitet og fluks
Mens fluorescerende prober viser at noe oksiderbart har dukket opp, gir elektronspinnresonans med spinnfeller et svar som ligger nærmere hva det var. Den klassiske studien av metylenblåtts fotokjemi brukte ESR til å påvise askorbatradikalet fra fargestoff, askorbat og lys. Deretter viste den peroksiddannelse i oksygenopptakseksperimenter og jernkatalysert dannelse av hydroksylradikaler i forsøk med spinnfanging. Hver teknikk besvarte spørsmålet de andre ikke kunne besvare: ESR ga radikalets identitet, oksygenopptak ga reaksjonsfluks uavhengig av fluorescerende prober, og kombinasjonen viste at både singlettoksygen- og radikalreaksjonsveier var aktive i samme belyste system.
Resultatet fra 1984 fremstår fortsatt som en advarsel. Ved belysning og i nærvær av et reduksjonsmiddel dannet fargestoffet peroksid. Når jern var til stede, produserte systemet hydroksylradikalet, den mest reaktive forbindelsen i denne gruppen. Forfatterne knyttet dette til askorbat i øyet og stilte spørsmål ved ukritisk bruk i øyet. Dagens lesere bør merke seg betingelsene: lys pluss reduksjonsmiddel pluss jern. Fjernes én av disse, svekkes eller forsvinner reaksjonsveien.
Oksygenelektroder har sin verdi av en annen grunn. En elektrode av Clark-typen måler netto oksygenforbruk. Det fastslår at redokskjemi drevet av fargestoffet forbruker molekylært oksygen, og gir kinetiske data som ingen fluorescensartefakt kan etterligne. Den identifiserer ikke produktet. Dannelse av peroksid, superoksid og vann samt nedbrytning av singlettoksygen forbruker alle oksygen. Fluks uten identitet er like ufullstendig som identitet uten fluks. Derfor kombinerer de solide artiklene elektroden med en kalibrert peroksidanalyse eller en felle.
Hvorfor antioksidantresultater spriker
Når de tre målemetodene settes ved siden av hverandre, kan de tilsynelatende motsetningene i metylenblått-litteraturen forklares av metodeforskjeller og tre biologiske forhold.
For det første er fargestoffet både en elektrontransportør og en peroksidkilde. Ved å lede elektroner bort fra steder i respirasjonskjeden der oksygen ellers ville blitt til superoksid, kan det redusere én ROS-forbindelse. Samtidig kan den reduserte formen redusere oksygen direkte til peroksid og dermed øke en annen. Et laboratorium som undersøker mitokondriell redokskjemi og metylenblåtts rolle som alternativ elektronvei, bør derfor forvente probeavhengige svar: en superoksidfølsom måling faller, mens en peroksidmåling stiger i samme kyvette.
For det andre er peroksid i lave doser et signal, ikke bare en skadefaktor. Studien av hjernemitokondrier fra mus som fulgte det tidligere arbeidet, fant peroksiddannelse fra så lite som femti nanomolar fargestoff uten skader på mitokondrielt DNA ved terapeutiske nivåer, med beskyttelse mot rotenoninduserte skader etter forbehandling. Først ved hundre mikromolar, langt over det terapeutiske området, skadet fargestoffet utvalgte DNA-fragmenter. Rødt lys kombinert med tjue mikromolar fargestoff produserte singlettoksygen som skadet alle testede fragmenter. Den foreslåtte mekanismen er hormetisk: mild peroksidproduksjon utløser Nrf2-knyttet antioksidantforsvar og mitokondriell biogenese. En kortsiktig prooksidantmåling kommer dermed før et mer langsiktig antioksidantutfall. En analyse avlest etter én time og en analyse avlest etter én dag kan gi ulike svar fordi biologien har endret seg i mellomtiden.
For det tredje avgjør lyset hvilket molekyl som i det hele tatt er til stede. Belysning demetylerer fargestoffet mot Azure B og beslektede produkter, og mikroskoplampen over en skål er nok til å fotosensibilisere det. Eksperimenter i mørke og under belysning er forskjellige eksperimenter, og delen om kontroller for belysning og håndtering av fargestoff i enhver protokoll bør behandle dem som det.
Et minimum av kontroller, og hvordan påstander skal tolkes
Sammenligningen nedenfor er det opprinnelige referansematerialet for denne artikkelen. Før du godtar et ROS-resultat for metylenblått, bør du sjekke hvilke rader forfatterne har dekket, og hvilke de har hoppet over.
| Kontroll | Hva den utelukker | Slik gjennomføres den |
|---|---|---|
| Mørke versus definert belysning | Sammenblanding av redokseffekter i grunntilstanden med fotokjemi | Samme fargestoff, samme matriks, én forsøksarm i mørke og én under målt lysdose |
| Probe pluss lys, uten fargestoff | Probens fotokjemi | Belys proben alene; ethvert signal er et grunnnivå av artefakter |
| Fargestoff pluss lys, uten celler eller substrat | Cellulære ROS versus ROS fra selve fargestoffet | Cellefri matriks; fastslår hva fargestoffet danner alene |
| Katalase | Signal som ikke skyldes peroksid i en Amplex-analyse | Signalet bør falle; merk at belyst fargestoff kan skade selve katalasen |
| SOD | Medvirkning fra superoksid | En økning i Amplex-signalet peker på superoksid oppstrøms, ikke på analysesvikt |
| Jernkelator som deferoksamin | Hydroksylkjemi av Fenton-typen | Tester om redoksaktivt jern ligger bak DCFH- eller spinnfellesignalet |
| Peroksidstandarder i fullstendig matriks | Ukalibrert fluorescens | Kjente peroksidtilsetninger med identisk fargestoffkonsentrasjon og optikk |
Dette gir en praktisk tolkningsregel. Amplex med peroksidase, kalibrering og katalasekontroll gir evidens om peroksid. DCFDA gir evidens om uspesifikk probeoksidasjon og ingenting mer. Spinnfanging med kontroller som bruker radikalfangere, gir evidens om radikalets identitet. Oksygenopptak gir evidens om fluks. En setning som hevder mer enn analysen kan underbygge, uansett hvor selvsikkert den er skrevet, er en setning om proben, ikke om fargestoffet. Beslektede drøftinger av doseavhengighet og det hormetiske området, mitokondriell elektronstrøm, analyseinterferens i fargede prøver og belysningsartefakter ved mikroskopi utdyper hvert av disse punktene. Hvert punkt er fortsatt gyldig når plassholderreferansen er erstattet.