
Член
Метиленско сино и воспалителна сигнализација: инфламазоми, IL-6 и STAT3
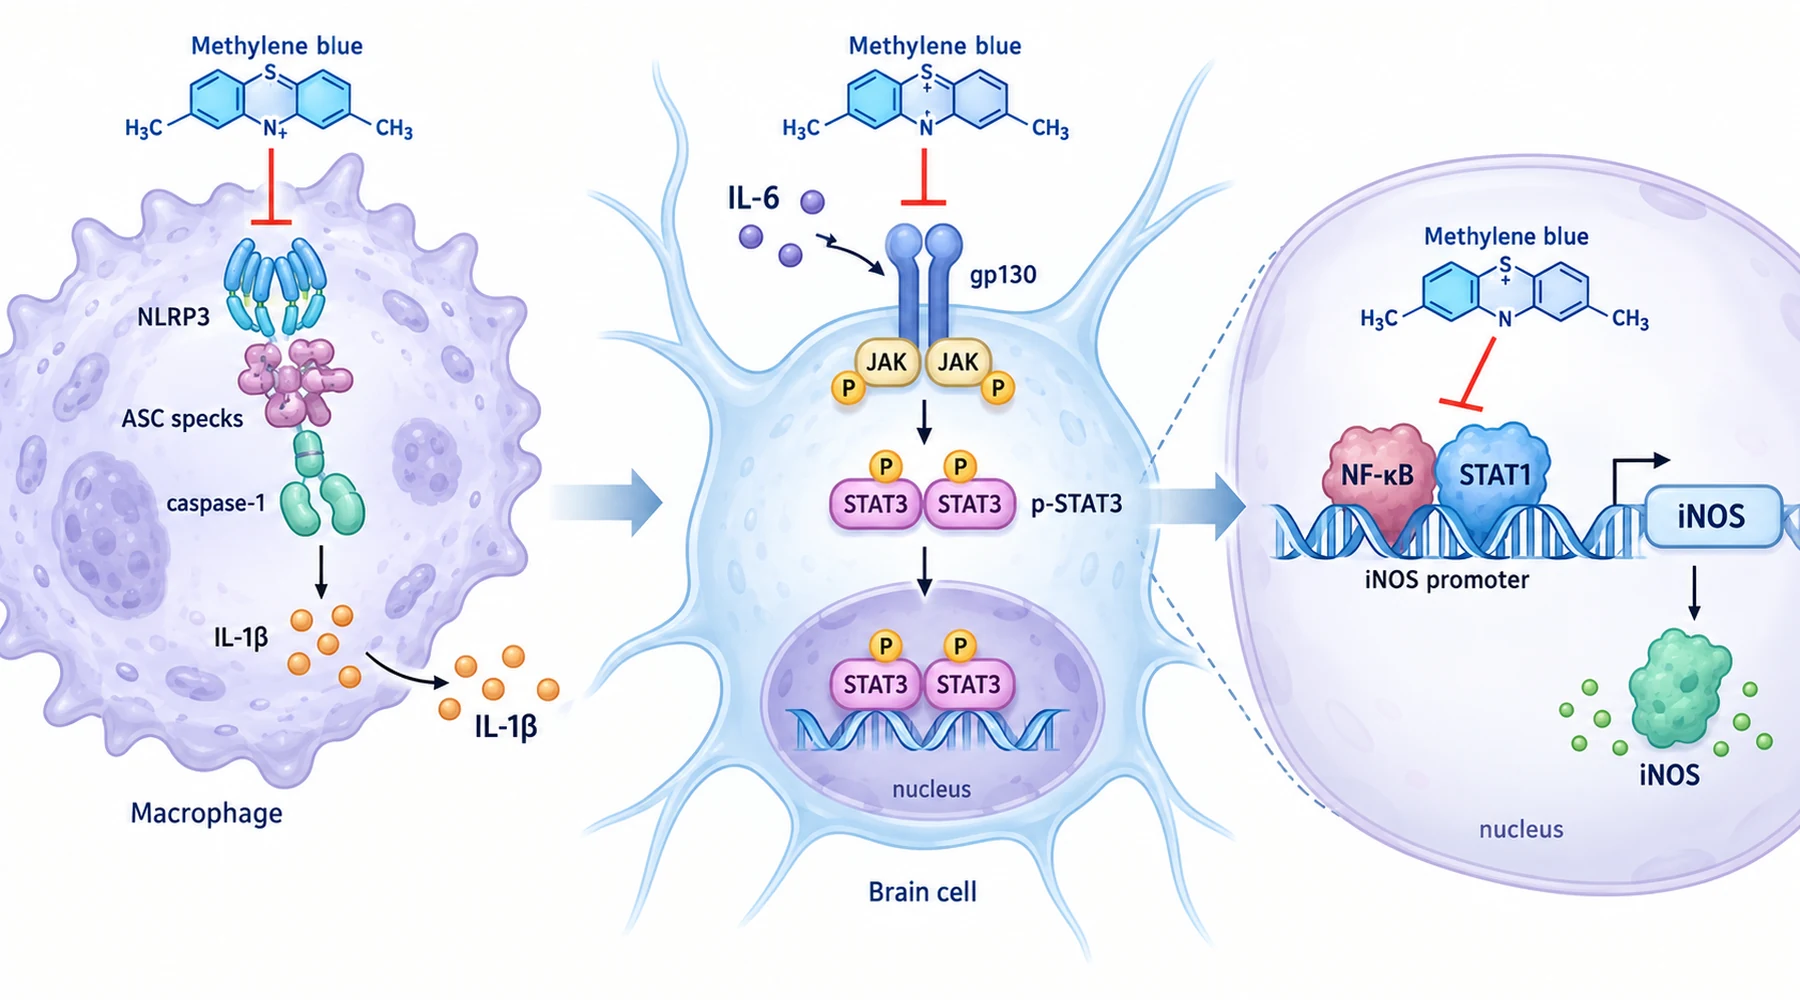
Да претпоставиме дека три лаборатории пријавуваат дека истото сино соединение има антивоспалително дејство. Едната покажува помалку IL-1beta од макрофагите. Другата покажува помалку од ензимот iNOS во истиот тип клетки. Третата покажува помалку IL-6 во крвта и помала активност на STAT3 во мозокот. Примамливо е сите три резултати да се спојат во едно тврдење. Но тоа спојување го прикрива наодот.
Секој резултат припаѓа на различен концепт на сигнализација, со сопствен поттикнувач, чекор на составување и мерен показател. Метиленското сино дејствува врз секој од нив во различна точка. Дали нешто од ова го подобрува здравствениот исход е одделно прашање, разгледано во нашиот преглед на метиленското сино и воспалението. Оваа страница се задржува на сигналните патеки.
Патека 1: составување на инфламазомите и каспаза-1
Инфламазомот е протеинска структура што се составува по потреба во миелоидна клетка. Неговите делови се сензор, адаптор наречен ASC и ефекторен ензим наречен каспаза-1. По составувањето, каспаза-1 ги расцепува pro-IL-1beta и pro-IL-18 во нивните форми што се секретираат и може да поттикне пироптоза, воспалителна форма на клеточна смрт. Сензорот го одредува типот: NLRP3 реагира на кристали и токсини што формираат пори, како нигерицин и ATP, NLRC4 реагира на бактериски флагелин, AIM2 реагира на цитозолна двоверижна DNA, а неканонската патека реагира на внатреклеточен липополисахарид.
За активирање се потребни два сигнала. Првиот сигнал е подготвителен: лиганд на рецептор сличен на Toll поттикнува транскрипција на NLRP3 и pro-IL-1beta зависна од NF-kB, со што се обезбедуваат составните делови. Вториот сигнал е составувањето: втор поттикнувач предизвикува ASC да олигомеризира во точкести агрегати, каспаза-1 да се расцепи и да го даде својот фрагмент p20, а зрелиот IL-1beta p17 да се ослободи. Познато е дека митохондријалните реактивни кислородни видови и внесувањето кристали придонесуваат за вториот сигнал кај NLRP3.
Во студијата од 2017 година за широко инхибирање на инфламазомите во макрофаги метиленското сино беше испитано кај двата сигнала. Во макрофаги од коскена срцевина на глувци, претходно подготвени со липополисахарид, нигерицинот, ATP и кристалите на мононатриум урат поединечно предизвикаа ослободување на IL-1beta и каспаза-1, како и формирање точкести агрегати на ASC. Метиленското сино во концентрации од 20 до 200 микромолари ги намали сите три показатели на начин зависен од дозата, без да ги убие клетките. Флагелинот и Salmonella за NLRC4, двоверижната DNA и Listeria за AIM2, како и трансфектираниот липополисахарид или живата E. coli за неканонската патека, го покажаа истиот образец. Самото соединение не предизвика ослободување, а контролните плочи не покажаа антибактериско дејство, па резултатот се однесува на одговорот на домаќинот.
Во претходните чекори на патеката беа измерени три интервенции. Митохондријалниот супероксид предизвикан од ротенон се намали со метиленското сино, а се намали и ослободувањето на IL-1beta поттикнато од ротенон. Внесувањето флуоресцентни микросфери се намали, што е во согласност со намалена фагоцитоза пред препознавањето на кристалите. Репортер управуван од промоторот на NLRP3 со две места за врзување на NF-kB покажа пониска активност со метиленско сино, додека скратен промотор без тие места не реагираше. Во епрувета без клетки, метиленското сино директно ја намали и активноста на рекомбинантната човечка каспаза-1. Додавањето на соединението само во подготвителната фаза или само при активирањето сепак го намали ослободувањето на IL-1beta, IL-18 и каспаза-1, што значи дека се засегнати двата чекора.
Испитувањата со глувци ја потврдија оваа селективност. Смртоносна доза липополисахарид ги уби контролните животни во рок од неколку часа, додека метиленското сино го подобри преживувањето; перитонеалниот IL-1beta се намали, но IL-6 во истата течност не се намали. Во модел на перитонитис предизвикан од Listeria, перитонеалниот IL-1beta се намали, додека вкупниот број клетки остана непроменет. Човечките моноцити THP-1 се однесуваа како макрофагите од глувци кај сите четири типа инфламазоми. Резултатот за инфламазомите го објаснува созревањето на IL-1beta и IL-18, а не на секој цитокин. Затоа и обликот на имуните клетки во мозокот во експериментите со микроглија и астроцити одговара на различно прашање од составувањето на протеинската структура.
Патека 2: транскрипција на iNOS преку врзување на NF-kB и STAT1
Индуцибилната синтаза на азотен оксид, или iNOS, е речиси отсутна во состојба на мирување и се транскрибира по потреба. Липополисахаридот ја поттикнува главно преку разградба на IkB-alpha, по што следуваат фосфорилација на NF-kB и негово навлегување во јадрото. Интерферон-гама ја поттикнува главно преку фосфорилација на STAT1 од страна на Јанус-киназата, по што следува навлегување на STAT1 во јадрото. Потоа секој фактор се врзува за своето место на промоторот на iNOS. Ензимската активност и индукцијата на генот се одделни контролни точки, а лек може да дејствува на едната или на двете.
Студијата од 2015 година за индукција на iNOS во макрофаги и глувци со ендотоксемија го лоцираше ефектот на ниво на информациската RNA. Во клетки RAW 264.7 и примарни макрофаги од глувци, метиленско сино во концентрација од 1 микромолар, дадено 30 минути пред липополисахарид, интерферон-гама или обата, ги намали протеинот iNOS и неговата mRNA во периодот од 8 до 24 часа, со помалку нитрит во медиумот и без намалување на клеточната виталност. Кај глувци на кои им беа дадени 25 mg на kg липополисахарид, единечна доза од 5 mg на kg дадена еден час претходно ги намали протеинот iNOS и неговата mRNA во белите дробови, црниот дроб и срцето.
Карактеристичниот детаљ е она што не се промени. Разградбата на IkB-alpha, фосфорилацијата на NF-kB, фосфорилацијата на STAT1 и насобирањето на двата фактора во јадрото останаа непроменети. Прекинот се случи еден чекор подоцна: нуклеарните екстракти покажаа помало врзување на NF-kB за неговиот DNA-елемент по липополисахарид и помало врзување на STAT1 по интерферон-гама, а хроматинската имунопреципитација потврди помала застапеност на двата фактора на промоторот на iNOS во клетките. Се намали и факторот на туморска некроза алфа, чиј промотор исто така користи NF-kB. Факторите беа активирани и пристигнаа во јадрото, но слабо се врзуваа за својата целна DNA.
Забележете ја разликата во однос на патеката 1. Ова се однесува на врзувањето на факторите за DNA, вклучува STAT1 наместо STAT3 и ги мери mRNA, протеинот и нитритот наместо точкестите агрегати на ASC и фрагментите на каспаза-1. Нашата карта на целните места на метиленското сино во различни клеточни модели го одделува ова транскрипциско ниво од директните ензимски и митохондријални мерења.
Патека 3: серумски IL-6 и активирање на STAT3 во ткивата
IL-6 пренесува сигнали преку рецепторското семејство gp130 до каскадата од Јанус-киназа до STAT3. Фосфорилираниот STAT3 формира димери, навлегува во јадрото и поттикнува воспалителни програми, додека самиот IL-6 е цел на NF-kB. Така тие формираат повратна јамка, често наречена оска IL-6–STAT3. Стандардните мерени показатели се серумскиот IL-6 во претходниот дел од патеката, соодносот на фосфорилиран и вкупен STAT3 и ефекторните ензими како iNOS и COX2 во подоцнежниот дел од патеката.
Студијата од 2023 година со глувци за IL-6 и STAT3 по липополисахарид ја мереше оската во различни биолошки оддели. Машки глувци C57BL/6 примаа 1 mg на kg липополисахарид дневно во текот на три дена, со 5 или 10 mg на kg метиленско сино 30 минути по секоја доза. На третиот ден, серумскиот IL-6 беше понизок во двете групи со метиленско сино отколку со само липополисахарид, додека повеќето други цитокини во панелот не се променија со третманот. Соодносите на фосфорилиран и вкупен STAT3 беа пониски во кортексот, хипокампусот и кожата на увото, со послабо боење на микроглијата за Iba-1, пониски нивоа на iNOS и COX2 и делумно ублажено губење на телесната тежина.
Тука се потребни две огради. Понискиот серумски IL-6, заедно со помалата фосфорилација на STAT3 во ткивата, е во согласност со модулација на оската, но не ја издвојува примарната точка на дејствување: помалку цитокин во претходниот дел од патеката, послаба рецепторска сигнализација или изменета активност на фосфатазите може да го дадат истиот сооднос. Исто така, телесната тежина во текот на тридневна акутна стимулација е показател на ниво на целото животно, а не оценка на симптомите или ремисијата. Таа додава контекст надвор од резултатот од блот-анализата, без да го претвори резултатот за сигнализацијата во тврдење за лекување. Одделната хемија на митохондријалните редокс-процеси се одвива паралелно со овој опис на цитокините и не треба да се спојува со него.
Споредба на патеките: точки на интервенција и мерени показатели

| Патека | Поттикнувач во овие трудови | Каде дејствува метиленското сино | Мерен показател што се променил |
|---|---|---|---|
| Составување на инфламазомите | Нигерицин, ATP, уратни кристали, флагелин, DNA, цитозолен липополисахарид | Намалена подготвителна транскрипција, помалку митохондријални ROS, намалена фагоцитоза, намалено составување на ASC, директна инхибиција на каспаза-1 | Помалку каспаза-1 p20, помалку зрели IL-1beta и IL-18, помалку точкести агрегати на ASC |
| Транскрипција на iNOS | Липополисахарид преку NF-kB; интерферон-гама преку STAT1 | Намалено врзување на NF-kB и STAT1 за промоторската DNA и покрај нормалното активирање и навлегување во јадрото | Помалку mRNA и протеин iNOS, помалку нитрит |
| Оска IL-6–STAT3 | Тридневно давање липополисахарид кај глувци | Понизок серумски IL-6 со помала фосфорилација на STAT3 во ткивата | Понизок сооднос pSTAT3 и STAT3 во кортексот, хипокампусот и кожата; пониски нивоа на iNOS, COX2, Iba-1 |
Табелата спречува три невалидни пренесувања на заклучоци. Резултат за точкестите агрегати на ASC не докажува резултат за STAT3. Резултат за врзувањето на STAT1 за промоторот на iNOS не докажува резултат за STAT3, иако двата протеина припаѓаат на семејството STAT. Резултат за серумскиот IL-6 не докажува намалено составување на инфламазомите: во перитонеалниот експеримент IL-1beta се намали, додека IL-6 не се намали. За секој ред се потребни сопствен поттикнувач и мерен показател, поради што читањето на клеточни, животински и клинички студии за метиленско сино бара секое тврдење да се поврзе со нивото на кое е измерено.
Ништо од ова не утврдува дозирање, безбедност или корист кај луѓе. Моделите со липополисахарид се контролирани стимулации за испитување механизам, а не реплики на хронични заболувања. Давањето дози во исто време со поттикнувачот ја испитува превенцијата на предизвикана промена, а не повлекувањето на веќе развиена болест. Одделувајте го овој опис на механизмите од исходите кај пациентите и проценувајте го секое здравствено тврдење според студијата со пациенти што стои зад него.