
Член
Метиленското сино и прогеријата: поуки од клеточен модел на стареење
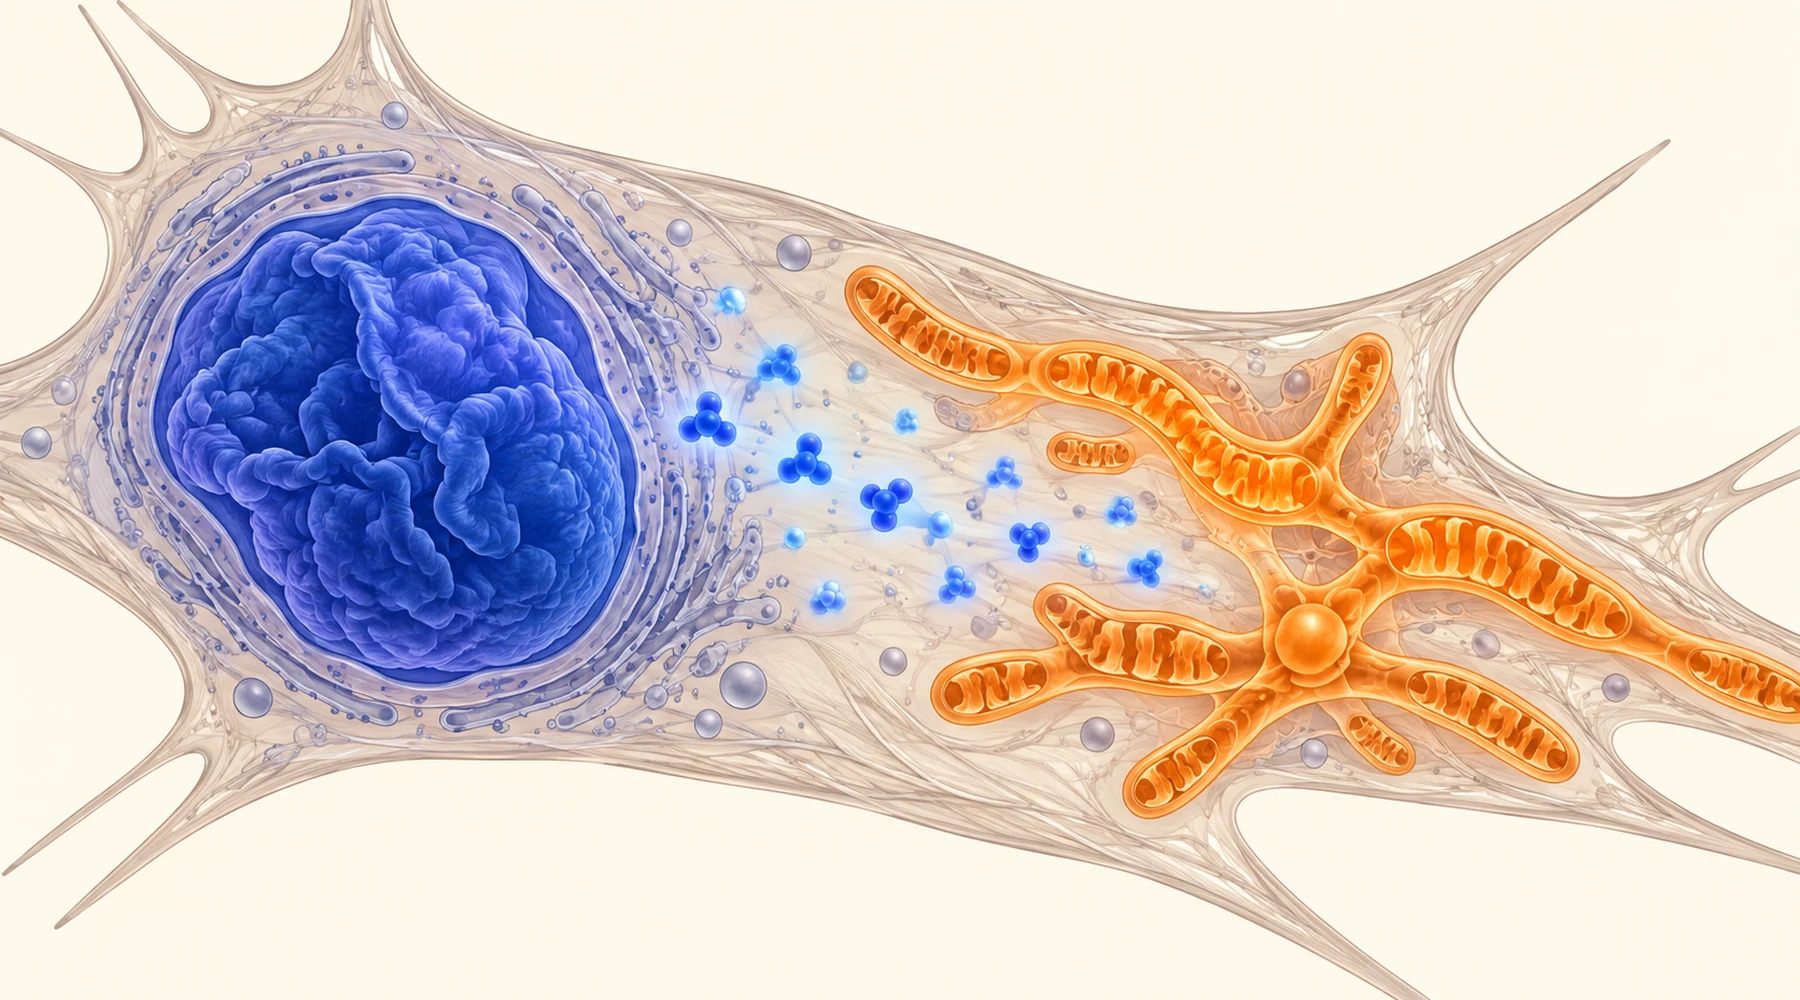
Промена на една буква во еден ген предизвикува децата да стареат со застрашувачка брзина. Губење на косата, вкочанети зглобови, стеснети артерии и очекуван животен век до тинејџерските години. Таа болест е синдромот на прогерија Хачинсон-Гилфорд, а нејзиното истражување со години се фокусирало на јадрото, каде што мутираниот протеин ја предизвикува штетата. Една студија од Универзитетот во Мериленд од 2016 година поставила поинакво прашање: како изгледаат митохондриите во овие клетки? Одговорот поврзал два оддела на клетката, а една сина боја позната веќе еден век влијаела врз двата.
Станува збор за студијата на Xiong и соработниците, објавена во Aging Cell во 2016 година. Таа била спроведена исклучиво со култивирани клетки. Тој факт е основата за сè што следува. Наодите се вистински и конкретни. Подеднакво јасно е и колку се далеку од какво било лекување.
Моделот: една мутација, еден леплив протеин
Прогеријата започнува со замена на C со T на позицијата 1824 во генот LMNA. Промената не менува аминокиселина. Таа активира скриено место за сплајсинг, со што се отстрануваат 50 аминокиселини од протеинот ламин A. Скратениот производ, наречен прогерин, го губи местото на расцепување што вообичаено ѝ овозможува на клетката да го отстрани неговото фарнезилно сидро. Затоа прогеринот останува трајно фарнезилиран и прицврстен за внатрешната мембрана на јадрото, каде што нормалниот ламин A циклично се врзува и се одвојува.
Последиците во јадрото се добро документирани и видливи под микроскоп. Јадрата развиваат испакнатини и набори наместо да задржат мазна овална форма. Хетерохроматинот, густо спакуваната транскрипциски неактивна ДНК што вообичаено го обложува работ на јадрото, се истенчува. Илјадници гени ја менуваат својата експресија. Замислете ја јадрената ламина како потпорна конструкција зад тапетите: кога еден дел од конструкцијата е заварен во погрешна положба, ѕидот се испакнува, а шарата на тапетите се искривува низ целата соба.
Во студијата биле користени кожни фибробласти од пациенти со прогерија заедно со контролни клетки со ист број пасажи, како и втора клеточна линија модифицирана така што нормалните фибробласти директно произведувале прогерин. Модифицираните клетки ги развиле истите дефекти, што го посочува прогеринот како причина, наместо историјата на пациентите или времето поминато во култура. Тежината на дефектите зависела од количината: линијата што експримирала повеќе прогерин покажувала потешки дефекти во сите испитувани аспекти.
Како изгледале митохондриите
Митохондриите во здравите фибробласти формираат разгранета мрежа околу јадрото, со долги тубули што се движат по патеките на цитоскелетот. Во линиите со прогерија таа мрежа ја немало. Поголем дел од митохондриите биле фрагментирани, многу биле отечени, а електронската микроскопија покажала приближно двојно зголемување на бројот на тешко оштетени органели. Снимањето во временски интервали покажало дека тие се движат на пократки растојанија и со помала брзина отколку кај контролните клетки.
Функцијата ги следела промените во обликот. Митохондријалниот супероксид и нивоата на оксиданси во целата клетка се зголемиле. Повеќе клетки покажувале нарушен мембрански потенцијал. Производството на ATP се намалило. Ниту еден од овие наоди сам по себе не е изненадувачки, бидејќи оштетените митохондрии испуштаат реактивни кислородни видови и произведуваат помалку енергија. Новина била предложената причина. PGC-1alpha, транскрипцискиот коактиватор што ја поттикнува митохондријалната биогенеза преку низводни фактори како NRF1, TFAM и регулаторите на фузија и делба MFN1, MFN2, OPA1, FIS1 и DRP1, бил потиснат приближно осумкратно на ниво на mRNA во клетките со прогерија, со соодветно намалување на протеинот. Изгледало дека прогеринот го потиснува главниот прекинувач за создавање и одржување на митохондриите. Таа врска меѓу оштетувањето на јадрената ламина и енергетскиот метаболизам е дел од пошироката слика за митохондријалното производство на енергија, а оксидансниот аспект на истата рамнотежа е опфатен во темата за оксидативниот стрес и контролата на ROS.

Што променило метиленското сино
Истражувачите ги третирале клетките со метиленско сино во ниска концентрација од 100 наномолари, непрекинато во текот на повеќе недели. Во контекст на клеточните култури, ова е долготрајна, блага изложеност, а не краток пулс на лек. Метиленското сино циклично преминува меѓу оксидирана и редуцирана форма и може да пренесува електрони во митохондриите. Затоа се опишува како редокс-соединение насочено кон митохондриите, наместо како обичен антиоксиданс што се троши кога неутрализира еден оксиданс.
Митохондриите реагирале и во нормалните клетки и во клетките со прогерија. ATP се зголемил, нивоата на оксиданси се намалиле, а уделот на митохондрии со тешки дефекти се намалил. Експресијата на PGC-1alpha делумно се обновила, заедно со некои од неговите низводни цели. Дотука, ова е општ ефект на поддршка на митохондриите, а не ефект специфичен за прогеријата.
Резултатите во јадрото биле изненадувањето и биле специфични за клетките со болеста. Квантитативната анализа на обликот покажала намалување на испакнатините на јадрото. Вкупните количини на ламините A и C се зголемиле. Највпечатливо било прераспределувањето на прогеринот: во нетретираните клетки со прогерија, само околу 30 проценти од прогеринот се наоѓал во растворливата нуклеоплазматска фракција, а остатокот бил прицврстен за мембраната. По третманот, растворливиот удел се зголемил на приближно 65 проценти, блиску до однесувањето на нормалниот ламин. Ослободен од мембраната, прогеринот повлекува помалку соседни протеини со себе, а се обновиле и растворливите фракции на ламините A и C.
Како последица на тоа ослободување, се подобриле два фенотипа на јадрото. Перинуклеарниот хетерохроматин, испитан со електронска микроскопија и со боење за хетерохроматинскиот протеин HP1-alpha, бил видливо обновен. А секвенционирањето на РНК покажало дека транскриптомот се враќа кон нормалната состојба: нетретираните клетки со прогерија се разликувале од контролните клетки во повеќе од 3,200 гени, додека третираните клетки со прогерија се разликувале во околу 1,670. Во нормалните клетки, истиот третман променил само неколку десетици гени, што укажува дека ефектот врз јадрото е поврзан со прогеринот, наместо да претставува општа транскрипциска промена. Принципот дека клеточните и животинските модели одговараат на потесни прашања отколку што сугерираат насловите е објаснет во како да ги читате истражувањата за метиленското сино.
Зошто ова не е лекување
Четири ограничувања ја задржуваат оваа студија таму каде што припаѓа: во лабораторијата.
Прво, сè се одвивало во лабораториски садови. Фибробластите во култура немаат крвоснабдување, имунолошки контекст, ткивна архитектура и фармакологија на целиот организам, која одредува дали едно соединение воопшто ќе стигне до целта. Во овој труд не било дозирано ниту едно животно и не бил третиран ниту еден пациент.
Второ, фибробластите со прогерија се модел на еден клеточен тип. Болеста доведува до смрт главно преку оштетувања на артериите, коските и масното ткиво, а студијата испитала само фибробласти и еден препарат од мазно мускулно ткиво. Другите ткива може да се однесуваат поинаку.
Трето, обновувањето на јадрото било резултат на повеќенеделна непрекината изложеност на наномоларна концентрација во медиум за култура. Концентрациите во лабораториски садови не се дози, а ништо во трудот не претвора 100 наномолари во медиумот во режим за примена кај луѓе. Метиленското сино има сопствен одговор на дозата и безбедносен профил во други медицински контексти, а оваа студија не дава основа за домашна употреба. Општиот безбедносен контекст е опфатен во безбедноста и несаканите ефекти на метиленското сино.
Четврто, прогеријата не е нормално стареење. Таа е ретка болест предизвикана од една мутација, кај која потпорната конструкција на јадрото се нарушува на специфичен начин. Соединение што го ублажува тоа конкретно нарушување во култивирани клетки кажува малку за стареењето кај луѓе без таа мутација. Клеточниот фенотип е прозорец кон заемната комуникација меѓу јадрото и митохондриите, а не резултат што покажува долговечност.
Затоа, објективното резиме мора да биде условно. Во фибробластите со прогерија, прогеринот го потиснува PGC-1alpha и ги остава митохондриите фрагментирани, бавни, со високи нивоа на оксиданси и со недостиг на енергија. Метиленското сино во ниска концентрација ги обновило митохондријалните показатели во сите клетки, а дополнително го ослободило прогеринот од јадрената мембрана во клетките со болеста, со делумно обновување на обликот на јадрото, хетерохроматинот и генската експресија. Поради тоа двојно дејство, вреди да се знае за студијата. Тоа не го прави метиленското сино терапија за прогерија или за стареење.