
Член
Метиленско сино за боење ДНК и РНК: примени кај гелови и мембрани
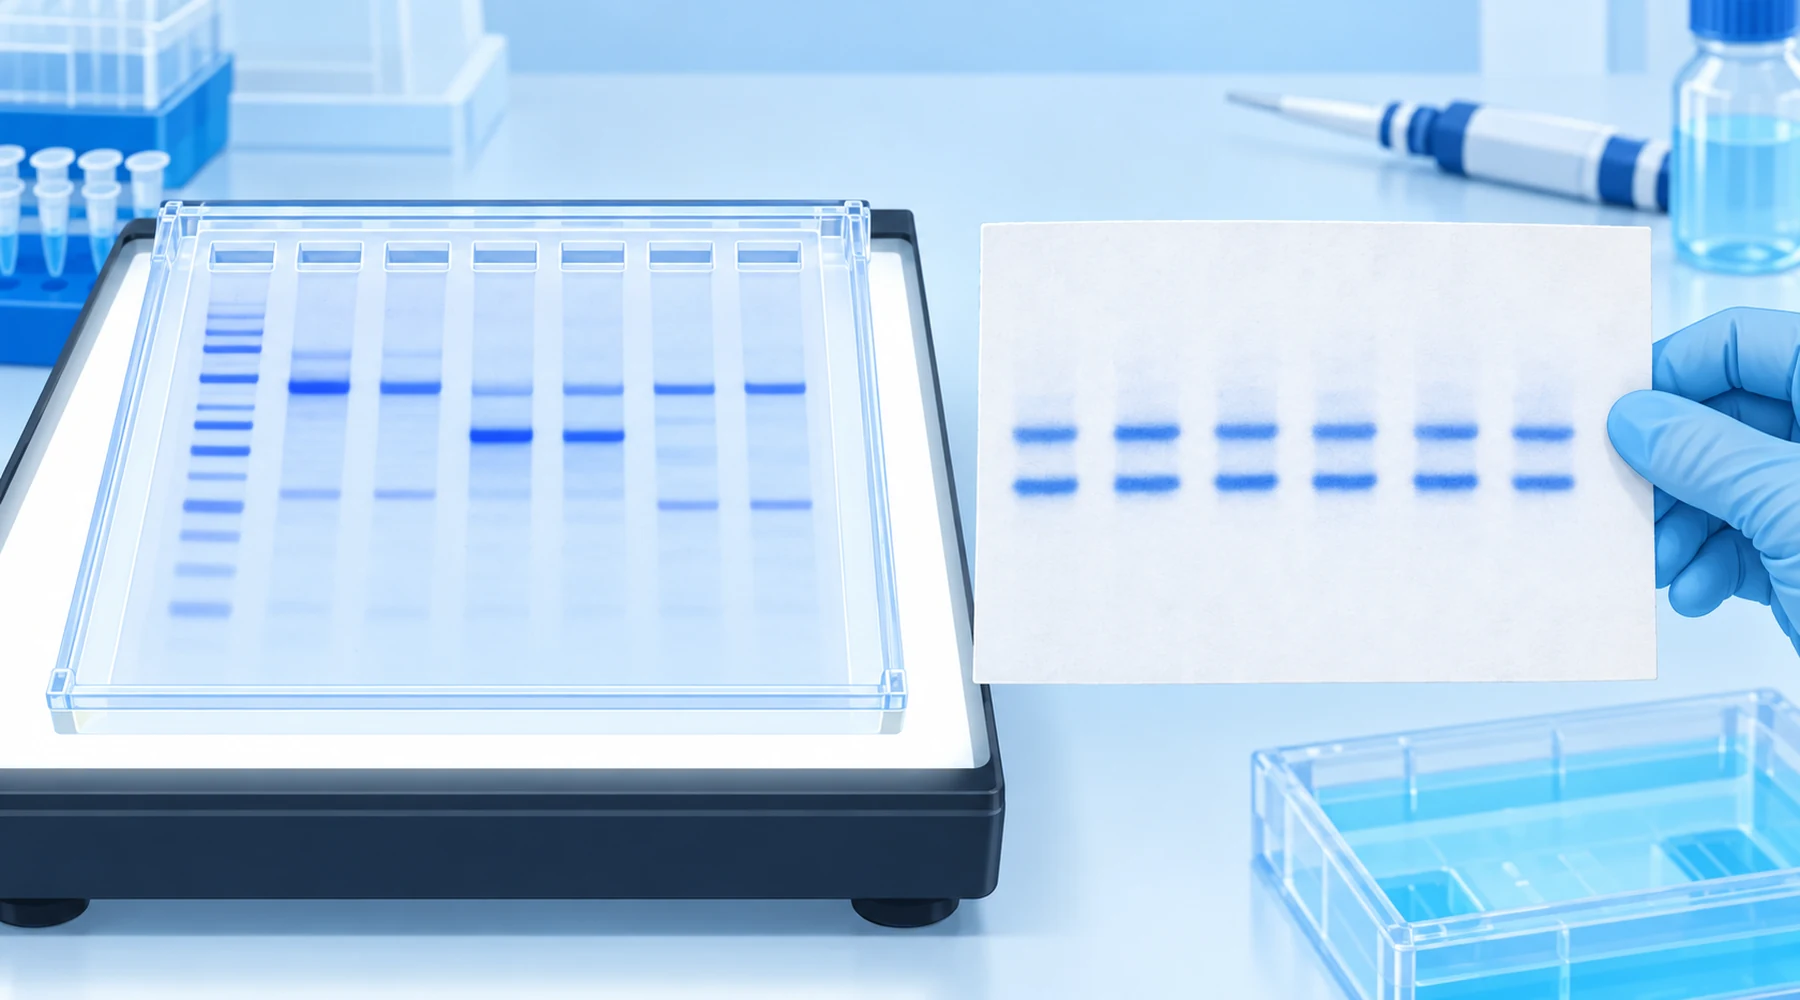
Студент изведува електрофореза во агарозен гел, го бои со метиленско сино и не гледа ништо таму каде што очекувал јасна лента. На соседното работно место, постдокторски истражувач бои мембрана од Northern блот со истото шише сина боја и добива остри рибозомални ленти за три минути. Студентот заклучува дека гелот не успеал. Гелот не е неуспешен. Двете задачи се различни, а истата боја ги исполнува со различна чувствителност, различно заднинско обојување и различни правила за следните чекори.
Боењето ДНК и боењето РНК со метиленско сино имаат заедничка хемија, но различна цел. Во гел, бојата покажува колку нуклеинска киселина има во порозната матрица. На мембрана, покажува дали преносот успеал и дали во патеките се нанесени еднакви количества примерок. Кога оваа разлика е јасна, протоколите, границите на детекција и ограничувањата на компатибилноста стануваат разбирливи.
Краткиот одговор
Метиленското сино е планарна катјонска боја што се врзува за нуклеинските киселини нековалентно и реверзибилно, преку комбинација од електростатско привлекување кон фосфатите, интеркалација меѓу базните парови и поврзување со малиот жлеб. Токму таа реверзибилност е клучна. Лентите може да се обојат и да се набљудуваат под видлива светлина, да се документираат, а потоа да се обезбојат или да се прочистат за клонирање, хибридизација или повторно испитување со сонда.
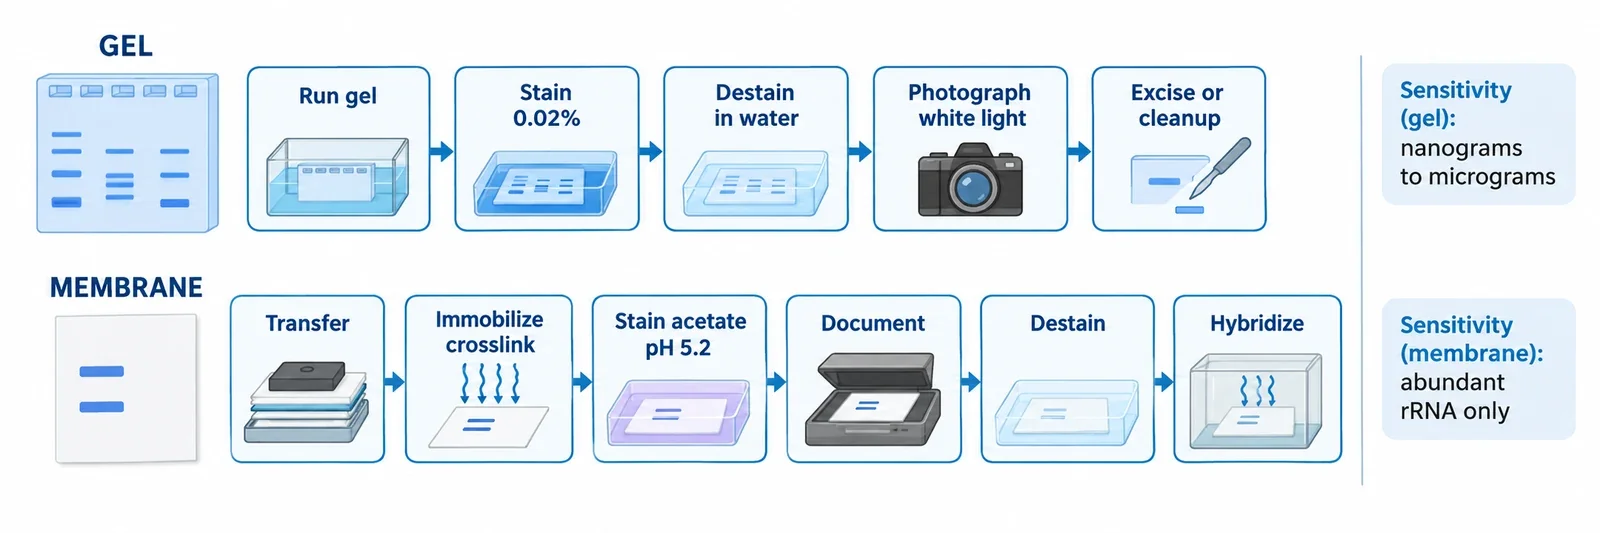
За боење двоверижна ДНК во агарозен гел со метиленско сино, стандардниот брз состав е 0.02 проценти w/v (200 микрограми на mL) во вода, со околу 15 минути боење и околу 15 минути обезбојување со вода, а набљудувањето се врши на светлосна кутија со бела светлина. За мембрани, класичниот состав за Northern блот е 0.02 до 0.04 проценти боја во натриум ацетат при pH околу 5.2, со неколку минути боење по преносот и имобилизацијата, потоа плакнење со вода и целосно обезбојување пред хибридизацијата. Чувствителноста е скромна: десетици до стотици нанограми по лента во гел при добри услови, а конзервативните упатства наведуваат 0.5 до 1 микрограм. Тоа е за неколку редови на големина над границите за етидиум бромид и боите SYBR. На мембрани нема корисна единствена граница на детекција за поединечен транскрипт, бидејќи бојата главно ја прикажува изобилната рибозомална РНК и вкупното нанесено количество материјал. Не користете раствор што се продава како додаток во исхраната како замена во ниту еден од овие состави. Валидираните методи претпоставуваат боја со аналитичка чистота, дефинирани пуфери и работа во услови без RNase кога се користи РНК.
Како функционира врзувањето и каде може да доведе до погрешен заклучок
Корисниот модел има три дела. Прво, позитивно наелектризираниот прстенест систем се привлекува кон негативно наелектризираниот фосфатен скелет. Спектроскопските истражувања покажуваат дека овој електростатски придонес доминира при ниска концентрација на соли, додека моделирањето и молекуларната динамика ги потврдуваат интеркалацијата и врзувањето во малиот жлеб како стабилни начини на врзување со двоверижна ДНК, како што е сумирано во спектроскопска студија за врзувањето на метиленското сино со ДНК. Второ, постои одредена склоност кон GC: моделирањето ги фаворизира соседните парови CpG и GpC, а експериментите покажуваат повластено поврзување со дуплекси богати со GC во истражувањата за склоностите на метиленското сино при интеркалација, но се врзуваат и дуплексите AT. Рутинското боење не е специфично за секвенцата. Трето, едноверижната ДНК и РНК се врзуваат главно преку електростатски интеракции и наслагување со достапните бази и дуплексните региони, поради што интензитетот на боењето зависи од должината, секвенцата и секундарната структура.
Од ова произлегуваат две последици. Бидејќи врзувањето е нековалентно, бојата се отстранува со миење. Лентите во полиакриламид брзо избледуваат ако не се фиксираат намерно, а посебна варијанта за трајна фиксација постои токму затоа што вообичаеното боење е привремено, како што опишуваат Soto и Draper за гелови PAGE. Бидејќи бојата е фотосензибилизатор, долготрајното силно осветлување на обоена ДНК во присуство на кислород може да го оксидира гуанинот и на крајот да предизвика прекини во веригите, механизам детално опишан во истражувањата за оксидацијата на гуанин фотосензибилизирана со метиленско сино. Краткото набљудување под бела светлина го избегнува добро познатото оштетување од UV кај класичните постапки со етидиум бромид, а таа предност е реална при препаративно издвојување. Видливата светлина е поблага, но не е безопасна. Осветлувањето нека биде кратко кога ДНК ќе се користи за клонирање. За пошироката фотохемија зад оваа претпазливост, видете ги двете патеки во фотохемијата на метиленското сино. За редокс-парот и состојбите на полнеж што објаснуваат зошто оксидираната форма се врзува, а редуцираната не, видете ја хемијата на структурата и својствата на метиленското сино.
Прва задача: боење во гелови
Боењето на гел одговара на едно прашање: дали во оваа лента има доволно нуклеинска киселина за да се види со голо око. Двоверижната ДНК во агароза е најдобро карактеризираниот случај. Оригиналниот метод на Flores и соработниците за боење гел со метиленско сино го валидирал брзиот протокол со 0.02 проценти на агароза од 1 процент и покажал успешно издвојување и клонирање потоа. Истиот протокол од добавувачот се појавува на страницата за метиленско сино на IBI Scientific, каде што составот со 0.04 проценти за мембрани и брзата варијанта за гелови се наведени еден до друг.
Практична постапка:
- Изведете ја електрофорезата во гел како вообичаено. Бојте по електрофорезата, а не за време на неа, освен ако преносот или раздвојувањето не се валидирани за изменет метод.
- Потопете го гелот во метиленско сино од 0.02 проценти w/v во дестилирана вода, со нежно мешање, околу 15 минути.
- Обезбојувајте со неколку промени на водата, вкупно околу 15 минути, додека заднинското обојување на матрицата не се намали и лентите не станат јасни.
- Фотографирајте веднаш на илуминатор со бела светлина.
Агарозата и полиакриламидот се однесуваат различно. Агарозата ја задржува бојата во матрицата, па обезбојувањето е бавниот чекор. Тенките полиакриламидни гелови брзо се бојат, но и брзо ја губат бојата, што го олеснува препаративното отсекување, но го отежнува архивското документирање. Синтетичките олигонуклеотиди во полиакриламид може да се лоцираат со истиот состав од 0.02 проценти за 20 до 30 минути, со повторени миења со вода, според утврдените методи за PAGE од типот Current Protocols. Пријавени се и многу разредени варијанти со околу 0.0002 проценти во разреден TBE за препаративни олигонуклеотиди во текот на неколку часа, но доказната основа е послаба.
Разликата меѓу ДНК и РНК е важна. Двоверижната ДНК дава најсилно структурно врзување. РНК и едноверижната ДНК се бојат, но послабо и помалку предвидливо. Кај агарозни гелови со формалдехид за РНК, повеќето лаборатории го прескокнуваат боењето со сино во самиот гел и прво ја пренесуваат РНК на мембрана, а потоа ја бојат таму. Со тој потег слабиот сигнал во гелот се заменува со појасен сигнал на мембраната и запис за нанесеното количество.
Втора задача: боење на мембрани
Боењето на мембрана одговара на друго прашање: дали преносот успеал и дали патеките се споредливи. Класичната примена е реверзибилното боење на Northern блот според Herrin и Schmidt, првично со 0.04 проценти боја во 50 mM натриум ацетат при pH 5.0 за 2 до 3 минути, со плакнење со вода, при што бојата се отстранува со разреден SDS во SSPE пред хибридизацијата.
Широко користената современа варијанта се изведува вака:
- Пренесете РНК или денатурирана ДНК на најлон или нитроцелулоза, а потоа имобилизирајте ја со UV-вкрстено поврзување или загревање за примерокот да не се изгуби при боењето.
- По избор, но често се применува: навлажнете ја мембраната во оцетна киселина од 5 проценти околу 15 минути.
- Бојте 5 до 10 минути со метиленско сино од 0.02 до 0.04 проценти во 0.3 до 0.5 M натриум ацетат при pH околу 5.2.
- Исплакнете и обезбојувајте во вода 5 до 15 минути, документирајте, а потоа отстранете ја преостанатата боја пред хибридизацијата.
Позитивно наелектризираниот најлон доминира во работата со Northern блот. Нитроцелулозата исто така функционира со истата постапка со оцетна киселина и ацетат. Сликата се користи за да се потврди преносот, да се споредат лентите 28S и 18S (или 23S и 16S за бактериска РНК), да се означат скалите и стандардите и да се зачува приближен запис за нормализација според вкупната РНК. Објавените методи за Northern блот ги квантифицираат обоените рибозомални ленти за проверка на нанесеното количество, вклучително и истражување во науката за млеко што користело рибозомални ленти обоени со метиленско сино за нормализација. Мембраните од Southern блот може да се визуализираат на ист начин, но бојата е многу поетаблирана за проверка на нанесеното количество и преносот кај Northern блот, а ДНК за Southern блот се денатурира пред преносот, па вредностите за чувствителност во гел не се преносливи.
Граници на детекција и заднинско обојување: каде сината боја заостанува
Споредбата подолу намерно е приближна. Ефикасноста на боењето зависи од процентот на гелот, ширината на лентата, оптиката и доследноста при обезбојувањето. Секој број третирајте го како показател за редот на големина, а не како спецификација.
| Боја и формат | Приближна детекција по лента | Толкување |
|---|---|---|
| Метиленско сино, dsDNA во агароза | 40 до 250 ng при оптимизирани услови; 0.5 до 1 микрограм според конзервативна процена | Доволно добро за препаративни количества и наставни гелови. Слабо за ленти со траги од материјал. |
| Метиленско сино, кратка ssDNA или РНК или олигонуклеотиди во PAGE | Приближно 0.1 до 0.5 микрограм | Зависи од должината и структурата. Нема универзална граница. |
| Етидиум бромид, dsDNA во агароза | Околу 1 до 10 ng | Приближно четирипати почувствителен од оптимизираното боење со сино во споредбата на Flores. Потребна е UV-светлина. |
| SYBR Green I, dsDNA | Околу 60 pg | Потребно е флуоресцентно снимање. |
| SYBR Gold, ДНК и РНК | Околу 25 pg | Повеќе од десетпати почувствителен од етидиум бромид во неколку формати. |
| Боење со сребро, нуклеински киселини во PAGE | Околу 0.3 до 0.9 ng; пријавени се 100 pg РНК во оптимизирана постапка со сино, па со сребро | Многу чувствително, но хемиски сложено и непогодно за издвојување. |
| Толуидинско сино, РНК и олигонуклеотиди во PAGE | Работни количества од стотици ng, документирани околу 250 ng | Видлива светлина како кај метиленското сино, но без стандардизирана граница споредлива со спецификациите за SYBR. |
Контролата на заднинското обојување одредува дали скромниот сигнал е употреблив. Слободната боја е интензивно обоена, па контрастот се добива со отстранување на неврзаната боја без отстранување на врзаната. Поконцентрираната боја ретко ја зголемува чувствителноста. Главно го продолжува времето на обезбојување. Испитајте серија разредувања со конкретниот гел, мембрана и камера и користете го само опсегот во кој интегрираната густина останува пропорционална на внесеното количество. Метиленското сино овозможува семиквантитативна нормализација на нанесеното количество. Тоа не е квантитативен тест со широк динамички опсег, бидејќи капацитетот на мембраната, ефикасноста на преносот, заситувањето и обезбојувањето варираат од патека до патека.
Ограничувања на компатибилноста: што останува употребливо по боењето
Клонирањето по боење со сино е демонстрирано. Flores и соработниците отсекле обоени ленти од агароза, ја издвоиле ДНК и извршиле лигирање и трансформација, пријавувајќи подобро клонирање отколку по боење со етидиум бромид и изложување на UV. Веројатната причина е помалото фотооштетување, а не придобивка од самата боја. Изложувањето на бела светлина нека биде кратко, а издвоената ДНК прочистете ја со вообичаена постапка за екстракција од гел.
За PCR и секвенционирање има помалку докази. Преостанатата боја се врзува за нуклеинските киселини, затоа обезбојте и прочистете пред ензимските чекори. Се очекува правилно прочистената ДНК од син гел да функционира, но толеранцијата на директно пренесени остатоци од бојата кај различни полимерази и хемиски постапки за секвенционирање не е добро квантифицирана. Не ја земајте здраво за готово.
Хибридизацијата на блот е компатибилна кога редоследот строго се почитува: пренос, имобилизација, боење, документирање, обезбојување, хибридизација. Тој редослед е основата на методот на Herrin и Schmidt. Боењето пред преносот или прескокнувањето на обезбојувањето е поинаков метод и бара сопствена валидација. По отстранувањето на бојата, стандардното отстранување на сондата и повторното испитување со сонда се одвиваат нормално. За боење на клеточно ниво со истото семејство бои и за тоа зошто логиката за фиксирани размази не се пренесува на методите со живи клетки, видете го атласот на микроскопско боење.
Отсекувањето ленти функционира кај препаративни агарозни гелови и кај олигонуклеотиди во PAGE лоцирани со сино, под услов да се избегне варијантата со трајна фиксација. Електроелуцијата по обезбојувањето е хемиски веродостојна за реверзибилно врзувачко средство, но контролираните податоци за приносот конкретно со метиленско сино се оскудни. По елуцијата, отстранете ги солите или извршете преципитација.
Проблеми што се повторуваат
Слабите ленти во гел обично значат премала маса за колориметриско боење, особено кај кратки едноверижни цели или цели од РНК. Нанесете повеќе материјал, користете свежа боја, продолжете го боењето пред да ја зголемите концентрацијата и прекинете го обезбојувањето порано. Еднообразно син гел без контраст обично значи прекумерно боење или премалку промени на водата. Избледувањето на лентите во PAGE е очекувана хемиска појава, а не неуспешно боење. Фотографирајте брзо. Нерамномерното заднинско обојување на мембраната укажува на набори, меурчиња, отпечатоци од прсти, нерамномерно мешање или нерамномерен пренос. Не толкувајте го тоа како нееднакво нанесено количество без контрола со хибридизација. Размачкана, слаба рибозомална шема може да значи деградација, но и нецелосен пренос, премалку вкупна РНК (типичните патеки содржат од неколку до десетици микрограми) или прекумерно обезбојување. Бојата ја прикажува изобилната рибозомална РНК. Не прикажува конкретен транскрипт. Тоа е задача на сондата.
Безбедност и ракување без преувеличување
Со метиленското сино е поедноставно да се ракува отколку со етидиум бромид, но тоа не е безопасно. Тековниот безбедносен лист на MilliporeSigma ја класифицира бојата во категорија 4 за акутна орална токсичност, штетна при голтање, со отстранување преку одобрен систем за отпад според безбедносниот лист на Sigma-Aldrich за метиленско сино. Етидиум бромид носи посилни предупредувања за генотоксичност, вклучително и сомневање за ефекти врз герминативните клетки во неговиот безбедносен лист на Sigma-Aldrich за етидиум бромид, а неговите гелови и раствори обично се одвојуваат како опасен хемиски отпад, како што е наведено во водичот на Thermo Fisher за бои за нуклеински киселини. За двете бои следете ги безбедносните листови и правилата на установата. Чувајте ја сувата боја цврсто затворена и сува, повторно користете го работниот раствор само како што дозволува протоколот, чувајте ги обоените мембрани суви меѓу листови филтер-хартија и фотографирајте ги геловите пред лентите да се распрснат со дифузија.
Запомнете ја практичната реченица за лабораториската работа. Геловите ја проверуваат видливоста при големо нанесено количество под бела светлина. Мембраните го проверуваат преносот и нанесеното количество пред сондата да ја изврши чувствителната детекција. Една боја служи за двете задачи, со скромна чувствителност, реверзибилно врзување и строг редослед на постапките.